IChO 2009 · Theory problem 3
Protein Folding
The unfolding reaction for many small proteins can be represented by the equilibrium:
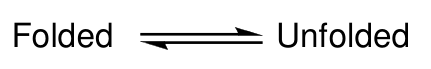
You may assume that the protein folding reaction takes place in a single step. The position of this equilibrium changes with temperature; the melting temperature \(T_m\) is defined as the temperature at which half of the molecules are unfolded and half are folded.
The intensity of the fluorescence signal at a wavelength of 356 nm of a \(1.0\ \mu\mathrm{M}\) (\(\mathrm{M}=\mathrm{mol\,dm^{-3}}\)) sample of the protein Chymotrypsin Inhibitor 2 (CI2) was measured as a function of temperature over the range 58 to 66 °C:
| Temperature / °C | 58 | 60 | 62 | 64 | 66 |
|---|---|---|---|---|---|
| Fluorescence intensity (arbitrary units) | 27 | 30 | 34 | 37 | 40 |
A \(1.0\ \mu\mathrm{M}\) sample in which all of the protein molecules are folded gives a fluorescence signal of 21 units at 356 nm. A \(1.0\ \mu\mathrm{M}\) sample in which all of the protein molecules are unfolded gives a fluorescence signal of 43 units.
3.1 Assuming that the fluorescence intensity from each species is directly proportional to its concentration, calculate the fraction, \(x\), of unfolded molecules present at each temperature.
3.2 Give an expression for the equilibrium constant, \(K\), in terms of \(x\), and hence calculate the value of \(K\) at each temperature.
3.3 Estimate the value of \(T_m\) for this protein (to the nearest 1 °C).
Assuming that the values of \(\Delta H^\circ\) and \(\Delta S^\circ\) for the protein unfolding reaction are constant with temperature then:
\[ \ln K=-\frac{\Delta H^\circ}{RT}+C \]
where \(C\) is a constant.
3.4 Plot a suitable graph and hence determine the values of \(\Delta H^\circ\) and \(\Delta S^\circ\) for the protein unfolding reaction.
[If you have been unable to calculate values for \(\Delta H^\circ\) and \(\Delta S^\circ\), you should use the following incorrect values for the subsequent parts of the problem:
\(\Delta H^\circ=130\ \mathrm{kJ\,mol^{-1}}\); \(\Delta S^\circ=250\ \mathrm{J\,K^{-1}\,mol^{-1}}\).]
3.5 Calculate the equilibrium constant for the unfolding reaction at 25 °C.
[If you have been unable to calculate a value for \(K\), you should use the following incorrect value for the subsequent parts of the problem: \(K=3.6\cdot10^{-6}\)]
The first order rate constant for the CI2 protein folding reaction can be determined by following the fluorescence intensity when a sample of unfolded protein is allowed to refold (typically the pH of the solution is changed). The concentration of protein when a \(1.0\ \mu\mathrm{M}\) sample of unfolded CI2 was allowed to refold was measured at a temperature of 25 °C:
| time / ms | 0 | 10 | 20 | 30 | 40 |
|---|---|---|---|---|---|
| concentration / \(\mu\mathrm{M}\) | 1 | 0.64 | 0.36 | 0.23 | 0.14 |
3.6 Plot a suitable graph and hence determine the value of the rate constant for the protein folding reaction, \(k_f\), at 25 °C.
[If you have been unable to calculate the value for \(k_f\), you should use the following incorrect value for the subsequent parts of the question: \(k_f=60\ \mathrm{s^{-1}}\).]
3.7 Determine the value of the rate constant for the protein unfolding reaction, \(k_u\), at 25 °C.
3.8 At 20 °C the rate constant for the protein folding reaction is \(33\ \mathrm{s^{-1}}\). Calculate the activation energy for the protein folding reaction.
Official English text of the problem.
Answers
-
3.1 At \(58,60,62,64,66\,^\circ\mathrm C\), respectively: \[ \boxed{x=0.273,\ 0.409,\ 0.591,\ 0.727,\ 0.864.} \]
-
3.2 \[ \boxed{K=\frac{x}{1-x}} \] giving, in the same temperature order, \[ \boxed{K=0.375,\ 0.692,\ 1.44,\ 2.67,\ 6.33.} \]
-
3.3 \(\boxed{T_m\approx61\,^\circ\mathrm C}\).
-
3.4 Plot \(\ln K\) against \(1/T\): \[ \boxed{\Delta H^\circ\approx+327\ \mathrm{kJ\,mol^{-1}},\qquad \Delta S^\circ\approx+978\ \mathrm{J\,K^{-1}\,mol^{-1}}.} \]
-
3.5 \(\boxed{K(25\,^\circ\mathrm C)\approx7.0\times10^{-7}}\).
-
3.6 Plot \(\ln([U]_t/[U]_0)\) against time: \[ \boxed{k_f\approx49.6\ \mathrm{s^{-1}}\approx50\ \mathrm{s^{-1}}.} \]
-
3.7 \(\boxed{k_u\approx3.5\times10^{-5}\ \mathrm{s^{-1}}}\).
-
3.8 \(\boxed{E_a\approx59\ \mathrm{kJ\,mol^{-1}}}\), or approximately \(60\ \mathrm{kJ\,mol^{-1}}\) using the graph-rounded \(k_f=50\ \mathrm{s^{-1}}\).
Solution
Let \(F\) and \(U\) denote folded and unfolded chymotrypsin inhibitor 2 (CI2), respectively. These are conformational states of the same protein. Its amino-acid sequence is not supplied, so a molecular SMILES cannot be specified from the data; ordinary SMILES would not describe the distinction between its folded and unfolded conformations.
The numerical results below use least-squares straight-line fits to all five points, retaining unrounded fit parameters for subsequent calculations. We use \(R=8.314\ \mathrm{J\,K^{-1}\,mol^{-1}}\).
3.1 — Fraction of unfolded molecules
If the unfolded fraction is \(x\), the folded fraction is \(1-x\). Since fluorescence contributions are proportional to concentration and additive, the measured intensity \(I\) is
\[ I=21(1-x)+43x=21+22x. \]
Thus,
\[ \boxed{x=\frac{I-21}{22}}. \]
| Temperature / °C | \(I\) | \(x\) |
|---|---|---|
| 58 | 27 | \(6/22=0.2727\) |
| 60 | 30 | \(9/22=0.4091\) |
| 62 | 34 | \(13/22=0.5909\) |
| 64 | 37 | \(16/22=0.7273\) |
| 66 | 40 | \(19/22=0.8636\) |
3.2 — Equilibrium constants
For the unfolding equilibrium, using the state labels defined above,
\[ \ce{F <=> U}, \]
the equilibrium constant is
\[ K=\frac{[U]}{[F]}. \]
Writing the total protein concentration as \(c_{\mathrm{tot}}\),
\[ [U]=xc_{\mathrm{tot}},\qquad [F]=(1-x)c_{\mathrm{tot}}, \]
so
\[ \boxed{K=\frac{x}{1-x}=\frac{I-21}{43-I}}. \]
| Temperature / °C | \(K\) |
|---|---|
| 58 | \(6/16=0.375\) |
| 60 | \(9/13=0.6923\) |
| 62 | \(13/9=1.4444\) |
| 64 | \(16/6=2.6667\) |
| 66 | \(19/3=6.3333\) |
These equilibrium constants are dimensionless.
3.3 — Melting temperature
At the melting temperature,
\[ x=\frac12,\qquad K=1. \]
The corresponding fluorescence intensity is
\[ I_m=\frac{21+43}{2}=32. \]
This lies between the intensities of 30 at 60 °C and 34 at 62 °C. Linear interpolation gives
\[ T_m=60+\frac{32-30}{34-30}(62-60) =61\,^\circ\mathrm C. \]
Therefore, to the nearest degree,
\[ \boxed{T_m=61\,^\circ\mathrm C}. \]
3.4 — Enthalpy and entropy of unfolding
The thermodynamic relations
\[ \Delta G^\circ=\Delta H^\circ-T\Delta S^\circ \]
and
\[ \Delta G^\circ=-RT\ln K \]
give
\[ \ln K=-\frac{\Delta H^\circ}{R}\frac1T +\frac{\Delta S^\circ}{R}. \]
Thus, plot \(\ln K\) on the vertical axis against \(1/T\), in \(\mathrm{K^{-1}}\), on the horizontal axis, using absolute temperatures.
| \(T\) / K | \(1/T\) / \(\mathrm{K^{-1}}\) | \(\ln K\) |
|---|---|---|
| 331.15 | 0.00301978 | −0.98083 |
| 333.15 | 0.00300165 | −0.36772 |
| 335.15 | 0.00298374 | 0.36772 |
| 337.15 | 0.00296604 | 0.98083 |
| 339.15 | 0.00294855 | 1.84583 |
The points lie approximately on a descending straight line. A least-squares fit gives
\[ \ln K= -\left(3.93049\times10^4\ \mathrm K\right)\frac1T +117.65318. \]
The slope is \(-\Delta H^\circ/R\), so
\[ \Delta H^\circ =-R(\text{slope}) \approx (8.314)(3.93049\times10^4) \ \mathrm{J\,mol^{-1}}. \]
Hence,
\[ \boxed{\Delta H^\circ\approx+327\ \mathrm{kJ\,mol^{-1}}}. \]
The intercept is \(C=\Delta S^\circ/R\), giving
\[ \Delta S^\circ=RC \approx(8.314)(117.65318) \ \mathrm{J\,K^{-1}\,mol^{-1}}, \]
and therefore
\[ \boxed{\Delta S^\circ\approx+978\ \mathrm{J\,K^{-1}\,mol^{-1}}}. \]
Unfolding is endothermic and has a positive standard entropy change. As a consistency check, the fitted line gives
\[ T_m=\frac{\Delta H^\circ}{\Delta S^\circ} \approx334.07\ \mathrm K =60.92\,^\circ\mathrm C, \]
consistent with part 3.3.
3.5 — Equilibrium constant at 25 °C
At \(25\,^\circ\mathrm C\),
\[ T=298.15\ \mathrm K. \]
Using the fitted equation directly avoids rounding errors in extrapolation:
\[ \ln K =-\frac{39304.939}{298.15}+117.65318 =-14.1762. \]
Therefore,
\[ K=e^{-14.1762}=6.97\times10^{-7}, \]
so
\[ \boxed{K(25\,^\circ\mathrm C)\approx7.0\times10^{-7}}. \]
The equilibrium strongly favours the folded protein.
3.6 — Folding rate constant
The decreasing concentrations in the kinetic table refer to unfolded protein. Since the equilibrium unfolded fraction at 25 °C is only
\[ x_{\mathrm{eq}}=\frac{K}{1+K}\approx7.0\times10^{-7}, \]
reverse unfolding is negligible over these measurements. The first-order folding equation is therefore
\[ -\frac{d[U]}{dt}=k_f[U]. \]
Integration gives
\[ [U]_t=[U]_0e^{-k_ft}, \]
or
\[ \ln\left(\frac{[U]_t}{[U]_0}\right)=-k_ft. \]
Plot \(\ln([U]_t/[U]_0)\) vertically against \(t\), in seconds, horizontally.
| \(t\) / s | \([U]_t/[U]_0\) | \(\ln([U]_t/[U]_0)\) |
|---|---|---|
| 0.000 | 1.00 | 0.00000 |
| 0.010 | 0.64 | −0.44629 |
| 0.020 | 0.36 | −1.02165 |
| 0.030 | 0.23 | −1.46968 |
| 0.040 | 0.14 | −1.96611 |
The graph is approximately a straight line through the origin with a negative slope. A least-squares fit gives
\[ \ln\left(\frac{[U]_t}{[U]_0}\right) =0.01038-\left(49.556\ \mathrm{s^{-1}}\right)t. \]
Consequently,
\[ \boxed{k_f=49.6\ \mathrm{s^{-1}}\approx50\ \mathrm{s^{-1}}}. \]
For an exact reversible treatment, the equilibrium concentration would be subtracted before taking logarithms, and the decay constant would be \(k_f+k_u\). The correction is negligible at the precision of these data.
3.7 — Unfolding rate constant
At equilibrium, the unfolding and folding rates are equal:
\[ k_u[F]_{\mathrm{eq}}=k_f[U]_{\mathrm{eq}}. \]
Therefore,
\[ \frac{k_u}{k_f} =\frac{[U]_{\mathrm{eq}}}{[F]_{\mathrm{eq}}} =K, \]
so
\[ k_u=Kk_f. \]
Using the unrounded results,
\[ k_u=(6.9718\times10^{-7})(49.556\ \mathrm{s^{-1}}) =3.4549\times10^{-5}\ \mathrm{s^{-1}}. \]
Thus,
\[ \boxed{k_u\approx3.5\times10^{-5}\ \mathrm{s^{-1}}}. \]
3.8 — Activation energy for folding
The Arrhenius equation is
\[ k_f=Ae^{-E_a/(RT)}. \]
Assuming a constant pre-exponential factor over this temperature interval,
\[ \ln\left(\frac{k_2}{k_1}\right) =\frac{E_a}{R}\left(\frac1{T_1}-\frac1{T_2}\right). \]
Here,
\[ T_1=293.15\ \mathrm K,\quad k_1=33\ \mathrm{s^{-1}}, \]
\[ T_2=298.15\ \mathrm K,\quad k_2=49.556\ \mathrm{s^{-1}}. \]
Hence,
\[ E_a= \frac{R\ln(k_2/k_1)} {1/T_1-1/T_2} = \frac{ (8.314\ \mathrm{J\,K^{-1}\,mol^{-1}}) \ln(49.556/33) }{ (1/293.15-1/298.15)\ \mathrm{K^{-1}} }. \]
This gives
\[ E_a\approx5.91\times10^4\ \mathrm{J\,mol^{-1}}, \]
or
\[ \boxed{E_a\approx59\ \mathrm{kJ\,mol^{-1}}}. \]
Using \(k_f=50\ \mathrm{s^{-1}}\) rounded from the graph gives approximately \(60\ \mathrm{kJ\,mol^{-1}}\), consistent with graphical precision.
The solution was checked against the official solution.
IChO 2009 · Theorieaufgabe 3
Proteinfaltung
Die Entfaltungsreaktion vieler kleiner Proteine lässt sich durch das folgende Gleichgewicht darstellen:
Sie dürfen annehmen, dass die Proteinfaltungsreaktion in einem einzigen Schritt abläuft. Die Lage dieses Gleichgewichts ändert sich mit der Temperatur; die Schmelztemperatur \(T_m\) ist als die Temperatur definiert, bei der die Hälfte der Moleküle entfaltet und die andere Hälfte gefaltet ist.
Die Intensität des Fluoreszenzsignals bei einer Wellenlänge von 356 nm einer \(1.0\ \mu\mathrm{M}\) (\(\mathrm{M}=\mathrm{mol\,dm^{-3}}\)) Lösung des Proteins Chymotrypsin-Inhibitor 2 (CI2) wurde im Bereich von 58 bis 66 °C in Abhängigkeit von der Temperatur gemessen:
| Temperatur / °C | 58 | 60 | 62 | 64 | 66 |
|---|---|---|---|---|---|
| Fluoreszenzintensität (willkürliche Einheiten) | 27 | 30 | 34 | 37 | 40 |
Eine \(1.0\ \mu\mathrm{M}\) Lösung, in der alle Proteinmoleküle gefaltet sind, liefert bei 356 nm ein Fluoreszenzsignal von 21 Einheiten. Eine \(1.0\ \mu\mathrm{M}\) Lösung, in der alle Proteinmoleküle entfaltet sind, liefert ein Fluoreszenzsignal von 43 Einheiten.
3.1 Berechnen Sie unter der Annahme, dass die Fluoreszenzintensität jeder Spezies direkt proportional zu ihrer Konzentration ist, den Anteil \(x\) der entfalteten Moleküle bei jeder Temperatur.
3.2 Geben Sie einen Ausdruck für die Gleichgewichtskonstante \(K\) in Abhängigkeit von \(x\) an und berechnen Sie damit den Wert von \(K\) bei jeder Temperatur.
3.3 Schätzen Sie den Wert von \(T_m\) für dieses Protein (auf 1 °C gerundet).
Unter der Annahme, dass die Werte von \(\Delta H^\circ\) und \(\Delta S^\circ\) für die Proteinentfaltungsreaktion temperaturunabhängig sind, gilt:
\[ \ln K=-\frac{\Delta H^\circ}{RT}+C \]
wobei \(C\) eine Konstante ist.
3.4 Zeichnen Sie ein geeignetes Diagramm und bestimmen Sie daraus die Werte von \(\Delta H^\circ\) und \(\Delta S^\circ\) für die Proteinentfaltungsreaktion.
[Falls Sie keine Werte für \(\Delta H^\circ\) und \(\Delta S^\circ\) berechnen konnten, verwenden Sie für die folgenden Teilaufgaben die nachstehenden falschen Werte:
\(\Delta H^\circ=130\ \mathrm{kJ\,mol^{-1}}\); \(\Delta S^\circ=250\ \mathrm{J\,K^{-1}\,mol^{-1}}\).]
3.5 Berechnen Sie die Gleichgewichtskonstante der Entfaltungsreaktion bei 25 °C.
[Falls Sie keinen Wert für \(K\) berechnen konnten, verwenden Sie für die folgenden Teilaufgaben den nachstehenden falschen Wert: \(K=3.6\cdot10^{-6}\)]
Die Geschwindigkeitskonstante erster Ordnung der Faltungsreaktion des Proteins CI2 lässt sich bestimmen, indem man die Fluoreszenzintensität verfolgt, während sich eine Probe des entfalteten Proteins wieder faltet (üblicherweise wird dazu der pH-Wert der Lösung geändert). Bei der Rückfaltung einer \(1.0\ \mu\mathrm{M}\) Lösung von entfaltetem CI2 wurde die Proteinkonzentration bei einer Temperatur von 25 °C gemessen:
| Zeit / ms | 0 | 10 | 20 | 30 | 40 |
|---|---|---|---|---|---|
| Konzentration / \(\mu\mathrm{M}\) | 1 | 0.64 | 0.36 | 0.23 | 0.14 |
3.6 Zeichnen Sie ein geeignetes Diagramm und bestimmen Sie daraus den Wert der Geschwindigkeitskonstante der Proteinfaltungsreaktion \(k_f\) bei 25 °C.
[Falls Sie den Wert für \(k_f\) nicht berechnen konnten, verwenden Sie für die folgenden Teilaufgaben den nachstehenden falschen Wert: \(k_f=60\ \mathrm{s^{-1}}\).]
3.7 Bestimmen Sie den Wert der Geschwindigkeitskonstante der Proteinentfaltungsreaktion \(k_u\) bei 25 °C.
3.8 Bei 20 °C beträgt die Geschwindigkeitskonstante der Proteinfaltungsreaktion \(33\ \mathrm{s^{-1}}\). Berechnen Sie die Aktivierungsenergie der Proteinfaltungsreaktion.
Aufgabentext aus dem offiziellen englischen Text übersetzt.
Antworten
-
3.1 Bei \(58,60,62,64,66\,^\circ\mathrm C\) gilt jeweils: \[ \boxed{x=0.273,\ 0.409,\ 0.591,\ 0.727,\ 0.864.} \]
-
3.2 \[ \boxed{K=\frac{x}{1-x}} \] Daraus ergibt sich in derselben Reihenfolge der Temperaturen: \[ \boxed{K=0.375,\ 0.692,\ 1.44,\ 2.67,\ 6.33.} \]
-
3.3 \(\boxed{T_m\approx61\,^\circ\mathrm C}\).
-
3.4 Tragen Sie \(\ln K\) gegen \(1/T\) auf: \[ \boxed{\Delta H^\circ\approx+327\ \mathrm{kJ\,mol^{-1}},\qquad \Delta S^\circ\approx+978\ \mathrm{J\,K^{-1}\,mol^{-1}}.} \]
-
3.5 \(\boxed{K(25\,^\circ\mathrm C)\approx7.0\times10^{-7}}\).
-
3.6 Tragen Sie \(\ln([U]_t/[U]_0)\) gegen die Zeit auf: \[ \boxed{k_f\approx49.6\ \mathrm{s^{-1}}\approx50\ \mathrm{s^{-1}}.} \]
-
3.7 \(\boxed{k_u\approx3.5\times10^{-5}\ \mathrm{s^{-1}}}\).
-
3.8 \(\boxed{E_a\approx59\ \mathrm{kJ\,mol^{-1}}}\), beziehungsweise etwa \(60\ \mathrm{kJ\,mol^{-1}}\) bei Verwendung des aus dem Diagramm gerundeten Werts \(k_f=50\ \mathrm{s^{-1}}\).
Lösung
Mit \(F\) und \(U\) werden der gefaltete beziehungsweise entfaltete Chymotrypsin-Inhibitor 2 (CI2) bezeichnet. Dabei handelt es sich um Konformationszustände desselben Proteins. Seine Aminosäuresequenz ist nicht angegeben, daher lässt sich aus den Daten keine SMILES-Darstellung des Moleküls angeben; eine gewöhnliche SMILES-Darstellung würde den Unterschied zwischen seiner gefalteten und entfalteten Konformation nicht beschreiben.
Die folgenden numerischen Ergebnisse beruhen auf Ausgleichsgeraden nach der Methode der kleinsten Quadrate für jeweils alle fünf Messpunkte; für die anschließenden Berechnungen werden die ungerundeten Anpassungsparameter beibehalten. Wir verwenden \(R=8.314\ \mathrm{J\,K^{-1}\,mol^{-1}}\).
3.1 — Anteil entfalteter Moleküle
Wenn der entfaltete Anteil \(x\) beträgt, ist der gefaltete Anteil \(1-x\). Da die Fluoreszenzbeiträge proportional zur Konzentration und additiv sind, gilt für die gemessene Intensität \(I\):
\[ I=21(1-x)+43x=21+22x. \]
Somit gilt:
\[ \boxed{x=\frac{I-21}{22}}. \]
| Temperatur / °C | \(I\) | \(x\) |
|---|---|---|
| 58 | 27 | \(6/22=0.2727\) |
| 60 | 30 | \(9/22=0.4091\) |
| 62 | 34 | \(13/22=0.5909\) |
| 64 | 37 | \(16/22=0.7273\) |
| 66 | 40 | \(19/22=0.8636\) |
3.2 — Gleichgewichtskonstanten
Für das Entfaltungsgleichgewicht mit den oben definierten Zustandsbezeichnungen
\[ \ce{F <=> U}, \]
lautet die Gleichgewichtskonstante:
\[ K=\frac{[U]}{[F]}. \]
Bezeichnet man die gesamte Proteinkonzentration mit \(c_{\mathrm{tot}}\), gilt:
\[ [U]=xc_{\mathrm{tot}},\qquad [F]=(1-x)c_{\mathrm{tot}}, \]
also
\[ \boxed{K=\frac{x}{1-x}=\frac{I-21}{43-I}}. \]
| Temperatur / °C | \(K\) |
|---|---|
| 58 | \(6/16=0.375\) |
| 60 | \(9/13=0.6923\) |
| 62 | \(13/9=1.4444\) |
| 64 | \(16/6=2.6667\) |
| 66 | \(19/3=6.3333\) |
Diese Gleichgewichtskonstanten sind dimensionslos.
3.3 — Schmelztemperatur
Bei der Schmelztemperatur gilt:
\[ x=\frac12,\qquad K=1. \]
Die zugehörige Fluoreszenzintensität beträgt:
\[ I_m=\frac{21+43}{2}=32. \]
Dieser Wert liegt zwischen den Intensitäten von 30 bei 60 °C und 34 bei 62 °C. Lineare Interpolation ergibt:
\[ T_m=60+\frac{32-30}{34-30}(62-60) =61\,^\circ\mathrm C. \]
Damit ergibt sich auf ganze Grad gerundet:
\[ \boxed{T_m=61\,^\circ\mathrm C}. \]
3.4 — Enthalpie und Entropie der Entfaltung
Die thermodynamischen Beziehungen
\[ \Delta G^\circ=\Delta H^\circ-T\Delta S^\circ \]
und
\[ \Delta G^\circ=-RT\ln K \]
ergeben:
\[ \ln K=-\frac{\Delta H^\circ}{R}\frac1T +\frac{\Delta S^\circ}{R}. \]
Tragen Sie daher \(\ln K\) auf der vertikalen Achse gegen \(1/T\) in \(\mathrm{K^{-1}}\) auf der horizontalen Achse auf und verwenden Sie dabei absolute Temperaturen.
| \(T\) / K | \(1/T\) / \(\mathrm{K^{-1}}\) | \(\ln K\) |
|---|---|---|
| 331.15 | 0.00301978 | −0.98083 |
| 333.15 | 0.00300165 | −0.36772 |
| 335.15 | 0.00298374 | 0.36772 |
| 337.15 | 0.00296604 | 0.98083 |
| 339.15 | 0.00294855 | 1.84583 |
Die Punkte liegen näherungsweise auf einer fallenden Geraden. Eine Anpassung nach der Methode der kleinsten Quadrate ergibt:
\[ \ln K= -\left(3.93049\times10^4\ \mathrm K\right)\frac1T +117.65318. \]
Die Steigung beträgt \(-\Delta H^\circ/R\), also gilt:
\[ \Delta H^\circ =-R(\text{Steigung}) \approx (8.314)(3.93049\times10^4) \ \mathrm{J\,mol^{-1}}. \]
Daraus folgt:
\[ \boxed{\Delta H^\circ\approx+327\ \mathrm{kJ\,mol^{-1}}}. \]
Der Achsenabschnitt beträgt \(C=\Delta S^\circ/R\), woraus sich ergibt:
\[ \Delta S^\circ=RC \approx(8.314)(117.65318) \ \mathrm{J\,K^{-1}\,mol^{-1}}, \]
und somit
\[ \boxed{\Delta S^\circ\approx+978\ \mathrm{J\,K^{-1}\,mol^{-1}}}. \]
Die Entfaltung ist endotherm und weist eine positive Standardentropieänderung auf. Zur Konsistenzprüfung liefert die Ausgleichsgerade:
\[ T_m=\frac{\Delta H^\circ}{\Delta S^\circ} \approx334.07\ \mathrm K =60.92\,^\circ\mathrm C, \]
in Übereinstimmung mit Teilaufgabe 3.3.
3.5 — Gleichgewichtskonstante bei 25 °C
Bei \(25\,^\circ\mathrm C\) gilt:
\[ T=298.15\ \mathrm K. \]
Die direkte Verwendung der angepassten Gleichung vermeidet Rundungsfehler bei der Extrapolation:
\[ \ln K =-\frac{39304.939}{298.15}+117.65318 =-14.1762. \]
Daher gilt:
\[ K=e^{-14.1762}=6.97\times10^{-7}, \]
also
\[ \boxed{K(25\,^\circ\mathrm C)\approx7.0\times10^{-7}}. \]
Das Gleichgewicht liegt stark auf der Seite des gefalteten Proteins.
3.6 — Geschwindigkeitskonstante der Faltung
Die abnehmenden Konzentrationen in der Tabelle mit den kinetischen Daten beziehen sich auf das entfaltete Protein. Da der Anteil des entfalteten Proteins im Gleichgewicht bei 25 °C nur
\[ x_{\mathrm{eq}}=\frac{K}{1+K}\approx7.0\times10^{-7}, \]
beträgt, ist die Entfaltung als Rückreaktion während dieser Messungen vernachlässigbar. Die Geschwindigkeitsgleichung erster Ordnung für die Faltung lautet daher:
\[ -\frac{d[U]}{dt}=k_f[U]. \]
Integration ergibt:
\[ [U]_t=[U]_0e^{-k_ft}, \]
oder
\[ \ln\left(\frac{[U]_t}{[U]_0}\right)=-k_ft. \]
Tragen Sie \(\ln([U]_t/[U]_0)\) auf der vertikalen Achse gegen \(t\) in Sekunden auf der horizontalen Achse auf.
| \(t\) / s | \([U]_t/[U]_0\) | \(\ln([U]_t/[U]_0)\) |
|---|---|---|
| 0.000 | 1.00 | 0.00000 |
| 0.010 | 0.64 | −0.44629 |
| 0.020 | 0.36 | −1.02165 |
| 0.030 | 0.23 | −1.46968 |
| 0.040 | 0.14 | −1.96611 |
Der Graph ist näherungsweise eine Gerade durch den Ursprung mit negativer Steigung. Eine Anpassung nach der Methode der kleinsten Quadrate ergibt:
\[ \ln\left(\frac{[U]_t}{[U]_0}\right) =0.01038-\left(49.556\ \mathrm{s^{-1}}\right)t. \]
Folglich gilt:
\[ \boxed{k_f=49.6\ \mathrm{s^{-1}}\approx50\ \mathrm{s^{-1}}}. \]
Bei einer exakten Behandlung als reversible Reaktion würde vor dem Logarithmieren die Gleichgewichtskonzentration abgezogen, und die Abklingkonstante wäre \(k_f+k_u\). Bei der Genauigkeit dieser Daten ist die Korrektur vernachlässigbar.
3.7 — Geschwindigkeitskonstante der Entfaltung
Im Gleichgewicht sind die Geschwindigkeiten der Entfaltung und der Faltung gleich:
\[ k_u[F]_{\mathrm{eq}}=k_f[U]_{\mathrm{eq}}. \]
Daher gilt:
\[ \frac{k_u}{k_f} =\frac{[U]_{\mathrm{eq}}}{[F]_{\mathrm{eq}}} =K, \]
also
\[ k_u=Kk_f. \]
Mit den ungerundeten Ergebnissen ergibt sich:
\[ k_u=(6.9718\times10^{-7})(49.556\ \mathrm{s^{-1}}) =3.4549\times10^{-5}\ \mathrm{s^{-1}}. \]
Somit gilt:
\[ \boxed{k_u\approx3.5\times10^{-5}\ \mathrm{s^{-1}}}. \]
3.8 — Aktivierungsenergie der Faltung
Die Arrhenius-Gleichung lautet:
\[ k_f=Ae^{-E_a/(RT)}. \]
Unter der Annahme eines konstanten präexponentiellen Faktors in diesem Temperaturintervall gilt:
\[ \ln\left(\frac{k_2}{k_1}\right) =\frac{E_a}{R}\left(\frac1{T_1}-\frac1{T_2}\right). \]
Hierbei sind:
\[ T_1=293.15\ \mathrm K,\quad k_1=33\ \mathrm{s^{-1}}, \]
\[ T_2=298.15\ \mathrm K,\quad k_2=49.556\ \mathrm{s^{-1}}. \]
Daraus folgt:
\[ E_a= \frac{R\ln(k_2/k_1)} {1/T_1-1/T_2} = \frac{ (8.314\ \mathrm{J\,K^{-1}\,mol^{-1}}) \ln(49.556/33) }{ (1/293.15-1/298.15)\ \mathrm{K^{-1}} }. \]
Dies ergibt:
\[ E_a\approx5.91\times10^4\ \mathrm{J\,mol^{-1}}, \]
oder
\[ \boxed{E_a\approx59\ \mathrm{kJ\,mol^{-1}}}. \]
Die Verwendung des aus dem Diagramm gerundeten Werts \(k_f=50\ \mathrm{s^{-1}}\) ergibt etwa \(60\ \mathrm{kJ\,mol^{-1}}\), was mit der grafischen Genauigkeit vereinbar ist.
Die Lösung wurde mit der offiziellen Lösung abgeglichen.
IChO 2009 · Teori sorusu 3
Protein Katlanması
Birçok küçük proteinin açılma tepkimesi aşağıdaki denge ile gösterilebilir:
Protein katlanma tepkimesinin tek basamakta gerçekleştiğini varsayabilirsiniz. Bu dengenin konumu sıcaklıkla değişir; erime sıcaklığı \(T_m\), moleküllerin yarısının açılmış, yarısının ise katlanmış olduğu sıcaklık olarak tanımlanır.
Kimotripsin İnhibitörü 2 (CI2) proteininin \(1.0\ \mu\mathrm{M}\) (\(\mathrm{M}=\mathrm{mol\,dm^{-3}}\)) derişimli bir örneğinin 356 nm dalga boyundaki floresans sinyalinin şiddeti, 58 ile 66 °C aralığında sıcaklığın bir fonksiyonu olarak ölçülmüştür:
| Sıcaklık / °C | 58 | 60 | 62 | 64 | 66 |
|---|---|---|---|---|---|
| Floresans şiddeti (keyfî birimler) | 27 | 30 | 34 | 37 | 40 |
Protein moleküllerinin tamamının katlanmış olduğu \(1.0\ \mu\mathrm{M}\) derişimli bir örnek, 356 nm'de 21 birimlik bir floresans sinyali verir. Protein moleküllerinin tamamının açılmış olduğu \(1.0\ \mu\mathrm{M}\) derişimli bir örnek ise 43 birimlik bir floresans sinyali verir.
3.1 Her bir türden kaynaklanan floresans şiddetinin o türün derişimiyle doğru orantılı olduğunu varsayarak, her sıcaklıkta bulunan açılmış moleküllerin kesrini, \(x\), hesaplayınız.
3.2 Denge sabiti \(K\) için \(x\) cinsinden bir ifade yazınız ve buradan her sıcaklıktaki \(K\) değerini hesaplayınız.
3.3 Bu protein için \(T_m\) değerini tahmin ediniz (en yakın 1 °C'ye yuvarlayınız).
Proteinin açılma tepkimesi için \(\Delta H^\circ\) ve \(\Delta S^\circ\) değerlerinin sıcaklıkla değişmediği varsayılırsa:
\[ \ln K=-\frac{\Delta H^\circ}{RT}+C \]
Burada \(C\) bir sabittir.
3.4 Uygun bir grafik çiziniz ve bu grafikten proteinin açılma tepkimesi için \(\Delta H^\circ\) ve \(\Delta S^\circ\) değerlerini belirleyiniz.
[\(\Delta H^\circ\) ve \(\Delta S^\circ\) değerlerini hesaplayamadıysanız, sorunun sonraki kısımlarında aşağıdaki yanlış değerleri kullanınız:
\(\Delta H^\circ=130\ \mathrm{kJ\,mol^{-1}}\); \(\Delta S^\circ=250\ \mathrm{J\,K^{-1}\,mol^{-1}}\).]
3.5 Açılma tepkimesinin 25 °C'deki denge sabitini hesaplayınız.
[\(K\) değerini hesaplayamadıysanız, sorunun sonraki kısımlarında aşağıdaki yanlış değeri kullanınız: \(K=3.6\cdot10^{-6}\)]
CI2 proteininin katlanma tepkimesinin birinci dereceden hız sabiti, açılmış protein içeren bir örneğin yeniden katlanmasına izin verildiğinde floresans şiddeti izlenerek belirlenebilir (genellikle çözeltinin pH'ı değiştirilir). Açılmış CI2'nin \(1.0\ \mu\mathrm{M}\) derişimli bir örneğinin yeniden katlanmasına izin verildiğinde, protein derişimi 25 °C sıcaklıkta ölçülmüştür:
| zaman / ms | 0 | 10 | 20 | 30 | 40 |
|---|---|---|---|---|---|
| derişim / \(\mu\mathrm{M}\) | 1 | 0.64 | 0.36 | 0.23 | 0.14 |
3.6 Uygun bir grafik çiziniz ve bu grafikten proteinin katlanma tepkimesinin 25 °C'deki hız sabitini, \(k_f\), belirleyiniz.
[\(k_f\) değerini hesaplayamadıysanız, sorunun sonraki kısımlarında aşağıdaki yanlış değeri kullanınız: \(k_f=60\ \mathrm{s^{-1}}\).]
3.7 Proteinin açılma tepkimesinin 25 °C'deki hız sabitini, \(k_u\), belirleyiniz.
3.8 Proteinin katlanma tepkimesinin 20 °C'deki hız sabiti \(33\ \mathrm{s^{-1}}\)'dir. Proteinin katlanma tepkimesinin aktivasyon enerjisini hesaplayınız.
Soru metni resmi İngilizce metinden çevrilmiştir.
Cevaplar
-
3.1 Sırasıyla \(58,60,62,64,66\,^\circ\mathrm C\) sıcaklıklarında: \[ \boxed{x=0.273,\ 0.409,\ 0.591,\ 0.727,\ 0.864.} \]
-
3.2 \[ \boxed{K=\frac{x}{1-x}} \] Buradan, aynı sıcaklık sırasıyla, \[ \boxed{K=0.375,\ 0.692,\ 1.44,\ 2.67,\ 6.33.} \] elde edilir.
-
3.3 \(\boxed{T_m\approx61\,^\circ\mathrm C}\).
-
3.4 \(1/T\)'ye karşı \(\ln K\) grafiğini çiziniz: \[ \boxed{\Delta H^\circ\approx+327\ \mathrm{kJ\,mol^{-1}},\qquad \Delta S^\circ\approx+978\ \mathrm{J\,K^{-1}\,mol^{-1}}.} \]
-
3.5 \(\boxed{K(25\,^\circ\mathrm C)\approx7.0\times10^{-7}}\).
-
3.6 Zamana karşı \(\ln([U]_t/[U]_0)\) grafiğini çiziniz: \[ \boxed{k_f\approx49.6\ \mathrm{s^{-1}}\approx50\ \mathrm{s^{-1}}.} \]
-
3.7 \(\boxed{k_u\approx3.5\times10^{-5}\ \mathrm{s^{-1}}}\).
-
3.8 \(\boxed{E_a\approx59\ \mathrm{kJ\,mol^{-1}}}\); grafikten yuvarlanarak elde edilen \(k_f=50\ \mathrm{s^{-1}}\) kullanılırsa yaklaşık \(60\ \mathrm{kJ\,mol^{-1}}\).
Çözüm
\(F\) ve \(U\), sırasıyla katlanmış ve açılmış kimotripsin inhibitörü 2'yi (CI2) göstersin. Bunlar aynı proteinin farklı konformasyon durumlarıdır. Amino asit dizisi verilmediğinden, verilerden moleküler bir SMILES belirtimi elde edilemez; sıradan bir SMILES gösterimi, proteinin katlanmış ve açılmış konformasyonları arasındaki farkı tanımlamaz.
Aşağıdaki sayısal sonuçlar, beş noktanın tamamına en küçük kareler yöntemiyle doğru uydurularak elde edilmiştir; sonraki hesaplamalarda yuvarlanmamış uyum parametreleri korunmuştur. \(R=8.314\ \mathrm{J\,K^{-1}\,mol^{-1}}\) kullanıyoruz.
3.1 — Açılmış moleküllerin kesri
Açılmış moleküllerin kesri \(x\) ise, katlanmış moleküllerin kesri \(1-x\)'tir. Floresans katkıları derişimle orantılı olduğundan ve toplandığından, ölçülen şiddet \(I\) şu şekildedir:
\[ I=21(1-x)+43x=21+22x. \]
Dolayısıyla,
\[ \boxed{x=\frac{I-21}{22}}. \]
| Sıcaklık / °C | \(I\) | \(x\) |
|---|---|---|
| 58 | 27 | \(6/22=0.2727\) |
| 60 | 30 | \(9/22=0.4091\) |
| 62 | 34 | \(13/22=0.5909\) |
| 64 | 37 | \(16/22=0.7273\) |
| 66 | 40 | \(19/22=0.8636\) |
3.2 — Denge sabitleri
Yukarıda tanımlanan durum etiketleri kullanılarak yazılan açılma dengesi
\[ \ce{F <=> U}, \]
için denge sabiti
\[ K=\frac{[U]}{[F]}. \]
şeklindedir. Toplam protein derişimi \(c_{\mathrm{tot}}\) ile gösterilirse,
\[ [U]=xc_{\mathrm{tot}},\qquad [F]=(1-x)c_{\mathrm{tot}}, \]
dolayısıyla
\[ \boxed{K=\frac{x}{1-x}=\frac{I-21}{43-I}}. \]
| Sıcaklık / °C | \(K\) |
|---|---|
| 58 | \(6/16=0.375\) |
| 60 | \(9/13=0.6923\) |
| 62 | \(13/9=1.4444\) |
| 64 | \(16/6=2.6667\) |
| 66 | \(19/3=6.3333\) |
Bu denge sabitleri boyutsuzdur.
3.3 — Erime sıcaklığı
Erime sıcaklığında,
\[ x=\frac12,\qquad K=1. \]
Buna karşılık gelen floresans şiddeti
\[ I_m=\frac{21+43}{2}=32. \]
olur. Bu değer, 60 °C'deki 30 şiddeti ile 62 °C'deki 34 şiddeti arasındadır. Doğrusal interpolasyonla
\[ T_m=60+\frac{32-30}{34-30}(62-60) =61\,^\circ\mathrm C. \]
elde edilir. Dolayısıyla, en yakın dereceye yuvarlandığında,
\[ \boxed{T_m=61\,^\circ\mathrm C}. \]
3.4 — Açılma entalpisi ve entropisi
Termodinamik bağıntılar
\[ \Delta G^\circ=\Delta H^\circ-T\Delta S^\circ \]
ve
\[ \Delta G^\circ=-RT\ln K \]
birlikte kullanıldığında
\[ \ln K=-\frac{\Delta H^\circ}{R}\frac1T +\frac{\Delta S^\circ}{R}. \]
elde edilir. Bu nedenle, mutlak sıcaklıkları kullanarak düşey eksende \(\ln K\), yatay eksende ise \(\mathrm{K^{-1}}\) biriminde \(1/T\) olacak şekilde bir grafik çiziniz.
| \(T\) / K | \(1/T\) / \(\mathrm{K^{-1}}\) | \(\ln K\) |
|---|---|---|
| 331.15 | 0.00301978 | −0.98083 |
| 333.15 | 0.00300165 | −0.36772 |
| 335.15 | 0.00298374 | 0.36772 |
| 337.15 | 0.00296604 | 0.98083 |
| 339.15 | 0.00294855 | 1.84583 |
Noktalar yaklaşık olarak azalan bir doğru üzerinde yer alır. En küçük kareler yöntemiyle doğru uydurulduğunda
\[ \ln K= -\left(3.93049\times10^4\ \mathrm K\right)\frac1T +117.65318. \]
elde edilir. Eğim \(-\Delta H^\circ/R\) olduğundan,
\[ \Delta H^\circ =-R(\text{eğim}) \approx (8.314)(3.93049\times10^4) \ \mathrm{J\,mol^{-1}}. \]
Böylece,
\[ \boxed{\Delta H^\circ\approx+327\ \mathrm{kJ\,mol^{-1}}}. \]
Düşey ekseni kesim noktası \(C=\Delta S^\circ/R\) olduğundan,
\[ \Delta S^\circ=RC \approx(8.314)(117.65318) \ \mathrm{J\,K^{-1}\,mol^{-1}}, \]
ve dolayısıyla
\[ \boxed{\Delta S^\circ\approx+978\ \mathrm{J\,K^{-1}\,mol^{-1}}}. \]
Açılma endotermiktir ve standart entropi değişimi pozitiftir. Tutarlılığı kontrol etmek için, uydurulan doğrudan
\[ T_m=\frac{\Delta H^\circ}{\Delta S^\circ} \approx334.07\ \mathrm K =60.92\,^\circ\mathrm C, \]
elde edilir; bu, 3.3 kısmıyla tutarlıdır.
3.5 — 25 °C'deki denge sabiti
\(25\,^\circ\mathrm C\)'de,
\[ T=298.15\ \mathrm K. \]
Uydurulan doğrunun denklemini doğrudan kullanmak, ekstrapolasyondaki yuvarlama hatalarını önler:
\[ \ln K =-\frac{39304.939}{298.15}+117.65318 =-14.1762. \]
Dolayısıyla,
\[ K=e^{-14.1762}=6.97\times10^{-7}, \]
böylece
\[ \boxed{K(25\,^\circ\mathrm C)\approx7.0\times10^{-7}}. \]
Denge büyük ölçüde katlanmış protein tarafındadır.
3.6 — Katlanma hız sabiti
Kinetik tablosundaki azalan derişimler açılmış proteine aittir. 25 °C'de dengedeki açılmış protein kesri yalnızca
\[ x_{\mathrm{eq}}=\frac{K}{1+K}\approx7.0\times10^{-7}, \]
olduğundan, bu ölçümler boyunca ters yöndeki açılma ihmal edilebilir. Bu nedenle birinci dereceden katlanma denklemi
\[ -\frac{d[U]}{dt}=k_f[U]. \]
şeklindedir. İntegral alındığında
\[ [U]_t=[U]_0e^{-k_ft}, \]
veya
\[ \ln\left(\frac{[U]_t}{[U]_0}\right)=-k_ft. \]
elde edilir. Düşey eksende \(\ln([U]_t/[U]_0)\), yatay eksende ise saniye cinsinden \(t\) olacak şekilde bir grafik çiziniz.
| \(t\) / s | \([U]_t/[U]_0\) | \(\ln([U]_t/[U]_0)\) |
|---|---|---|
| 0.000 | 1.00 | 0.00000 |
| 0.010 | 0.64 | −0.44629 |
| 0.020 | 0.36 | −1.02165 |
| 0.030 | 0.23 | −1.46968 |
| 0.040 | 0.14 | −1.96611 |
Grafik, yaklaşık olarak orijinden geçen negatif eğimli bir doğrudur. En küçük kareler yöntemiyle doğru uydurulduğunda
\[ \ln\left(\frac{[U]_t}{[U]_0}\right) =0.01038-\left(49.556\ \mathrm{s^{-1}}\right)t. \]
elde edilir. Sonuç olarak,
\[ \boxed{k_f=49.6\ \mathrm{s^{-1}}\approx50\ \mathrm{s^{-1}}}. \]
Tersinirliği tam olarak hesaba katan bir yaklaşımda, logaritma alınmadan önce denge derişimi çıkarılır ve azalma sabiti \(k_f+k_u\) olurdu. Bu verilerin hassasiyetinde söz konusu düzeltme ihmal edilebilir.
3.7 — Açılma hız sabiti
Dengede açılma ve katlanma hızları eşittir:
\[ k_u[F]_{\mathrm{eq}}=k_f[U]_{\mathrm{eq}}. \]
Dolayısıyla,
\[ \frac{k_u}{k_f} =\frac{[U]_{\mathrm{eq}}}{[F]_{\mathrm{eq}}} =K, \]
böylece
\[ k_u=Kk_f. \]
Yuvarlanmamış sonuçlar kullanıldığında,
\[ k_u=(6.9718\times10^{-7})(49.556\ \mathrm{s^{-1}}) =3.4549\times10^{-5}\ \mathrm{s^{-1}}. \]
Böylece,
\[ \boxed{k_u\approx3.5\times10^{-5}\ \mathrm{s^{-1}}}. \]
3.8 — Katlanmanın aktivasyon enerjisi
Arrhenius denklemi
\[ k_f=Ae^{-E_a/(RT)}. \]
şeklindedir. Bu sıcaklık aralığında üstel öncesi çarpanın sabit olduğu varsayılırsa,
\[ \ln\left(\frac{k_2}{k_1}\right) =\frac{E_a}{R}\left(\frac1{T_1}-\frac1{T_2}\right). \]
Burada,
\[ T_1=293.15\ \mathrm K,\quad k_1=33\ \mathrm{s^{-1}}, \]
\[ T_2=298.15\ \mathrm K,\quad k_2=49.556\ \mathrm{s^{-1}}. \]
Dolayısıyla,
\[ E_a= \frac{R\ln(k_2/k_1)} {1/T_1-1/T_2} = \frac{ (8.314\ \mathrm{J\,K^{-1}\,mol^{-1}}) \ln(49.556/33) }{ (1/293.15-1/298.15)\ \mathrm{K^{-1}} }. \]
Buradan
\[ E_a\approx5.91\times10^4\ \mathrm{J\,mol^{-1}}, \]
veya
\[ \boxed{E_a\approx59\ \mathrm{kJ\,mol^{-1}}}. \]
elde edilir. Grafikten yuvarlanarak elde edilen \(k_f=50\ \mathrm{s^{-1}}\) kullanıldığında, grafiksel hassasiyetle tutarlı olarak yaklaşık \(60\ \mathrm{kJ\,mol^{-1}}\) bulunur.
Çözüm, resmi çözümle karşılaştırılarak kontrol edildi.
IChO 2009 · Problema teórico 3
Plegamiento de proteínas
La reacción de desplegamiento de muchas proteínas pequeñas puede representarse mediante el equilibrio:
Puede suponerse que la reacción de plegamiento de la proteína tiene lugar en una sola etapa. La posición de este equilibrio cambia con la temperatura; la temperatura de fusión \(T_m\) se define como la temperatura a la que la mitad de las moléculas están desplegadas y la otra mitad están plegadas.
Se midió la intensidad de la señal de fluorescencia a una longitud de onda de 356 nm de una muestra de \(1.0\ \mu\mathrm{M}\) (\(\mathrm{M}=\mathrm{mol\,dm^{-3}}\)) de la proteína inhibidor de la quimotripsina 2 (CI2) en función de la temperatura en el intervalo de 58 a 66 °C:
| Temperatura / °C | 58 | 60 | 62 | 64 | 66 |
|---|---|---|---|---|---|
| Intensidad de fluorescencia (unidades arbitrarias) | 27 | 30 | 34 | 37 | 40 |
Una muestra de \(1.0\ \mu\mathrm{M}\) en la que todas las moléculas de proteína están plegadas da una señal de fluorescencia de 21 unidades a 356 nm. Una muestra de \(1.0\ \mu\mathrm{M}\) en la que todas las moléculas de proteína están desplegadas da una señal de fluorescencia de 43 unidades.
3.1 Suponiendo que la intensidad de fluorescencia de cada especie es directamente proporcional a su concentración, calcule la fracción, \(x\), de moléculas desplegadas presentes a cada temperatura.
3.2 Escriba una expresión para la constante de equilibrio, \(K\), en función de \(x\) y, a partir de ella, calcule el valor de \(K\) a cada temperatura.
3.3 Estime el valor de \(T_m\) para esta proteína (redondeado al grado Celsius más próximo).
Si se supone que los valores de \(\Delta H^\circ\) y \(\Delta S^\circ\) para la reacción de desplegamiento de la proteína no varían con la temperatura, entonces:
\[ \ln K=-\frac{\Delta H^\circ}{RT}+C \]
donde \(C\) es una constante.
3.4 Trace una gráfica adecuada y, a partir de ella, determine los valores de \(\Delta H^\circ\) y \(\Delta S^\circ\) para la reacción de desplegamiento de la proteína.
[Si no ha podido calcular los valores de \(\Delta H^\circ\) y \(\Delta S^\circ\), utilice los siguientes valores incorrectos en los apartados posteriores del problema:
\(\Delta H^\circ=130\ \mathrm{kJ\,mol^{-1}}\); \(\Delta S^\circ=250\ \mathrm{J\,K^{-1}\,mol^{-1}}\).]
3.5 Calcule la constante de equilibrio de la reacción de desplegamiento a 25 °C.
[Si no ha podido calcular un valor de \(K\), utilice el siguiente valor incorrecto en los apartados posteriores del problema: \(K=3.6\cdot10^{-6}\)]
La constante de velocidad de primer orden de la reacción de plegamiento de la proteína CI2 puede determinarse siguiendo la intensidad de fluorescencia cuando se permite que una muestra de proteína desplegada vuelva a plegarse (normalmente se modifica el pH de la disolución). Se midió la concentración de proteína a una temperatura de 25 °C cuando se permitió que una muestra de \(1.0\ \mu\mathrm{M}\) de CI2 desplegada volviera a plegarse:
| tiempo / ms | 0 | 10 | 20 | 30 | 40 |
|---|---|---|---|---|---|
| concentración / \(\mu\mathrm{M}\) | 1 | 0.64 | 0.36 | 0.23 | 0.14 |
3.6 Trace una gráfica adecuada y, a partir de ella, determine el valor de la constante de velocidad de la reacción de plegamiento de la proteína, \(k_f\), a 25 °C.
[Si no ha podido calcular el valor de \(k_f\), utilice el siguiente valor incorrecto en los apartados posteriores de la pregunta: \(k_f=60\ \mathrm{s^{-1}}\).]
3.7 Determine el valor de la constante de velocidad de la reacción de desplegamiento de la proteína, \(k_u\), a 25 °C.
3.8 A 20 °C, la constante de velocidad de la reacción de plegamiento de la proteína es \(33\ \mathrm{s^{-1}}\). Calcule la energía de activación de la reacción de plegamiento de la proteína.
Enunciado traducido del texto oficial en inglés.
Respuestas
-
3.1 A \(58,60,62,64,66\,^\circ\mathrm C\), respectivamente: \[ \boxed{x=0.273,\ 0.409,\ 0.591,\ 0.727,\ 0.864.} \]
-
3.2 \[ \boxed{K=\frac{x}{1-x}} \] lo que da, en el mismo orden de temperaturas, \[ \boxed{K=0.375,\ 0.692,\ 1.44,\ 2.67,\ 6.33.} \]
-
3.3 \(\boxed{T_m\approx61\,^\circ\mathrm C}\).
-
3.4 Represente \(\ln K\) frente a \(1/T\): \[ \boxed{\Delta H^\circ\approx+327\ \mathrm{kJ\,mol^{-1}},\qquad \Delta S^\circ\approx+978\ \mathrm{J\,K^{-1}\,mol^{-1}}.} \]
-
3.5 \(\boxed{K(25\,^\circ\mathrm C)\approx7.0\times10^{-7}}\).
-
3.6 Represente \(\ln([U]_t/[U]_0)\) frente al tiempo: \[ \boxed{k_f\approx49.6\ \mathrm{s^{-1}}\approx50\ \mathrm{s^{-1}}.} \]
-
3.7 \(\boxed{k_u\approx3.5\times10^{-5}\ \mathrm{s^{-1}}}\).
-
3.8 \(\boxed{E_a\approx59\ \mathrm{kJ\,mol^{-1}}}\), o aproximadamente \(60\ \mathrm{kJ\,mol^{-1}}\) si se utiliza el valor redondeado a partir de la gráfica, \(k_f=50\ \mathrm{s^{-1}}\).
Solución
Sean \(F\) y \(U\) las formas plegada y desplegada del inhibidor de la quimotripsina 2 (CI2), respectivamente. Se trata de estados conformacionales de la misma proteína. No se proporciona su secuencia de aminoácidos, por lo que no puede especificarse una representación SMILES molecular a partir de los datos; una representación SMILES convencional no describiría la distinción entre sus conformaciones plegada y desplegada.
Los resultados numéricos que se presentan a continuación se obtienen mediante ajustes lineales por mínimos cuadrados a los cinco puntos, conservando los parámetros del ajuste sin redondear para los cálculos posteriores. Utilizamos \(R=8.314\ \mathrm{J\,K^{-1}\,mol^{-1}}\).
3.1 — Fracción de moléculas desplegadas
Si la fracción desplegada es \(x\), la fracción plegada es \(1-x\). Puesto que las contribuciones a la fluorescencia son proporcionales a la concentración y aditivas, la intensidad medida \(I\) es
\[ I=21(1-x)+43x=21+22x. \]
Por tanto,
\[ \boxed{x=\frac{I-21}{22}}. \]
| Temperatura / °C | \(I\) | \(x\) |
|---|---|---|
| 58 | 27 | \(6/22=0.2727\) |
| 60 | 30 | \(9/22=0.4091\) |
| 62 | 34 | \(13/22=0.5909\) |
| 64 | 37 | \(16/22=0.7273\) |
| 66 | 40 | \(19/22=0.8636\) |
3.2 — Constantes de equilibrio
Para el equilibrio de desplegamiento, utilizando los símbolos de los estados definidos anteriormente,
\[ \ce{F <=> U}, \]
la constante de equilibrio es
\[ K=\frac{[U]}{[F]}. \]
Si expresamos la concentración total de proteína como \(c_{\mathrm{tot}}\),
\[ [U]=xc_{\mathrm{tot}},\qquad [F]=(1-x)c_{\mathrm{tot}}, \]
se obtiene
\[ \boxed{K=\frac{x}{1-x}=\frac{I-21}{43-I}}. \]
| Temperatura / °C | \(K\) |
|---|---|
| 58 | \(6/16=0.375\) |
| 60 | \(9/13=0.6923\) |
| 62 | \(13/9=1.4444\) |
| 64 | \(16/6=2.6667\) |
| 66 | \(19/3=6.3333\) |
Estas constantes de equilibrio son adimensionales.
3.3 — Temperatura de fusión
A la temperatura de fusión,
\[ x=\frac12,\qquad K=1. \]
La intensidad de fluorescencia correspondiente es
\[ I_m=\frac{21+43}{2}=32. \]
Este valor se encuentra entre las intensidades de 30 a 60 °C y de 34 a 62 °C. La interpolación lineal da
\[ T_m=60+\frac{32-30}{34-30}(62-60) =61\,^\circ\mathrm C. \]
Por tanto, redondeando al grado más próximo,
\[ \boxed{T_m=61\,^\circ\mathrm C}. \]
3.4 — Entalpía y entropía de desplegamiento
Las relaciones termodinámicas
\[ \Delta G^\circ=\Delta H^\circ-T\Delta S^\circ \]
y
\[ \Delta G^\circ=-RT\ln K \]
dan
\[ \ln K=-\frac{\Delta H^\circ}{R}\frac1T +\frac{\Delta S^\circ}{R}. \]
Por tanto, represente \(\ln K\) en el eje vertical frente a \(1/T\), en \(\mathrm{K^{-1}}\), en el eje horizontal, utilizando temperaturas absolutas.
| \(T\) / K | \(1/T\) / \(\mathrm{K^{-1}}\) | \(\ln K\) |
|---|---|---|
| 331.15 | 0.00301978 | −0.98083 |
| 333.15 | 0.00300165 | −0.36772 |
| 335.15 | 0.00298374 | 0.36772 |
| 337.15 | 0.00296604 | 0.98083 |
| 339.15 | 0.00294855 | 1.84583 |
Los puntos se sitúan aproximadamente sobre una recta descendente. Un ajuste por mínimos cuadrados da
\[ \ln K= -\left(3.93049\times10^4\ \mathrm K\right)\frac1T +117.65318. \]
La pendiente es \(-\Delta H^\circ/R\), por lo que
\[ \Delta H^\circ =-R(\text{pendiente}) \approx (8.314)(3.93049\times10^4) \ \mathrm{J\,mol^{-1}}. \]
De ahí,
\[ \boxed{\Delta H^\circ\approx+327\ \mathrm{kJ\,mol^{-1}}}. \]
La ordenada en el origen es \(C=\Delta S^\circ/R\), lo que da
\[ \Delta S^\circ=RC \approx(8.314)(117.65318) \ \mathrm{J\,K^{-1}\,mol^{-1}}, \]
y, por tanto,
\[ \boxed{\Delta S^\circ\approx+978\ \mathrm{J\,K^{-1}\,mol^{-1}}}. \]
El desplegamiento es endotérmico y presenta una variación de entropía estándar positiva. Como comprobación de coherencia, la recta ajustada da
\[ T_m=\frac{\Delta H^\circ}{\Delta S^\circ} \approx334.07\ \mathrm K =60.92\,^\circ\mathrm C, \]
en concordancia con el apartado 3.3.
3.5 — Constante de equilibrio a 25 °C
A \(25\,^\circ\mathrm C\),
\[ T=298.15\ \mathrm K. \]
Utilizar directamente la ecuación ajustada evita errores de redondeo en la extrapolación:
\[ \ln K =-\frac{39304.939}{298.15}+117.65318 =-14.1762. \]
Por tanto,
\[ K=e^{-14.1762}=6.97\times10^{-7}, \]
de modo que
\[ \boxed{K(25\,^\circ\mathrm C)\approx7.0\times10^{-7}}. \]
El equilibrio favorece fuertemente a la proteína plegada.
3.6 — Constante de velocidad de plegamiento
Las concentraciones decrecientes de la tabla cinética corresponden a la proteína desplegada. Puesto que la fracción desplegada en el equilibrio a 25 °C es de tan solo
\[ x_{\mathrm{eq}}=\frac{K}{1+K}\approx7.0\times10^{-7}, \]
el desplegamiento inverso es despreciable durante estas mediciones. Por tanto, la ecuación de plegamiento de primer orden es
\[ -\frac{d[U]}{dt}=k_f[U]. \]
La integración da
\[ [U]_t=[U]_0e^{-k_ft}, \]
o bien
\[ \ln\left(\frac{[U]_t}{[U]_0}\right)=-k_ft. \]
Represente \(\ln([U]_t/[U]_0)\) en el eje vertical frente a \(t\), en segundos, en el eje horizontal.
| \(t\) / s | \([U]_t/[U]_0\) | \(\ln([U]_t/[U]_0)\) |
|---|---|---|
| 0.000 | 1.00 | 0.00000 |
| 0.010 | 0.64 | −0.44629 |
| 0.020 | 0.36 | −1.02165 |
| 0.030 | 0.23 | −1.46968 |
| 0.040 | 0.14 | −1.96611 |
La gráfica es aproximadamente una recta que pasa por el origen y tiene pendiente negativa. Un ajuste por mínimos cuadrados da
\[ \ln\left(\frac{[U]_t}{[U]_0}\right) =0.01038-\left(49.556\ \mathrm{s^{-1}}\right)t. \]
En consecuencia,
\[ \boxed{k_f=49.6\ \mathrm{s^{-1}}\approx50\ \mathrm{s^{-1}}}. \]
En un tratamiento reversible exacto, se restaría la concentración de equilibrio antes de tomar logaritmos, y la constante de decaimiento sería \(k_f+k_u\). La corrección es despreciable para la precisión de estos datos.
3.7 — Constante de velocidad de desplegamiento
En el equilibrio, las velocidades de desplegamiento y plegamiento son iguales:
\[ k_u[F]_{\mathrm{eq}}=k_f[U]_{\mathrm{eq}}. \]
Por tanto,
\[ \frac{k_u}{k_f} =\frac{[U]_{\mathrm{eq}}}{[F]_{\mathrm{eq}}} =K, \]
de modo que
\[ k_u=Kk_f. \]
Utilizando los resultados sin redondear,
\[ k_u=(6.9718\times10^{-7})(49.556\ \mathrm{s^{-1}}) =3.4549\times10^{-5}\ \mathrm{s^{-1}}. \]
Así,
\[ \boxed{k_u\approx3.5\times10^{-5}\ \mathrm{s^{-1}}}. \]
3.8 — Energía de activación del plegamiento
La ecuación de Arrhenius es
\[ k_f=Ae^{-E_a/(RT)}. \]
Suponiendo que el factor preexponencial es constante en este intervalo de temperaturas,
\[ \ln\left(\frac{k_2}{k_1}\right) =\frac{E_a}{R}\left(\frac1{T_1}-\frac1{T_2}\right). \]
En este caso,
\[ T_1=293.15\ \mathrm K,\quad k_1=33\ \mathrm{s^{-1}}, \]
\[ T_2=298.15\ \mathrm K,\quad k_2=49.556\ \mathrm{s^{-1}}. \]
Por tanto,
\[ E_a= \frac{R\ln(k_2/k_1)} {1/T_1-1/T_2} = \frac{ (8.314\ \mathrm{J\,K^{-1}\,mol^{-1}}) \ln(49.556/33) }{ (1/293.15-1/298.15)\ \mathrm{K^{-1}} }. \]
Esto da
\[ E_a\approx5.91\times10^4\ \mathrm{J\,mol^{-1}}, \]
o bien
\[ \boxed{E_a\approx59\ \mathrm{kJ\,mol^{-1}}}. \]
Utilizando \(k_f=50\ \mathrm{s^{-1}}\), redondeado a partir de la gráfica, se obtiene aproximadamente \(60\ \mathrm{kJ\,mol^{-1}}\), en consonancia con la precisión gráfica.
La solución se comprobó con la solución oficial.
IChO 2009 · 理论题 3
蛋白质折叠
许多小分子蛋白质的去折叠反应可用以下平衡表示:
可以假设蛋白质折叠反应是一步反应。此平衡的位置随温度而变化;熔解温度 \(T_m\) 定义为一半分子处于去折叠态、另一半分子处于折叠态时的温度。
在 58 至 66 °C 的温度范围内,测量浓度为 \(1.0\ \mu\mathrm{M}\)(\(\mathrm{M}=\mathrm{mol\,dm^{-3}}\))的胰凝乳蛋白酶抑制剂 2(CI2)蛋白质样品在 356 nm 波长处的荧光信号强度随温度的变化:
| 温度 / °C | 58 | 60 | 62 | 64 | 66 |
|---|---|---|---|---|---|
| 荧光强度(任意单位) | 27 | 30 | 34 | 37 | 40 |
对于浓度为 \(1.0\ \mu\mathrm{M}\)、所有蛋白质分子均处于折叠态的样品,其在 356 nm 处的荧光信号为 21 个单位。对于浓度为 \(1.0\ \mu\mathrm{M}\)、所有蛋白质分子均处于去折叠态的样品,其荧光信号为 43 个单位。
3.1 假设每种形态产生的荧光强度与其浓度成正比,计算各温度下去折叠态分子所占的分数 \(x\)。
3.2 给出用 \(x\) 表示平衡常数 \(K\) 的表达式,并据此计算各温度下的 \(K\) 值。
3.3 估算该蛋白质的 \(T_m\) 值(精确至 1 °C)。
假设蛋白质去折叠反应的 \(\Delta H^\circ\) 和 \(\Delta S^\circ\) 值不随温度变化,则:
\[ \ln K=-\frac{\Delta H^\circ}{RT}+C \]
其中 \(C\) 为常数。
3.4 绘制适当的图,并据此确定蛋白质去折叠反应的 \(\Delta H^\circ\) 和 \(\Delta S^\circ\) 值。
[如果未能计算出 \(\Delta H^\circ\) 和 \(\Delta S^\circ\) 的值,则在本题后续部分中使用以下不正确的数值:
\(\Delta H^\circ=130\ \mathrm{kJ\,mol^{-1}}\);\(\Delta S^\circ=250\ \mathrm{J\,K^{-1}\,mol^{-1}}\)。]
3.5 计算 25 °C 时去折叠反应的平衡常数。
[如果未能计算出 \(K\) 值,则在本题后续部分中使用以下不正确的数值:\(K=3.6\cdot10^{-6}\)]
让去折叠态蛋白质样品重新折叠(通常通过改变溶液的 pH 来实现),并跟踪测量荧光强度,即可确定 CI2 蛋白质折叠反应的一级反应速率常数。在 25 °C 下,让浓度为 \(1.0\ \mu\mathrm{M}\) 的去折叠态 CI2 样品重新折叠,并测量蛋白质浓度:
| 时间 / ms | 0 | 10 | 20 | 30 | 40 |
|---|---|---|---|---|---|
| 浓度 / \(\mu\mathrm{M}\) | 1 | 0.64 | 0.36 | 0.23 | 0.14 |
3.6 绘制适当的图,并据此确定 25 °C 时蛋白质折叠反应的速率常数 \(k_f\)。
[如果未能计算出 \(k_f\) 值,则在本题后续部分中使用以下不正确的数值:\(k_f=60\ \mathrm{s^{-1}}\)。]
3.7 确定 25 °C 时蛋白质去折叠反应的速率常数 \(k_u\)。
3.8 在 20 °C 时,蛋白质折叠反应的速率常数为 \(33\ \mathrm{s^{-1}}\)。计算蛋白质折叠反应的活化能。
题目译自官方英文原文。
答案
-
3.1 在 \(58,60,62,64,66\,^\circ\mathrm C\) 时,分别为: \[ \boxed{x=0.273,\ 0.409,\ 0.591,\ 0.727,\ 0.864.} \]
-
3.2 \[ \boxed{K=\frac{x}{1-x}} \] 按相同的温度顺序,得到 \[ \boxed{K=0.375,\ 0.692,\ 1.44,\ 2.67,\ 6.33.} \]
-
3.3 \(\boxed{T_m\approx61\,^\circ\mathrm C}\)。
-
3.4 绘制 \(\ln K\) 对 \(1/T\) 的图: \[ \boxed{\Delta H^\circ\approx+327\ \mathrm{kJ\,mol^{-1}},\qquad \Delta S^\circ\approx+978\ \mathrm{J\,K^{-1}\,mol^{-1}}.} \]
-
3.5 \(\boxed{K(25\,^\circ\mathrm C)\approx7.0\times10^{-7}}\)。
-
3.6 绘制 \(\ln([U]_t/[U]_0)\) 对时间的图: \[ \boxed{k_f\approx49.6\ \mathrm{s^{-1}}\approx50\ \mathrm{s^{-1}}.} \]
-
3.7 \(\boxed{k_u\approx3.5\times10^{-5}\ \mathrm{s^{-1}}}\)。
-
3.8 \(\boxed{E_a\approx59\ \mathrm{kJ\,mol^{-1}}}\),若采用从图上取整得到的 \(k_f=50\ \mathrm{s^{-1}}\),则约为 \(60\ \mathrm{kJ\,mol^{-1}}\)。
解答
用 \(F\) 和 \(U\) 分别表示折叠态和去折叠态的胰凝乳蛋白酶抑制剂 2(CI2)。它们是同一种蛋白质的不同构象状态。题目未提供其氨基酸序列,因此无法根据这些数据给出该分子的 SMILES;普通的 SMILES 也无法描述其折叠态与去折叠态构象之间的区别。
下列数值结果均通过对全部五个数据点进行最小二乘直线拟合得到,后续计算保留未经舍入的拟合参数。取 \(R=8.314\ \mathrm{J\,K^{-1}\,mol^{-1}}\)。
3.1 — 去折叠态分子的分数
若去折叠态分子的分数为 \(x\),则折叠态分子的分数为 \(1-x\)。由于各形态对荧光的贡献与其浓度成正比,且具有加和性,测得的强度 \(I\) 为
\[ I=21(1-x)+43x=21+22x. \]
因此,
\[ \boxed{x=\frac{I-21}{22}}. \]
| 温度 / °C | \(I\) | \(x\) |
|---|---|---|
| 58 | 27 | \(6/22=0.2727\) |
| 60 | 30 | \(9/22=0.4091\) |
| 62 | 34 | \(13/22=0.5909\) |
| 64 | 37 | \(16/22=0.7273\) |
| 66 | 40 | \(19/22=0.8636\) |
3.2 — 平衡常数
对于去折叠平衡,采用上文定义的状态符号,
\[ \ce{F <=> U}, \]
其平衡常数为
\[ K=\frac{[U]}{[F]}. \]
将蛋白质的总浓度记为 \(c_{\mathrm{tot}}\),则
\[ [U]=xc_{\mathrm{tot}},\qquad [F]=(1-x)c_{\mathrm{tot}}, \]
所以
\[ \boxed{K=\frac{x}{1-x}=\frac{I-21}{43-I}}. \]
| 温度 / °C | \(K\) |
|---|---|
| 58 | \(6/16=0.375\) |
| 60 | \(9/13=0.6923\) |
| 62 | \(13/9=1.4444\) |
| 64 | \(16/6=2.6667\) |
| 66 | \(19/3=6.3333\) |
这些平衡常数均为无量纲量。
3.3 — 熔解温度
在熔解温度下,
\[ x=\frac12,\qquad K=1. \]
相应的荧光强度为
\[ I_m=\frac{21+43}{2}=32. \]
该值介于 60 °C 时的强度 30 与 62 °C 时的强度 34 之间。通过线性插值得到
\[ T_m=60+\frac{32-30}{34-30}(62-60) =61\,^\circ\mathrm C. \]
因此,精确至整数摄氏度,
\[ \boxed{T_m=61\,^\circ\mathrm C}. \]
3.4 — 去折叠的焓变和熵变
由热力学关系式
\[ \Delta G^\circ=\Delta H^\circ-T\Delta S^\circ \]
和
\[ \Delta G^\circ=-RT\ln K \]
得到
\[ \ln K=-\frac{\Delta H^\circ}{R}\frac1T +\frac{\Delta S^\circ}{R}. \]
因此,采用绝对温度,以 \(\ln K\) 为纵坐标,以 \(1/T\) 为横坐标(单位为 \(\mathrm{K^{-1}}\))作图。
| \(T\) / K | \(1/T\) / \(\mathrm{K^{-1}}\) | \(\ln K\) |
|---|---|---|
| 331.15 | 0.00301978 | −0.98083 |
| 333.15 | 0.00300165 | −0.36772 |
| 335.15 | 0.00298374 | 0.36772 |
| 337.15 | 0.00296604 | 0.98083 |
| 339.15 | 0.00294855 | 1.84583 |
各数据点近似位于一条下降的直线上。最小二乘拟合得到
\[ \ln K= -\left(3.93049\times10^4\ \mathrm K\right)\frac1T +117.65318. \]
斜率为 \(-\Delta H^\circ/R\),所以
\[ \Delta H^\circ =-R(\text{斜率}) \approx (8.314)(3.93049\times10^4) \ \mathrm{J\,mol^{-1}}. \]
因此,
\[ \boxed{\Delta H^\circ\approx+327\ \mathrm{kJ\,mol^{-1}}}. \]
截距为 \(C=\Delta S^\circ/R\),由此得到
\[ \Delta S^\circ=RC \approx(8.314)(117.65318) \ \mathrm{J\,K^{-1}\,mol^{-1}}, \]
因此
\[ \boxed{\Delta S^\circ\approx+978\ \mathrm{J\,K^{-1}\,mol^{-1}}}. \]
去折叠过程吸热,且标准熵变为正。为检验结果的一致性,由拟合直线得到
\[ T_m=\frac{\Delta H^\circ}{\Delta S^\circ} \approx334.07\ \mathrm K =60.92\,^\circ\mathrm C, \]
与 3.3 部分的结果一致。
3.5 — 25 °C 时的平衡常数
在 \(25\,^\circ\mathrm C\) 时,
\[ T=298.15\ \mathrm K. \]
直接使用拟合方程可避免外推过程中的舍入误差:
\[ \ln K =-\frac{39304.939}{298.15}+117.65318 =-14.1762. \]
因此,
\[ K=e^{-14.1762}=6.97\times10^{-7}, \]
所以
\[ \boxed{K(25\,^\circ\mathrm C)\approx7.0\times10^{-7}}. \]
平衡强烈偏向折叠态蛋白质。
3.6 — 折叠速率常数
动力学数据表中逐渐减小的浓度指的是去折叠态蛋白质的浓度。由于 25 °C 时平衡状态下去折叠态分子的分数仅为
\[ x_{\mathrm{eq}}=\frac{K}{1+K}\approx7.0\times10^{-7}, \]
因此在这些测量过程中,逆向的去折叠反应可以忽略。故一级折叠反应的速率方程为
\[ -\frac{d[U]}{dt}=k_f[U]. \]
积分得到
\[ [U]_t=[U]_0e^{-k_ft}, \]
或
\[ \ln\left(\frac{[U]_t}{[U]_0}\right)=-k_ft. \]
以 \(\ln([U]_t/[U]_0)\) 为纵坐标,以 \(t\) 为横坐标(单位为秒)作图。
| \(t\) / s | \([U]_t/[U]_0\) | \(\ln([U]_t/[U]_0)\) |
|---|---|---|
| 0.000 | 1.00 | 0.00000 |
| 0.010 | 0.64 | −0.44629 |
| 0.020 | 0.36 | −1.02165 |
| 0.030 | 0.23 | −1.46968 |
| 0.040 | 0.14 | −1.96611 |
图像近似为一条通过原点、斜率为负的直线。最小二乘拟合得到
\[ \ln\left(\frac{[U]_t}{[U]_0}\right) =0.01038-\left(49.556\ \mathrm{s^{-1}}\right)t. \]
由此,
\[ \boxed{k_f=49.6\ \mathrm{s^{-1}}\approx50\ \mathrm{s^{-1}}}. \]
若对可逆反应进行精确处理,应在取对数前减去平衡浓度,此时衰减常数为 \(k_f+k_u\)。在这些数据的精度范围内,该修正可以忽略。
3.7 — 去折叠速率常数
在平衡时,去折叠速率与折叠速率相等:
\[ k_u[F]_{\mathrm{eq}}=k_f[U]_{\mathrm{eq}}. \]
因此,
\[ \frac{k_u}{k_f} =\frac{[U]_{\mathrm{eq}}}{[F]_{\mathrm{eq}}} =K, \]
所以
\[ k_u=Kk_f. \]
使用未经舍入的结果,
\[ k_u=(6.9718\times10^{-7})(49.556\ \mathrm{s^{-1}}) =3.4549\times10^{-5}\ \mathrm{s^{-1}}. \]
因此,
\[ \boxed{k_u\approx3.5\times10^{-5}\ \mathrm{s^{-1}}}. \]
3.8 — 折叠反应的活化能
阿伦尼乌斯方程为
\[ k_f=Ae^{-E_a/(RT)}. \]
假设在此温度区间内指前因子不变,则
\[ \ln\left(\frac{k_2}{k_1}\right) =\frac{E_a}{R}\left(\frac1{T_1}-\frac1{T_2}\right). \]
这里,
\[ T_1=293.15\ \mathrm K,\quad k_1=33\ \mathrm{s^{-1}}, \]
\[ T_2=298.15\ \mathrm K,\quad k_2=49.556\ \mathrm{s^{-1}}. \]
因此,
\[ E_a= \frac{R\ln(k_2/k_1)} {1/T_1-1/T_2} = \frac{ (8.314\ \mathrm{J\,K^{-1}\,mol^{-1}}) \ln(49.556/33) }{ (1/293.15-1/298.15)\ \mathrm{K^{-1}} }. \]
由此得到
\[ E_a\approx5.91\times10^4\ \mathrm{J\,mol^{-1}}, \]
或
\[ \boxed{E_a\approx59\ \mathrm{kJ\,mol^{-1}}}. \]
使用从图上取整得到的 \(k_f=50\ \mathrm{s^{-1}}\),结果约为 \(60\ \mathrm{kJ\,mol^{-1}}\),与作图法的精度相符。
解答已与官方解答核对。
IChO 2009 · Теоретическая задача 3
Сворачивание белка
Реакцию разворачивания многих небольших белков можно представить следующим равновесием:
Можно считать, что реакция сворачивания белка протекает в одну стадию. Положение этого равновесия изменяется с температурой; температура плавления \(T_m\) определяется как температура, при которой половина молекул находится в развёрнутом состоянии, а половина — в свёрнутом.
Интенсивность флуоресценции на длине волны 356 нм образца белка — ингибитора химотрипсина 2 (CI2) — с концентрацией \(1.0\ \mu\mathrm{M}\) (\(\mathrm{M}=\mathrm{mol\,dm^{-3}}\)) измеряли в зависимости от температуры в диапазоне от 58 до 66 °C:
| Температура / °C | 58 | 60 | 62 | 64 | 66 |
|---|---|---|---|---|---|
| Интенсивность флуоресценции (условные единицы) | 27 | 30 | 34 | 37 | 40 |
Образец с концентрацией \(1.0\ \mu\mathrm{M}\), в котором все молекулы белка находятся в свёрнутом состоянии, даёт сигнал флуоресценции 21 единицу на длине волны 356 нм. Образец с концентрацией \(1.0\ \mu\mathrm{M}\), в котором все молекулы белка находятся в развёрнутом состоянии, даёт сигнал флуоресценции 43 единицы.
3.1 Считая, что интенсивность флуоресценции каждой формы прямо пропорциональна её концентрации, рассчитайте долю развёрнутых молекул \(x\) при каждой температуре.
3.2 Запишите выражение для константы равновесия \(K\) через \(x\) и на его основе рассчитайте значение \(K\) при каждой температуре.
3.3 Оцените значение \(T_m\) для этого белка (с точностью до 1 °C).
Если считать, что значения \(\Delta H^\circ\) и \(\Delta S^\circ\) для реакции разворачивания белка не зависят от температуры, то:
\[ \ln K=-\frac{\Delta H^\circ}{RT}+C \]
где \(C\) — постоянная.
3.4 Постройте подходящий график и с его помощью определите значения \(\Delta H^\circ\) и \(\Delta S^\circ\) для реакции разворачивания белка.
[Если вам не удалось рассчитать значения \(\Delta H^\circ\) и \(\Delta S^\circ\), в последующих пунктах задачи используйте следующие неверные значения:
\(\Delta H^\circ=130\ \mathrm{kJ\,mol^{-1}}\); \(\Delta S^\circ=250\ \mathrm{J\,K^{-1}\,mol^{-1}}\).]
3.5 Рассчитайте константу равновесия реакции разворачивания при 25 °C.
[Если вам не удалось рассчитать значение \(K\), в последующих пунктах задачи используйте следующее неверное значение: \(K=3.6\cdot10^{-6}\)]
Константу скорости реакции первого порядка для сворачивания белка CI2 можно определить, наблюдая за интенсивностью флуоресценции после создания условий для повторного сворачивания образца развёрнутого белка (обычно изменяют pH раствора). Для образца развёрнутого CI2 с концентрацией \(1.0\ \mu\mathrm{M}\), которому дали возможность повторно свернуться, измеряли концентрацию белка при температуре 25 °C:
| Время / мс | 0 | 10 | 20 | 30 | 40 |
|---|---|---|---|---|---|
| Концентрация / \(\mu\mathrm{M}\) | 1 | 0.64 | 0.36 | 0.23 | 0.14 |
3.6 Постройте подходящий график и с его помощью определите значение константы скорости реакции сворачивания белка \(k_f\) при 25 °C.
[Если вам не удалось рассчитать значение \(k_f\), в последующих пунктах задачи используйте следующее неверное значение: \(k_f=60\ \mathrm{s^{-1}}\).]
3.7 Определите значение константы скорости реакции разворачивания белка \(k_u\) при 25 °C.
3.8 При 20 °C константа скорости реакции сворачивания белка составляет \(33\ \mathrm{s^{-1}}\). Рассчитайте энергию активации реакции сворачивания белка.
Условие переведено с официального английского текста.
Ответы
-
3.1 При \(58,60,62,64,66\,^\circ\mathrm C\) соответственно: \[ \boxed{x=0.273,\ 0.409,\ 0.591,\ 0.727,\ 0.864.} \]
-
3.2 \[ \boxed{K=\frac{x}{1-x}} \] что даёт в том же порядке температур \[ \boxed{K=0.375,\ 0.692,\ 1.44,\ 2.67,\ 6.33.} \]
-
3.3 \(\boxed{T_m\approx61\,^\circ\mathrm C}\).
-
3.4 Постройте график зависимости \(\ln K\) от \(1/T\): \[ \boxed{\Delta H^\circ\approx+327\ \mathrm{kJ\,mol^{-1}},\qquad \Delta S^\circ\approx+978\ \mathrm{J\,K^{-1}\,mol^{-1}}.} \]
-
3.5 \(\boxed{K(25\,^\circ\mathrm C)\approx7.0\times10^{-7}}\).
-
3.6 Постройте график зависимости \(\ln([U]_t/[U]_0)\) от времени: \[ \boxed{k_f\approx49.6\ \mathrm{s^{-1}}\approx50\ \mathrm{s^{-1}}.} \]
-
3.7 \(\boxed{k_u\approx3.5\times10^{-5}\ \mathrm{s^{-1}}}\).
-
3.8 \(\boxed{E_a\approx59\ \mathrm{kJ\,mol^{-1}}}\), или приблизительно \(60\ \mathrm{kJ\,mol^{-1}}\) при использовании округлённого значения, полученного по графику, \(k_f=50\ \mathrm{s^{-1}}\).
Решение
Обозначим через \(F\) и \(U\) свёрнутую и развёрнутую формы ингибитора химотрипсина 2 (CI2) соответственно. Это конформационные состояния одного и того же белка. Его аминокислотная последовательность не приведена, поэтому по имеющимся данным нельзя указать молекулярную запись SMILES; обычная запись SMILES не описывала бы различие между его свёрнутой и развёрнутой конформациями.
Приведённые ниже численные результаты получены путём аппроксимации всех пяти точек прямыми методом наименьших квадратов; для последующих расчётов сохранены неокруглённые параметры аппроксимации. Используем \(R=8.314\ \mathrm{J\,K^{-1}\,mol^{-1}}\).
3.1 — Доля развёрнутых молекул
Если доля развёрнутых молекул равна \(x\), то доля свёрнутых молекул равна \(1-x\). Поскольку вклады в интенсивность флуоресценции пропорциональны концентрации и складываются, измеренная интенсивность \(I\) равна
\[ I=21(1-x)+43x=21+22x. \]
Следовательно,
\[ \boxed{x=\frac{I-21}{22}}. \]
| Температура / °C | \(I\) | \(x\) |
|---|---|---|
| 58 | 27 | \(6/22=0.2727\) |
| 60 | 30 | \(9/22=0.4091\) |
| 62 | 34 | \(13/22=0.5909\) |
| 64 | 37 | \(16/22=0.7273\) |
| 66 | 40 | \(19/22=0.8636\) |
3.2 — Константы равновесия
Для равновесия разворачивания, с использованием введённых выше обозначений состояний,
\[ \ce{F <=> U}, \]
константа равновесия равна
\[ K=\frac{[U]}{[F]}. \]
Обозначая общую концентрацию белка через \(c_{\mathrm{tot}}\), получаем
\[ [U]=xc_{\mathrm{tot}},\qquad [F]=(1-x)c_{\mathrm{tot}}, \]
поэтому
\[ \boxed{K=\frac{x}{1-x}=\frac{I-21}{43-I}}. \]
| Температура / °C | \(K\) |
|---|---|
| 58 | \(6/16=0.375\) |
| 60 | \(9/13=0.6923\) |
| 62 | \(13/9=1.4444\) |
| 64 | \(16/6=2.6667\) |
| 66 | \(19/3=6.3333\) |
Эти константы равновесия безразмерны.
3.3 — Температура плавления
При температуре плавления
\[ x=\frac12,\qquad K=1. \]
Соответствующая интенсивность флуоресценции равна
\[ I_m=\frac{21+43}{2}=32. \]
Это значение находится между интенсивностями 30 при 60 °C и 34 при 62 °C. Линейная интерполяция даёт
\[ T_m=60+\frac{32-30}{34-30}(62-60) =61\,^\circ\mathrm C. \]
Следовательно, с округлением до целого градуса,
\[ \boxed{T_m=61\,^\circ\mathrm C}. \]
3.4 — Энтальпия и энтропия разворачивания
Термодинамические соотношения
\[ \Delta G^\circ=\Delta H^\circ-T\Delta S^\circ \]
и
\[ \Delta G^\circ=-RT\ln K \]
дают
\[ \ln K=-\frac{\Delta H^\circ}{R}\frac1T +\frac{\Delta S^\circ}{R}. \]
Таким образом, постройте график, откладывая \(\ln K\) по вертикальной оси, а \(1/T\), в \(\mathrm{K^{-1}}\), — по горизонтальной оси, используя абсолютные температуры.
| \(T\) / K | \(1/T\) / \(\mathrm{K^{-1}}\) | \(\ln K\) |
|---|---|---|
| 331.15 | 0.00301978 | −0.98083 |
| 333.15 | 0.00300165 | −0.36772 |
| 335.15 | 0.00298374 | 0.36772 |
| 337.15 | 0.00296604 | 0.98083 |
| 339.15 | 0.00294855 | 1.84583 |
Точки лежат приблизительно на убывающей прямой. Аппроксимация методом наименьших квадратов даёт
\[ \ln K= -\left(3.93049\times10^4\ \mathrm K\right)\frac1T +117.65318. \]
Угловой коэффициент равен \(-\Delta H^\circ/R\), поэтому
\[ \Delta H^\circ =-R(\text{угловой коэффициент}) \approx (8.314)(3.93049\times10^4) \ \mathrm{J\,mol^{-1}}. \]
Отсюда
\[ \boxed{\Delta H^\circ\approx+327\ \mathrm{kJ\,mol^{-1}}}. \]
Свободный член равен \(C=\Delta S^\circ/R\), что даёт
\[ \Delta S^\circ=RC \approx(8.314)(117.65318) \ \mathrm{J\,K^{-1}\,mol^{-1}}, \]
и, следовательно,
\[ \boxed{\Delta S^\circ\approx+978\ \mathrm{J\,K^{-1}\,mol^{-1}}}. \]
Разворачивание является эндотермическим процессом и сопровождается положительным стандартным изменением энтропии. Для проверки согласованности результатов используем полученную прямую:
\[ T_m=\frac{\Delta H^\circ}{\Delta S^\circ} \approx334.07\ \mathrm K =60.92\,^\circ\mathrm C, \]
что согласуется с пунктом 3.3.
3.5 — Константа равновесия при 25 °C
При \(25\,^\circ\mathrm C\)
\[ T=298.15\ \mathrm K. \]
Непосредственное использование уравнения аппроксимирующей прямой позволяет избежать ошибок округления при экстраполяции:
\[ \ln K =-\frac{39304.939}{298.15}+117.65318 =-14.1762. \]
Следовательно,
\[ K=e^{-14.1762}=6.97\times10^{-7}, \]
поэтому
\[ \boxed{K(25\,^\circ\mathrm C)\approx7.0\times10^{-7}}. \]
Равновесие сильно смещено в сторону свёрнутого белка.
3.6 — Константа скорости сворачивания
Убывающие значения концентрации в таблице кинетических данных относятся к развёрнутому белку. Поскольку равновесная доля развёрнутых молекул при 25 °C составляет всего
\[ x_{\mathrm{eq}}=\frac{K}{1+K}\approx7.0\times10^{-7}, \]
обратным процессом разворачивания за время этих измерений можно пренебречь. Поэтому кинетическое уравнение сворачивания первого порядка имеет вид
\[ -\frac{d[U]}{dt}=k_f[U]. \]
Интегрирование даёт
\[ [U]_t=[U]_0e^{-k_ft}, \]
или
\[ \ln\left(\frac{[U]_t}{[U]_0}\right)=-k_ft. \]
Постройте график, откладывая \(\ln([U]_t/[U]_0)\) по вертикальной оси, а \(t\), в секундах, — по горизонтальной.
| \(t\) / с | \([U]_t/[U]_0\) | \(\ln([U]_t/[U]_0)\) |
|---|---|---|
| 0.000 | 1.00 | 0.00000 |
| 0.010 | 0.64 | −0.44629 |
| 0.020 | 0.36 | −1.02165 |
| 0.030 | 0.23 | −1.46968 |
| 0.040 | 0.14 | −1.96611 |
График представляет собой приблизительно прямую, проходящую через начало координат и имеющую отрицательный угловой коэффициент. Аппроксимация методом наименьших квадратов даёт
\[ \ln\left(\frac{[U]_t}{[U]_0}\right) =0.01038-\left(49.556\ \mathrm{s^{-1}}\right)t. \]
Следовательно,
\[ \boxed{k_f=49.6\ \mathrm{s^{-1}}\approx50\ \mathrm{s^{-1}}}. \]
При точном учёте обратимости перед логарифмированием следовало бы вычесть равновесную концентрацию, а константа убывания была бы равна \(k_f+k_u\). При точности этих данных поправкой можно пренебречь.
3.7 — Константа скорости разворачивания
При равновесии скорости разворачивания и сворачивания равны:
\[ k_u[F]_{\mathrm{eq}}=k_f[U]_{\mathrm{eq}}. \]
Следовательно,
\[ \frac{k_u}{k_f} =\frac{[U]_{\mathrm{eq}}}{[F]_{\mathrm{eq}}} =K, \]
поэтому
\[ k_u=Kk_f. \]
Используя неокруглённые результаты, получаем
\[ k_u=(6.9718\times10^{-7})(49.556\ \mathrm{s^{-1}}) =3.4549\times10^{-5}\ \mathrm{s^{-1}}. \]
Таким образом,
\[ \boxed{k_u\approx3.5\times10^{-5}\ \mathrm{s^{-1}}}. \]
3.8 — Энергия активации сворачивания
Уравнение Аррениуса имеет вид
\[ k_f=Ae^{-E_a/(RT)}. \]
Считая предэкспоненциальный множитель постоянным в этом интервале температур, получаем
\[ \ln\left(\frac{k_2}{k_1}\right) =\frac{E_a}{R}\left(\frac1{T_1}-\frac1{T_2}\right). \]
Здесь
\[ T_1=293.15\ \mathrm K,\quad k_1=33\ \mathrm{s^{-1}}, \]
\[ T_2=298.15\ \mathrm K,\quad k_2=49.556\ \mathrm{s^{-1}}. \]
Отсюда
\[ E_a= \frac{R\ln(k_2/k_1)} {1/T_1-1/T_2} = \frac{ (8.314\ \mathrm{J\,K^{-1}\,mol^{-1}}) \ln(49.556/33) }{ (1/293.15-1/298.15)\ \mathrm{K^{-1}} }. \]
Это даёт
\[ E_a\approx5.91\times10^4\ \mathrm{J\,mol^{-1}}, \]
или
\[ \boxed{E_a\approx59\ \mathrm{kJ\,mol^{-1}}}. \]
Использование округлённого значения, полученного по графику, \(k_f=50\ \mathrm{s^{-1}}\) даёт приблизительно \(60\ \mathrm{kJ\,mol^{-1}}\), что согласуется с точностью графического метода.
Решение проверено по официальному решению.
IChO 2009 · مسألة نظرية 3
طيّ البروتين
يمكن تمثيل تفاعل انبساط كثير من البروتينات الصغيرة بالاتزان الآتي:
يمكنك افتراض أن تفاعل طيّ البروتين يحدث في خطوة واحدة. ويتغير موضع هذا الاتزان بتغير درجة الحرارة؛ وتُعرَّف درجة حرارة الانصهار \(T_m\) بأنها درجة الحرارة التي يكون عندها نصف الجزيئات منبسطًا والنصف الآخر مطويًا.
قِيست شدة إشارة الفلورة عند طول موجي قدره 356 nm لعينة بتركيز \(1.0\ \mu\mathrm{M}\) (\(\mathrm{M}=\mathrm{mol\,dm^{-3}}\)) من بروتين مثبط الكيموتربسين 2 (CI2)، بوصفها دالة في درجة الحرارة ضمن المجال من 58 إلى 66 °C:
| درجة الحرارة / °C | 58 | 60 | 62 | 64 | 66 |
|---|---|---|---|---|---|
| شدة الفلورة (وحدات اعتباطية) | 27 | 30 | 34 | 37 | 40 |
تعطي عينة بتركيز \(1.0\ \mu\mathrm{M}\)، تكون فيها جميع جزيئات البروتين مطوية، إشارة فلورة قدرها 21 وحدة عند 356 nm. وتعطي عينة بتركيز \(1.0\ \mu\mathrm{M}\)، تكون فيها جميع جزيئات البروتين منبسطة، إشارة فلورة قدرها 43 وحدة.
3.1 بافتراض أن شدة الفلورة الصادرة عن كل نوع تتناسب طرديًا مع تركيزه، احسب الكسر \(x\) للجزيئات المنبسطة الموجودة عند كل درجة حرارة.
3.2 أعطِ تعبيرًا لثابت الاتزان \(K\) بدلالة \(x\)، ثم احسب منه قيمة \(K\) عند كل درجة حرارة.
3.3 قدِّر قيمة \(T_m\) لهذا البروتين (لأقرب 1 °C).
بافتراض أن قيمتي \(\Delta H^\circ\) و\(\Delta S^\circ\) لتفاعل انبساط البروتين لا تتغيران بتغير درجة الحرارة، فإن:
\[ \ln K=-\frac{\Delta H^\circ}{RT}+C \]
حيث \(C\) ثابت.
3.4 ارسم تمثيلًا بيانيًا مناسبًا، وحدِّد منه قيمتي \(\Delta H^\circ\) و\(\Delta S^\circ\) لتفاعل انبساط البروتين.
[إذا لم تتمكن من حساب قيمتي \(\Delta H^\circ\) و\(\Delta S^\circ\)، فعليك استخدام القيمتين غير الصحيحتين الآتيتين في الأجزاء اللاحقة من المسألة:
\(\Delta H^\circ=130\ \mathrm{kJ\,mol^{-1}}\)؛ \(\Delta S^\circ=250\ \mathrm{J\,K^{-1}\,mol^{-1}}\).]
3.5 احسب ثابت الاتزان لتفاعل الانبساط عند 25 °C.
[إذا لم تتمكن من حساب قيمة \(K\)، فعليك استخدام القيمة غير الصحيحة الآتية في الأجزاء اللاحقة من المسألة: \(K=3.6\cdot10^{-6}\)]
يمكن تحديد ثابت سرعة تفاعل طيّ البروتين CI2، وهو تفاعل من الرتبة الأولى، بتتبُّع شدة الفلورة عند السماح لعينة من البروتين المنبسط بأن تُطوى من جديد (عادةً بتغيير الأس الهيدروجيني للمحلول). وقد قِيس تركيز البروتين عند درجة حرارة 25 °C عندما سُمِح لعينة بتركيز \(1.0\ \mu\mathrm{M}\) من CI2 المنبسط بأن تُطوى من جديد:
| الزمن / ms | 0 | 10 | 20 | 30 | 40 |
|---|---|---|---|---|---|
| التركيز / \(\mu\mathrm{M}\) | 1 | 0.64 | 0.36 | 0.23 | 0.14 |
3.6 ارسم تمثيلًا بيانيًا مناسبًا، وحدِّد منه قيمة ثابت سرعة تفاعل طيّ البروتين \(k_f\) عند 25 °C.
[إذا لم تتمكن من حساب قيمة \(k_f\)، فعليك استخدام القيمة غير الصحيحة الآتية في الأجزاء اللاحقة من السؤال: \(k_f=60\ \mathrm{s^{-1}}\).]
3.7 حدِّد قيمة ثابت سرعة تفاعل انبساط البروتين \(k_u\) عند 25 °C.
3.8 عند 20 °C، يساوي ثابت سرعة تفاعل طيّ البروتين \(33\ \mathrm{s^{-1}}\). احسب طاقة التنشيط لتفاعل طيّ البروتين.
نص المسألة مترجم عن النص الإنجليزي الرسمي.
الإجابات
-
3.1 عند \(58,60,62,64,66\,^\circ\mathrm C\)، على الترتيب: \[ \boxed{x=0.273,\ 0.409,\ 0.591,\ 0.727,\ 0.864.} \]
-
3.2 \[ \boxed{K=\frac{x}{1-x}} \] وهذا يعطي، بترتيب درجات الحرارة نفسه، \[ \boxed{K=0.375,\ 0.692,\ 1.44,\ 2.67,\ 6.33.} \]
-
3.3 \(\boxed{T_m\approx61\,^\circ\mathrm C}\).
-
3.4 ارسم \(\ln K\) بدلالة \(1/T\): \[ \boxed{\Delta H^\circ\approx+327\ \mathrm{kJ\,mol^{-1}},\qquad \Delta S^\circ\approx+978\ \mathrm{J\,K^{-1}\,mol^{-1}}.} \]
-
3.5 \(\boxed{K(25\,^\circ\mathrm C)\approx7.0\times10^{-7}}\).
-
3.6 ارسم \(\ln([U]_t/[U]_0)\) بدلالة الزمن: \[ \boxed{k_f\approx49.6\ \mathrm{s^{-1}}\approx50\ \mathrm{s^{-1}}.} \]
-
3.7 \(\boxed{k_u\approx3.5\times10^{-5}\ \mathrm{s^{-1}}}\).
-
3.8 \(\boxed{E_a\approx59\ \mathrm{kJ\,mol^{-1}}}\)، أو نحو \(60\ \mathrm{kJ\,mol^{-1}}\) باستخدام القيمة \(k_f=50\ \mathrm{s^{-1}}\) المقربة من الرسم البياني.
الحل
لنرمز بـ\(F\) و\(U\) إلى مثبط الكيموتربسين 2 (CI2) المطوي والمنبسط، على الترتيب. وهاتان حالتان تشكُّليتان للبروتين نفسه. ولم يُعطَ تسلسل أحماضه الأمينية، ولذلك لا يمكن تحديد تمثيل SMILES للجزيء انطلاقًا من المعطيات؛ كما أن تمثيل SMILES المعتاد لا يصف الفرق بين تشكُّليه المطوي والمنبسط.
تستخدم النتائج العددية أدناه ملاءمات بخطوط مستقيمة بطريقة المربعات الصغرى للنقاط الخمس جميعها، مع الاحتفاظ بمعاملات الملاءمة دون تقريب لاستخدامها في الحسابات اللاحقة. ونستخدم \(R=8.314\ \mathrm{J\,K^{-1}\,mol^{-1}}\).
3.1 — كسر الجزيئات المنبسطة
إذا كان كسر الجزيئات المنبسطة هو \(x\)، فإن كسر الجزيئات المطوية هو \(1-x\). وبما أن إسهامات الفلورة تتناسب طرديًا مع التركيز وتُجمع معًا، فإن الشدة المقيسة \(I\) هي
\[ I=21(1-x)+43x=21+22x. \]
ومن ثم،
\[ \boxed{x=\frac{I-21}{22}}. \]
| درجة الحرارة / °C | \(I\) | \(x\) |
|---|---|---|
| 58 | 27 | \(6/22=0.2727\) |
| 60 | 30 | \(9/22=0.4091\) |
| 62 | 34 | \(13/22=0.5909\) |
| 64 | 37 | \(16/22=0.7273\) |
| 66 | 40 | \(19/22=0.8636\) |
3.2 — ثوابت الاتزان
لاتزان الانبساط، باستخدام رمزي الحالتين المعرَّفين أعلاه،
\[ \ce{F <=> U}, \]
يكون ثابت الاتزان
\[ K=\frac{[U]}{[F]}. \]
وبكتابة التركيز الكلي للبروتين على الصورة \(c_{\mathrm{tot}}\)،
\[ [U]=xc_{\mathrm{tot}},\qquad [F]=(1-x)c_{\mathrm{tot}}, \]
نحصل على
\[ \boxed{K=\frac{x}{1-x}=\frac{I-21}{43-I}}. \]
| درجة الحرارة / °C | \(K\) |
|---|---|
| 58 | \(6/16=0.375\) |
| 60 | \(9/13=0.6923\) |
| 62 | \(13/9=1.4444\) |
| 64 | \(16/6=2.6667\) |
| 66 | \(19/3=6.3333\) |
ثوابت الاتزان هذه عديمة الأبعاد.
3.3 — درجة حرارة الانصهار
عند درجة حرارة الانصهار،
\[ x=\frac12,\qquad K=1. \]
وتكون شدة الفلورة الموافقة
\[ I_m=\frac{21+43}{2}=32. \]
تقع هذه القيمة بين الشدة 30 عند 60 °C والشدة 34 عند 62 °C. ويعطي الاستيفاء الخطي
\[ T_m=60+\frac{32-30}{34-30}(62-60) =61\,^\circ\mathrm C. \]
إذن، لأقرب درجة،
\[ \boxed{T_m=61\,^\circ\mathrm C}. \]
3.4 — إنثالبي الانبساط وإنتروبيته
تعطي العلاقتان الديناميكيتان الحراريتان
\[ \Delta G^\circ=\Delta H^\circ-T\Delta S^\circ \]
و
\[ \Delta G^\circ=-RT\ln K \]
العلاقة
\[ \ln K=-\frac{\Delta H^\circ}{R}\frac1T +\frac{\Delta S^\circ}{R}. \]
لذلك، ارسم \(\ln K\) على المحور الرأسي بدلالة \(1/T\)، بوحدة \(\mathrm{K^{-1}}\)، على المحور الأفقي، باستخدام درجات الحرارة المطلقة.
| \(T\) / K | \(1/T\) / \(\mathrm{K^{-1}}\) | \(\ln K\) |
|---|---|---|
| 331.15 | 0.00301978 | −0.98083 |
| 333.15 | 0.00300165 | −0.36772 |
| 335.15 | 0.00298374 | 0.36772 |
| 337.15 | 0.00296604 | 0.98083 |
| 339.15 | 0.00294855 | 1.84583 |
تقع النقاط تقريبًا على خط مستقيم تنازلي. وتعطي الملاءمة بطريقة المربعات الصغرى
\[ \ln K= -\left(3.93049\times10^4\ \mathrm K\right)\frac1T +117.65318. \]
الميل هو \(-\Delta H^\circ/R\)، ومن ثم
\[ \Delta H^\circ =-R(\text{الميل}) \approx (8.314)(3.93049\times10^4) \ \mathrm{J\,mol^{-1}}. \]
وعليه،
\[ \boxed{\Delta H^\circ\approx+327\ \mathrm{kJ\,mol^{-1}}}. \]
المقطع هو \(C=\Delta S^\circ/R\)، وهذا يعطي
\[ \Delta S^\circ=RC \approx(8.314)(117.65318) \ \mathrm{J\,K^{-1}\,mol^{-1}}, \]
وبالتالي
\[ \boxed{\Delta S^\circ\approx+978\ \mathrm{J\,K^{-1}\,mol^{-1}}}. \]
الانبساط ماصّ للحرارة، ويصاحبه تغير موجب في الإنتروبية القياسية. وللتحقق من الاتساق، يعطي الخط الناتج عن الملاءمة
\[ T_m=\frac{\Delta H^\circ}{\Delta S^\circ} \approx334.07\ \mathrm K =60.92\,^\circ\mathrm C, \]
وهو ما يتفق مع الجزء 3.3.
3.5 — ثابت الاتزان عند 25 °C
عند \(25\,^\circ\mathrm C\)،
\[ T=298.15\ \mathrm K. \]
إن استخدام معادلة الملاءمة مباشرةً يجنِّب أخطاء التقريب عند الاستقراء:
\[ \ln K =-\frac{39304.939}{298.15}+117.65318 =-14.1762. \]
ولذلك،
\[ K=e^{-14.1762}=6.97\times10^{-7}, \]
ومن ثم
\[ \boxed{K(25\,^\circ\mathrm C)\approx7.0\times10^{-7}}. \]
يرجح الاتزان بشدة كفة البروتين المطوي.
3.6 — ثابت سرعة الطيّ
تشير التراكيز المتناقصة في جدول الحركية إلى البروتين المنبسط. وبما أن كسر الجزيئات المنبسطة عند الاتزان عند 25 °C لا يتجاوز
\[ x_{\mathrm{eq}}=\frac{K}{1+K}\approx7.0\times10^{-7}, \]
فإن تفاعل الانبساط العكسي مهمل خلال هذه القياسات. ولذلك تكون معادلة الطيّ من الرتبة الأولى
\[ -\frac{d[U]}{dt}=k_f[U]. \]
ويعطي التكامل
\[ [U]_t=[U]_0e^{-k_ft}, \]
أو
\[ \ln\left(\frac{[U]_t}{[U]_0}\right)=-k_ft. \]
ارسم \(\ln([U]_t/[U]_0)\) رأسيًا بدلالة \(t\)، بالثواني، أفقيًا.
| \(t\) / s | \([U]_t/[U]_0\) | \(\ln([U]_t/[U]_0)\) |
|---|---|---|
| 0.000 | 1.00 | 0.00000 |
| 0.010 | 0.64 | −0.44629 |
| 0.020 | 0.36 | −1.02165 |
| 0.030 | 0.23 | −1.46968 |
| 0.040 | 0.14 | −1.96611 |
الرسم البياني خط مستقيم تقريبًا يمر بنقطة الأصل وله ميل سالب. وتعطي الملاءمة بطريقة المربعات الصغرى
\[ \ln\left(\frac{[U]_t}{[U]_0}\right) =0.01038-\left(49.556\ \mathrm{s^{-1}}\right)t. \]
وبناءً على ذلك،
\[ \boxed{k_f=49.6\ \mathrm{s^{-1}}\approx50\ \mathrm{s^{-1}}}. \]
في معالجة دقيقة تأخذ عكوسية التفاعل في الحسبان، يُطرح تركيز الاتزان قبل أخذ اللوغاريتمات، ويكون ثابت التناقص \(k_f+k_u\). وهذا التصحيح مهمل ضمن دقة هذه البيانات.
3.7 — ثابت سرعة الانبساط
عند الاتزان، تتساوى سرعتا الانبساط والطيّ:
\[ k_u[F]_{\mathrm{eq}}=k_f[U]_{\mathrm{eq}}. \]
ولذلك،
\[ \frac{k_u}{k_f} =\frac{[U]_{\mathrm{eq}}}{[F]_{\mathrm{eq}}} =K, \]
ومن ثم
\[ k_u=Kk_f. \]
وباستخدام النتائج غير المقربة،
\[ k_u=(6.9718\times10^{-7})(49.556\ \mathrm{s^{-1}}) =3.4549\times10^{-5}\ \mathrm{s^{-1}}. \]
إذن،
\[ \boxed{k_u\approx3.5\times10^{-5}\ \mathrm{s^{-1}}}. \]
3.8 — طاقة التنشيط للطيّ
معادلة أرهينيوس هي
\[ k_f=Ae^{-E_a/(RT)}. \]
بافتراض ثبات العامل السابق للأسّ ضمن هذا المجال من درجات الحرارة،
\[ \ln\left(\frac{k_2}{k_1}\right) =\frac{E_a}{R}\left(\frac1{T_1}-\frac1{T_2}\right). \]
هنا،
\[ T_1=293.15\ \mathrm K,\quad k_1=33\ \mathrm{s^{-1}}, \]
\[ T_2=298.15\ \mathrm K,\quad k_2=49.556\ \mathrm{s^{-1}}. \]
وعليه،
\[ E_a= \frac{R\ln(k_2/k_1)} {1/T_1-1/T_2} = \frac{ (8.314\ \mathrm{J\,K^{-1}\,mol^{-1}}) \ln(49.556/33) }{ (1/293.15-1/298.15)\ \mathrm{K^{-1}} }. \]
وهذا يعطي
\[ E_a\approx5.91\times10^4\ \mathrm{J\,mol^{-1}}, \]
أو
\[ \boxed{E_a\approx59\ \mathrm{kJ\,mol^{-1}}}. \]
إن استخدام \(k_f=50\ \mathrm{s^{-1}}\) بعد التقريب من الرسم البياني يعطي نحو \(60\ \mathrm{kJ\,mol^{-1}}\)، وهو ما يتفق مع دقة القراءة البيانية.
تمت مراجعة الحل بمقارنته بالحل الرسمي.