IChO 2013 · Theory problem 8
Unique life of archaea
Archaea (or archaebacteria) are single-celled microorganisms. They significantly differ from bacteria and eukaryotes at the molecular level.
Enzymatic reaction of methylamine with water is the major energy source for some archaea. In a particular experiment, an archaea strain was cultivated at pH 7 under anaerobic (oxygen free) conditions with the nutrient medium containing \(\ce{^{13}CH3NH2}\) as the only energy source. After a certain incubation period, the gas over the archaea culture was sampled and analyzed. It was found that the gas contains two substances, A and B, in a molar ratio of 1 : 3 correspondingly (the sample density relative to \(\ce{H2}\) is 12.0).
8.1 Calculate the volume fractions (in %) of A and B in the mixture.
8.2 Determine A and B if there are no nitrogen atoms in the gas collected.
8.3 Write down the equation of enzymatic reaction of methylamine with water described in the above experiment using predominant form of each species.
Enzymes containing the residue of α-amino acid X, are found in many archaea capable of methylamine utilization. It is known that X:
- is composed of atoms of 4 elements;
- contains 18.8 mass % of oxygen;
- possesses the single individual tRNA and is incorporated into proteins of archaea during translation.
Amino acid L-lysine (see the structure in scheme below) was identified as the X precursor in archaea. All carbon and nitrogen atoms found in X originate from two starting lysine molecules. Different isotope-labelled L-lysines were introduced into a model system to clarify the biosynthetic pathways of X. The results are summarized in the table.
| Isotope composition of L-lysine | Molar mass (rounded to integer) of the X residue \(\ce{[RCH(NH2)CO]}\), bound to tRNA, \((\mathrm{g\,mol^{-1}})\) |
|---|---|
| Normal | 238 |
| All carbons \(\ce{^{13}C}\), all nitrogens \(\ce{^{15}N}\) | 253 |
| ε-amino group with \(\ce{^{15}N}\) | 239 |
8.4 Determine the molecular formula of X.
X is biosynthesized in archaea according to the following scheme (\(E_1\), \(E_2\), and \(E_3\) – enzymes):
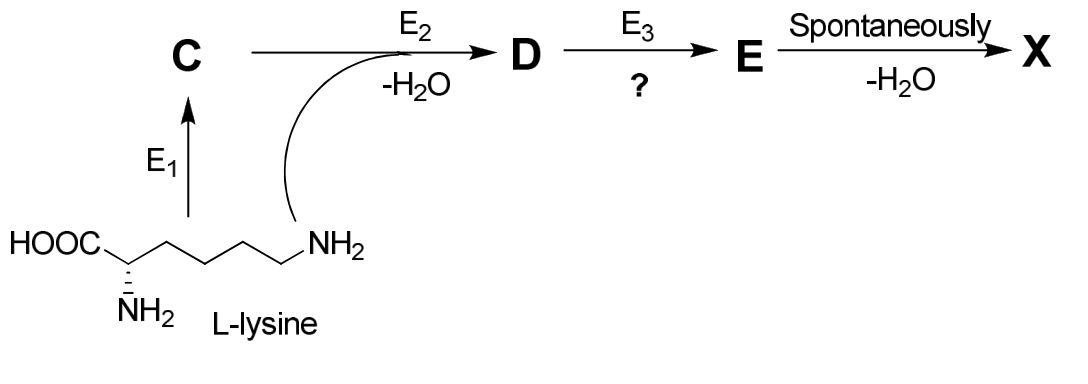
At the first step, lysine is transformed into its structural isomer (α-amino acid, C), whereas D contains a peptide bond, and E a formyl group \(\ce{-CHO}\). All reaction coefficients in the above scheme are equal to 1.
8.5 i) Give the chemical formula of C, D and E.
ii) From the reaction types given hereunder, choose (tick) only one corresponding to the enzyme \(E_3\) catalyzed reaction.
- ☐ Oxidative deamination
- ☐ Decarboxylation
- ☐ Intermolecular deamination
- ☐ Hydroxylation
- ☐ Peptide bond hydrolysis
X contains the following fragment:
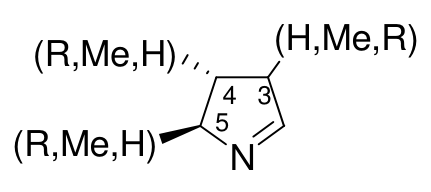
R is a massive substituent (\(M>100\ \mathrm{g\,mol^{-1}}\)). The 3rd carbon atom is non-asymmetric. The 4th and 5th carbon atoms are stereogenic centres. All carbon atoms in the cycle are bound with at least one hydrogen atom. Each substituent (H, Me and R) is found only once.
8.6 Determine the positions of substituents H, Me, and R.
8.7 Draw structural formulae of C and X with stereochemical details. Mark every stereocenter of X with either \(R\) or \(S\).
Only one codon is responsible for the incorporation of X residues into proteins in archaea. The nitrogen bases forming this codon contain two exocyclic amino groups and three exocyclic oxygen atoms in total.
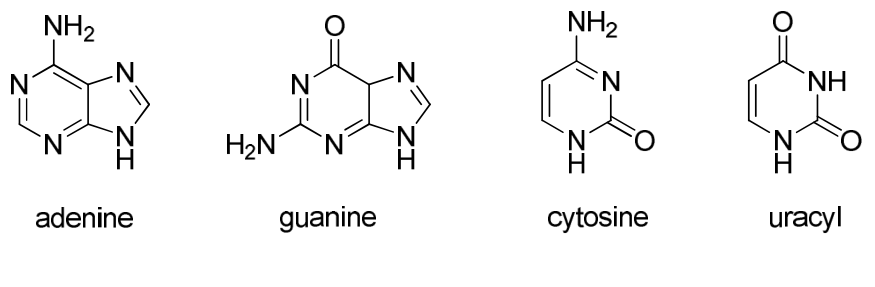
8.8 Determine the nucleotide composition of the codon by filling in the hereunder table. Write down the number of each nitrogen base in the codon encoding X. Tick only one box in each line.
The number of bases in the codon
| Nitrogen base | 1 | 2 | 3 | 0 or 1 | 1 or 2 |
|---|---|---|---|---|---|
| A | |||||
| C | |||||
| G | |||||
| U |
The fragment of mRNA coding sequence given below contains the codons encoding X residue incorporation into an archaea enzyme:
\(5'\ldots\mathrm{AAUAGAAUUAGCGGAACAGAGGGUGAC}\ldots3'\)
8.9 a Using the table of the genetic code, decide how many amino acid residues are incorporated into the enzyme chain due to this fragment translation.
8.9 b Write down the amino acid sequence translated from this fragment. Note that more than one X residue is found in the fragment.
Fill in the boxes below with the amino acid abbreviations (from N- to C-terminus).
Note that the number of boxes is excessive. If there is more than one possibility, write all separated by “/”. If the translation is stopped in a particular position, write “STOP” and leave all the boxes to the right empty.

(a) RNA codons for the twenty amino acids
Second base
| First base | U | C | A | G | Third base |
|---|---|---|---|---|---|
| U | Phe | Ser | Tyr | Cys | U |
| U | Phe | Ser | Tyr | Cys | C |
| U | Leu | Ser | STOP | STOP | A |
| U | Leu | Ser | STOP | Trp | G |
| C | Leu | Pro | His | Arg | U |
| C | Leu | Pro | His | Arg | C |
| C | Leu | Pro | Gln | Arg | A |
| C | Leu | Pro | Gln | Arg | G |
| A | Ile | Thr | Asn | Ser | U |
| A | Ile | Thr | Asn | Ser | C |
| A | Ile | Thr | Lys | Arg | A |
| A | Met (start) | Thr | Lys | Arg | G |
| G | Val | Ala | Asp | Gly | U |
| G | Val | Ala | Asp | Gly | C |
| G | Val | Ala | Glu | Gly | A |
| G | Val | Ala | Glu | Gly | G |
| Amino Acids Abbreviations: |
|---|
| Ala = Alanine |
| Arg = Arginine |
| Asp = Aspartic acid |
| Asn = Aaparagine |
| Cys = Cysteine |
| Glu = Glutamic Acid |
| Gln = Glutamine |
| Gly = Glycine |
| His = Histidine |
| Ile = Isoleucine |
| Leu = Leucine |
| Lys = Lysine |
| Met = Methionine |
| Phe = Phenylalanine |
| Pro = Proline |
| Ser = Serine |
| Thr = Threonine |
| Trp = Tryptophan |
| Tyr = Tyrosine |
| Val = Valine |
Official English text of the problem.
Answers
-
8.1: \(A=25\%\), \(B=75\%\) by volume.
-
8.2: A is carbon dioxide-\(^{13}\mathrm C\), \(\ce{^{13}CO2}\),
O=[13C]=O; B is methane-\(^{13}\mathrm C\), \(\ce{^{13}CH4}\),[13CH4]. -
8.3: \[ \boxed{\ce{4 ^{13}CH3NH3+ + 3 H2O -> 3 ^{13}CH4 + H^{13}CO3- + 4 NH4+ + H+}} \]
-
8.4: \(\boxed{\ce{C12H21N3O3}}\). X is pyrrolysine,
N[C@@H](CCCCNC(=O)[C@@H]1N=CC[C@H]1C)C(=O)O. -
8.5 i: \(\boxed{\mathbf C:\ce{C6H14N2O2};\quad \mathbf D:\ce{C12H26N4O3};\quad \mathbf E:\ce{C12H23N3O4}}\). Their names and structural SMILES are given in the solution.
-
8.5 ii: Oxidative deamination.
-
8.6: \(\boxed{3:\mathrm H;\quad4:\mathrm{Me};\quad5:\mathrm R}\).
-
8.7: C is \((2R,3R)\)-2,5-diamino-3-methylpentanoic acid,
N[C@H]([C@H](C)CCN)C(=O)O. X has three stereocentres: the lysine α-carbon is \(S\), and ring positions 4 and 5 are both \(R\). -
8.8: Tick 1 for A, 0 or 1 for C, 0 or 1 for G, and 1 for U. Exactly one of C and G is present.
-
8.9 a: \(\boxed{8\text{ amino acid residues}}\), reading UGA as selenocysteine in this enzyme-coding fragment.
-
8.9 b: From N- to C-terminus: \[ \boxed{\mathrm{X-Asn-X-Arg-Asn-Arg-Gly-Sec}} \] Here X is pyrrolysine and Sec is selenocysteine. Fill eight boxes and leave the remaining two empty.
Solution
8.1
At the same temperature and pressure, gas volumes are proportional to amounts in moles. Thus
\[ \phi_A=\frac{1}{1+3}\times100\%=25\%, \qquad \phi_B=\frac{3}{1+3}\times100\%=75\%. \]
8.2
The reference gas is dihydrogen, \(\ce{H2}\), [H][H]. Using the integer atomic masses appropriate to the supplied data,
\[ \overline M =D_{\ce{H2}}M_{\ce{H2}} =12.0\times2.00 =24.0\ \mathrm{g\,mol^{-1}}. \]
Since \(n_A:n_B=1:3\),
\[ \frac{M_A+3M_B}{4}=24.0\ \mathrm{g\,mol^{-1}}. \]
The substrate is methylamine-\(^{13}\mathrm C\), [13CH3]N. Its carbon has oxidation state \(-2\). Disproportionation can oxidize one carbon to \(+4\) in carbon dioxide and reduce three carbons to \(-4\) in methane: the first releases six electrons, while the other three consume two electrons each.
For the labelled products,
\[ M(\ce{^{13}CO2})=13+2(16)=45\ \mathrm{g\,mol^{-1}}, \] \[ M(\ce{^{13}CH4})=13+4(1)=17\ \mathrm{g\,mol^{-1}}. \]
Their mean molar mass is
\[ \frac{45+3(17)}4=24.0\ \mathrm{g\,mol^{-1}}, \]
which matches the measured density. Therefore A is labelled carbon dioxide and B is labelled methane, with the identities and SMILES given above.
8.3
At pH 7, the predominant aqueous forms are methylammonium rather than methylamine, ammonium rather than ammonia, and hydrogen carbonate rather than dissolved carbon dioxide.
The additional species in the equation are:
| Species | Name | SMILES |
|---|---|---|
| \(\ce{^{13}CH3NH3+}\) | Methylammonium-\(^{13}\mathrm C\) | [13CH3][NH3+] |
| \(\ce{H2O}\) | Water | O |
| \(\ce{H^{13}CO3-}\) | Hydrogen carbonate-\(^{13}\mathrm C\) | O[13C](=O)[O-] |
| \(\ce{NH4+}\) | Ammonium | [NH4+] |
| \(\ce{H+}\) | Hydrogen ion, conventionally representing a solvated proton | [H+] |
The balanced equation is
\[ \boxed{\ce{4 ^{13}CH3NH3+ + 3 H2O -> 3 ^{13}CH4 + H^{13}CO3- + 4 NH4+ + H+}}. \]
Both sides contain four carbon atoms, thirty hydrogen atoms, four nitrogen atoms and three oxygen atoms; both have total charge \(+4\).
The gaseous oxidized product remains carbon dioxide. Its relationship to the predominant dissolved form is
\[ \ce{^{13}CO2 + H2O <=> H^{13}CO3- + H+}. \]
8.4
The specified tRNA-bound residue is the acyl group \(\ce{RCH(NH2)CO}\). Recovering the free amino acid adds an OH group, of molar mass \(17\ \mathrm{g\,mol^{-1}}\). Hence
\[ M_X=238+17=255\ \mathrm{g\,mol^{-1}}. \]
An α-amino acid already contains C, H, N and O, so these are its four elements. Its number of oxygen atoms is
\[ n_{\mathrm O} =\frac{0.188(255)}{16} =2.996\approx3. \]
Each replacement of \(\ce{^{12}C}\) by \(\ce{^{13}C}\), or \(\ce{^{14}N}\) by \(\ce{^{15}N}\), raises the rounded molar mass by \(1\ \mathrm{g\,mol^{-1}}\). Thus
\[ n_{\mathrm C}+n_{\mathrm N}=253-238=15. \]
Two lysine molecules supply at most twelve carbons and four nitrogens. Selective labelling of both starting ε-amino groups raises the product mass by only one unit, so exactly one of those two nitrogen atoms is retained. Including the two possible α-amino nitrogens gives
\[ n_{\mathrm N}\leq3,\qquad n_{\mathrm C}\leq12. \]
Their sum is fifteen, so both upper bounds must be attained:
\[ n_{\mathrm C}=12,\qquad n_{\mathrm N}=3. \]
The remaining mass is hydrogen:
\[ n_{\mathrm H} =\frac{255-12(12)-3(14)-3(16)}{1} =21. \]
Therefore
\[ \boxed{X=\ce{C12H21N3O3}}. \]
The oxygen percentage checks:
\[ \frac{48}{255}\times100\%=18.82\%\approx18.8\%. \]
8.5 i
L-Lysine is \((2S)\)-2,6-diaminohexanoic acid, N[C@@H](CCCCN)C(=O)O, with molecular formula \(\ce{C6H14N2O2}\).
Because C is a structural isomer of lysine,
\[ \boxed{C=\ce{C6H14N2O2}}. \]
Condensation of one molecule of C with one lysine molecule eliminates one water molecule:
\[ \ce{C6H14N2O2 + C6H14N2O2 -> C12H26N4O3 + H2O}. \]
Therefore
\[ \boxed{D=\ce{C12H26N4O3}}. \]
Since E loses one water molecule to produce X,
\[ \ce{C12H23N3O4 -> C12H21N3O3 + H2O}, \]
and hence
\[ \boxed{E=\ce{C12H23N3O4}}. \]
The structures, with the stereochemistry established in 8.6–8.7, are as follows. These SMILES represent neutral free-acid forms.
| Compound | Name | SMILES |
|---|---|---|
| C | \((2R,3R)\)-2,5-Diamino-3-methylpentanoic acid; 3-methyl-D-ornithine | N[C@H]([C@H](C)CCN)C(=O)O |
| D | \(N^\varepsilon\)-[(2R,3R)-2,5-diamino-3-methylpentanoyl]-L-lysine | N[C@@H](CCCCNC(=O)[C@H](N)[C@H](C)CCN)C(=O)O |
| E | \(N^\varepsilon\)-[(2R,3R)-2-amino-3-methyl-5-oxopentanoyl]-L-lysine | N[C@@H](CCCCNC(=O)[C@H](N)[C@H](C)CC=O)C(=O)O |
Their condensed connectivities are
\[ \begin{aligned} C:\;&\ce{HOOC-CH(NH2)-CH(CH3)-CH2-CH2-NH2},\\ D:\;&\ce{HOOC-CH(NH2)-(CH2)4-NH-C(=O)-CH(NH2)-CH(CH3)-CH2-CH2-NH2},\\ E:\;&\ce{HOOC-CH(NH2)-(CH2)4-NH-C(=O)-CH(NH2)-CH(CH3)-CH2-CHO}. \end{aligned} \]
The amide in D joins the carboxyl group of C to the ε-amino group of the second lysine molecule.
8.5 ii
The terminal aminomethyl group in D becomes the aldehyde group in E. This is oxidative deamination.
Writing the neutral molecular forms, its oxidation half-reaction is
\[ \ce{C12H26N4O3 + H2O -> C12H23N3O4 + NH3 + 2 H+ + 2 e-}. \]
Here \(\ce{NH3}\) is ammonia, N. The electron acceptor is not specified in the problem.
The retained amino group of E then attacks its aldehyde carbon intramolecularly. Condensation eliminates water and forms the five-membered imine ring of X.
8.6
Position 3 is a saturated ring carbon with two different ring paths. A methyl or R substituent there would produce a stereogenic methine carbon. Since position 3 is expressly non-asymmetric, its indicated substituent must be H, making it a methylene group.
The remaining substituents, Me and R, occupy positions 4 and 5.
Reverse the final imine-forming condensation conceptually: the imine carbon at position 2 becomes the aldehyde, while the ring nitrogen becomes an amino group attached to position 5. Because precursor C is an α-amino acid, its carboxyl-derived carbonyl must be attached directly to that amino-bearing carbon. Thus the large carboxamide substituent is at position 5:
\[ \mathrm R=\ce{-C(=O)-NH-(CH2)4-CH(NH2)-COOH}. \]
This is the lysine-derived carboxamide substituent, represented with its ring attachment marked by [*] as [*]C(=O)NCCCC[C@H](N)C(=O)O. Its composition is \(\ce{C7H13N2O3}\), corresponding to approximately \(173\ \mathrm{g\,mol^{-1}}\), consistent with the stated mass condition.
Consequently,
\[ \boxed{3:\mathrm H,\qquad4:\mathrm{Me},\qquad5:\mathrm R}. \]
8.7
For C, the required structure is
\[ \ce{HOOC-CH(NH2)-CH(CH3)-CH2-CH2-NH2}, \]
with configurations \(\boxed{2R,3R}\).
A precise Fischer-projection description is: put the carboxyl group at the top and the \(\ce{CH2CH2NH2}\) chain at the bottom; place the amino group on the right at C2 and the methyl group on the right at C3, with hydrogen on the left at both centres. Its stereochemical SMILES is N[C@H]([C@H](C)CCN)C(=O)O.
For X, retain the five-membered ring orientation shown in the question:
- The double bond joins N1 and C2.
- C3 is a methylene group.
- C4 bears methyl on the dashed bond, directed away from the viewer.
- C5 bears R on the solid wedge, directed toward the viewer.
- The lysine α-carbon retains its \(S\) configuration.
The CIP priorities establish the ring configurations:
| Centre | Priorities, highest to lowest | Configuration |
|---|---|---|
| Ring C4 | Ring path through C5; ring path through C3; methyl; H | \(R\) |
| Ring C5 | Ring N; carbonyl carbon of R; ring C4; H | \(R\) |
| Lysine α-carbon | Amino N; carboxyl carbon; side-chain carbon; H | \(S\) |
For example, at ring C5 the carbonyl carbon has the comparison list \((\mathrm O,\mathrm O,\mathrm N)\), which outranks the \((\mathrm C,\mathrm C,\mathrm H)\) list of ring C4.
Thus X is pyrrolysine, with
\[ \boxed{\text{lysine }\alpha:S;\qquad\text{ring }4:R;\qquad\text{ring }5:R}. \]
Its complete stereochemical SMILES is
N[C@@H](CCCCNC(=O)[C@@H]1N=CC[C@H]1C)C(=O)O.
The wedges specify configuration; they do not require a particular fixed ring conformation.
8.8
The functional-group counts in the four bases are:
| Base | Name and SMILES | Exocyclic amino groups | Exocyclic oxygen atoms |
|---|---|---|---|
| A | Adenine, Nc1ncnc2[nH]cnc12 |
1 | 0 |
| C | Cytosine, Nc1cc[nH]c(=O)n1 |
1 | 1 |
| G | Guanine, Nc1nc2[nH]cnc2c(=O)[nH]1 |
1 | 1 |
| U | Uracil, O=c1cc[nH]c(=O)[nH]1 |
0 | 2 |
Let their numbers in the codon be \(a,c,g,u\). A codon contains three bases:
\[ a+c+g+u=3. \]
The two amino groups give
\[ a+c+g=2, \]
so \(u=1\). The three oxygen atoms give
\[ c+g+2u=3, \]
hence \(c+g=1\), and therefore \(a=1\).
The completed table is
| Nitrogen base | 1 | 2 | 3 | 0 or 1 | 1 or 2 |
|---|---|---|---|---|---|
| A | ✓ | ||||
| C | ✓ | ||||
| G | ✓ | ||||
| U | ✓ |
Thus the codon contains one A, one U, and either one C or one G. This determines composition, but not yet order.
8.9 a
A candidate X codon must contain exactly the bases AUC or AUG in some order. Checking the three reading frames, the first two contain no complete codons with either composition. The third frame gives
\[ 5'\ldots\mathrm{AA}\mid \mathrm{UAG}\mid \mathrm{AAU}\mid \mathrm{UAG}\mid \mathrm{CGG}\mid \mathrm{AAC}\mid \mathrm{AGA}\mid \mathrm{GGG}\mid \mathrm{UGA}\mid \mathrm C\ldots3'. \]
UAG occurs twice, whereas UGA occurs once. Since only one codon encodes X and more than one X residue occurs in the fragment,
\[ \boxed{\text{X codon}=\mathrm{UAG}}. \]
There are eight complete codons. The leading AA and trailing C are incomplete codons and contribute no residues to the requested count.
Since the fragment belongs to the coding sequence of the enzyme, the final complete codon, UGA, is read as selenocysteine in this enzyme-coding fragment. Therefore
\[ \boxed{8\text{ amino acid residues are incorporated}}. \]
8.9 b
The translation is
| Complete codon | Residue |
|---|---|
| UAG | X, pyrrolysine |
| AAU | Asn |
| UAG | X, pyrrolysine |
| CGG | Arg |
| AAC | Asn |
| AGA | Arg |
| GGG | Gly |
| UGA | Sec |
Hence, from N- to C-terminus,
\[ \boxed{\mathrm{X-Asn-X-Arg-Asn-Arg-Gly-Sec}}. \]
The additional amino acids are identified below. The SMILES describe their neutral free amino acids; incorporation into the protein gives the corresponding peptide residues.
| Abbreviation | Name | SMILES |
|---|---|---|
| Asn | L-Asparagine | N[C@@H](CC(=O)N)C(=O)O |
| Arg | L-Arginine | N[C@@H](CCCNC(=N)N)C(=O)O |
| Gly | Glycine | NCC(=O)O |
| Sec | L-Selenocysteine, with \(R\) configuration at its α-carbon | N[C@@H](C[SeH])C(=O)O |
Fill the first eight answer boxes with this sequence and leave the final two empty.
The solution was checked against the official solution.
IChO 2013 · Theorieaufgabe 8
Das einzigartige Leben der Archaeen
Archaeen (oder Archaebakterien) sind einzellige Mikroorganismen. Auf molekularer Ebene unterscheiden sie sich erheblich von Bakterien und Eukaryoten.
Die enzymatische Reaktion von Methylamin mit Wasser ist für einige Archaeen die wichtigste Energiequelle. In einem bestimmten Experiment wurde ein Archaeenstamm bei pH 7 unter anaeroben (sauerstofffreien) Bedingungen in einem Nährmedium kultiviert, das \(\ce{^{13}CH3NH2}\) als einzige Energiequelle enthielt. Nach einer gewissen Inkubationszeit wurde eine Probe des Gases über der Archaeenkultur entnommen und analysiert. Dabei wurde festgestellt, dass das Gas zwei Stoffe, A und B, im Stoffmengenverhältnis 1 : 3 enthält (die Dichte der Probe relativ zu \(\ce{H2}\) beträgt 12.0).
8.1 Berechnen Sie die Volumenanteile (in %) von A und B im Gemisch.
8.2 Bestimmen Sie A und B, wenn das aufgefangene Gas keine Stickstoffatome enthält.
8.3 Geben Sie die Gleichung der im obigen Experiment beschriebenen enzymatischen Reaktion von Methylamin mit Wasser an und verwenden Sie dabei die jeweils vorherrschende Form jeder Spezies.
Enzyme, die den Rest der α-Aminosäure X enthalten, kommen in vielen Archaeen vor, die Methylamin verwerten können. Über X ist bekannt:
- Es besteht aus Atomen von 4 Elementen;
- es enthält 18.8 Massen-% Sauerstoff;
- es besitzt eine einzige eigene tRNA und wird während der Translation in Proteine der Archaeen eingebaut.
Die Aminosäure L-Lysin (siehe die Struktur im untenstehenden Schema) wurde als Vorstufe von X in Archaeen identifiziert. Alle in X enthaltenen Kohlenstoff- und Stickstoffatome stammen aus zwei ursprünglichen Lysinmolekülen. Verschiedene isotopenmarkierte L-Lysine wurden in ein Modellsystem eingebracht, um die Biosynthesewege von X aufzuklären. Die Ergebnisse sind in der Tabelle zusammengefasst.
| Isotopenzusammensetzung von L-Lysin | Molare Masse (auf eine ganze Zahl gerundet) des an tRNA gebundenen X-Restes \(\ce{[RCH(NH2)CO]}\), \((\mathrm{g\,mol^{-1}})\) |
|---|---|
| Normal | 238 |
| Alle Kohlenstoffatome \(\ce{^{13}C}\), alle Stickstoffatome \(\ce{^{15}N}\) | 253 |
| ε-Aminogruppe mit \(\ce{^{15}N}\) | 239 |
8.4 Bestimmen Sie die Summenformel von X.
X wird in Archaeen nach dem folgenden Schema biosynthetisiert (\(E_1\), \(E_2\) und \(E_3\) – Enzyme):
Im ersten Schritt wird Lysin in sein Strukturisomer (α-Aminosäure, C) umgewandelt, während D eine Peptidbindung und E eine Formylgruppe \(\ce{-CHO}\) enthält. Alle Reaktionskoeffizienten im obigen Schema sind gleich 1.
8.5 i) Geben Sie die chemischen Formeln von C, D und E an.
ii) Wählen Sie aus den unten aufgeführten Reaktionstypen nur einen aus, der der durch das Enzym \(E_3\) katalysierten Reaktion entspricht, und kreuzen Sie ihn an.
- ☐ Oxidative Desaminierung
- ☐ Decarboxylierung
- ☐ Intermolekulare Desaminierung
- ☐ Hydroxylierung
- ☐ Hydrolyse einer Peptidbindung
X enthält das folgende Fragment:
R ist ein Substituent mit großer Masse (\(M>100\ \mathrm{g\,mol^{-1}}\)). Das 3. Kohlenstoffatom ist nicht asymmetrisch. Das 4. und das 5. Kohlenstoffatom sind stereogene Zentren. Alle Kohlenstoffatome im Ring sind an mindestens ein Wasserstoffatom gebunden. Jeder Substituent (H, Me und R) kommt nur einmal vor.
8.6 Bestimmen Sie die Positionen der Substituenten H, Me und R.
8.7 Zeichnen Sie die Strukturformeln von C und X mit stereochemischen Angaben. Kennzeichnen Sie jedes Stereozentrum von X mit \(R\) oder \(S\).
Nur ein Codon ist für den Einbau von X-Resten in Proteine der Archaeen verantwortlich. Die Stickstoffbasen, aus denen dieses Codon besteht, enthalten insgesamt zwei exocyclische Aminogruppen und drei exocyclische Sauerstoffatome.
8.8 Bestimmen Sie die Nukleotidzusammensetzung des Codons, indem Sie die untenstehende Tabelle ausfüllen. Geben Sie die Anzahl jeder Stickstoffbase im Codon an, das X codiert. Kreuzen Sie in jeder Zeile nur ein Kästchen an.
Die Anzahl der Basen im Codon
| Stickstoffbase | 1 | 2 | 3 | 0 oder 1 | 1 oder 2 |
|---|---|---|---|---|---|
| A | |||||
| C | |||||
| G | |||||
| U |
Das unten angegebene Fragment einer codierenden mRNA-Sequenz enthält die Codons, die den Einbau von X-Resten in ein Enzym der Archaeen codieren:
\(5'\ldots\mathrm{AAUAGAAUUAGCGGAACAGAGGGUGAC}\ldots3'\)
8.9 a Entscheiden Sie mithilfe der Tabelle des genetischen Codes, wie viele Aminosäurereste durch die Translation dieses Fragments in die Enzymkette eingebaut werden.
8.9 b Geben Sie die aus diesem Fragment translatierte Aminosäuresequenz an. Beachten Sie, dass das Fragment mehr als einen X-Rest enthält.
Tragen Sie die Aminosäureabkürzungen in die untenstehenden Kästchen ein (vom N- zum C-Terminus).
Beachten Sie, dass mehr Kästchen als nötig vorhanden sind. Wenn es mehr als eine Möglichkeit gibt, geben Sie alle durch „/“ getrennt an. Wenn die Translation an einer bestimmten Position abgebrochen wird, schreiben Sie „STOP“ und lassen Sie alle Kästchen rechts davon leer.
(a) RNA-Codons für die zwanzig Aminosäuren
Zweite Base
| Erste Base | U | C | A | G | Dritte Base |
|---|---|---|---|---|---|
| U | Phe | Ser | Tyr | Cys | U |
| U | Phe | Ser | Tyr | Cys | C |
| U | Leu | Ser | STOP | STOP | A |
| U | Leu | Ser | STOP | Trp | G |
| C | Leu | Pro | His | Arg | U |
| C | Leu | Pro | His | Arg | C |
| C | Leu | Pro | Gln | Arg | A |
| C | Leu | Pro | Gln | Arg | G |
| A | Ile | Thr | Asn | Ser | U |
| A | Ile | Thr | Asn | Ser | C |
| A | Ile | Thr | Lys | Arg | A |
| A | Met (Start) | Thr | Lys | Arg | G |
| G | Val | Ala | Asp | Gly | U |
| G | Val | Ala | Asp | Gly | C |
| G | Val | Ala | Glu | Gly | A |
| G | Val | Ala | Glu | Gly | G |
| Aminosäureabkürzungen: |
|---|
| Ala = Alanin |
| Arg = Arginin |
| Asp = Asparaginsäure |
| Asn = Asparagin |
| Cys = Cystein |
| Glu = Glutaminsäure |
| Gln = Glutamin |
| Gly = Glycin |
| His = Histidin |
| Ile = Isoleucin |
| Leu = Leucin |
| Lys = Lysin |
| Met = Methionin |
| Phe = Phenylalanin |
| Pro = Prolin |
| Ser = Serin |
| Thr = Threonin |
| Trp = Tryptophan |
| Tyr = Tyrosin |
| Val = Valin |
Aufgabentext aus dem offiziellen englischen Text übersetzt.
Antworten
-
8.1: \(A=25\%\), \(B=75\%\) nach Volumen.
-
8.2: A ist Kohlenstoffdioxid-\(^{13}\mathrm C\), \(\ce{^{13}CO2}\),
O=[13C]=O; B ist Methan-\(^{13}\mathrm C\), \(\ce{^{13}CH4}\),[13CH4]. -
8.3: \[ \boxed{\ce{4 ^{13}CH3NH3+ + 3 H2O -> 3 ^{13}CH4 + H^{13}CO3- + 4 NH4+ + H+}} \]
-
8.4: \(\boxed{\ce{C12H21N3O3}}\). X ist Pyrrolysin,
N[C@@H](CCCCNC(=O)[C@@H]1N=CC[C@H]1C)C(=O)O. -
8.5 i: \(\boxed{\mathbf C:\ce{C6H14N2O2};\quad \mathbf D:\ce{C12H26N4O3};\quad \mathbf E:\ce{C12H23N3O4}}\). Ihre Namen und strukturellen SMILES sind in der Lösung angegeben.
-
8.5 ii: Oxidative Desaminierung.
-
8.6: \(\boxed{3:\mathrm H;\quad4:\mathrm{Me};\quad5:\mathrm R}\).
-
8.7: C ist \((2R,3R)\)-2,5-Diamino-3-methylpentansäure,
N[C@H]([C@H](C)CCN)C(=O)O. X besitzt drei Stereozentren: Das α-Kohlenstoffatom des Lysins hat die Konfiguration \(S\), und die Ringpositionen 4 und 5 haben beide die Konfiguration \(R\). -
8.8: Kreuzen Sie 1 für A, 0 oder 1 für C, 0 oder 1 für G und 1 für U an. Genau eine der beiden Basen C und G ist vorhanden.
-
8.9 a: \(\boxed{8\text{ Aminosäurereste}}\), wobei UGA in diesem enzymcodierenden Fragment als Selenocystein gelesen wird.
-
8.9 b: Vom N- zum C-Terminus: \[ \boxed{\mathrm{X-Asn-X-Arg-Asn-Arg-Gly-Sec}} \] Hier ist X Pyrrolysin und Sec Selenocystein. Füllen Sie acht Kästchen aus und lassen Sie die übrigen zwei leer.
Lösung
8.1
Bei gleicher Temperatur und gleichem Druck sind Gasvolumina proportional zu den Stoffmengen in Mol. Somit gilt
\[ \phi_A=\frac{1}{1+3}\times100\%=25\%, \qquad \phi_B=\frac{3}{1+3}\times100\%=75\%. \]
8.2
Das Referenzgas ist molekularer Wasserstoff, \(\ce{H2}\), [H][H]. Mit den zu den angegebenen Daten passenden ganzzahligen Atommassen ergibt sich
\[ \overline M =D_{\ce{H2}}M_{\ce{H2}} =12.0\times2.00 =24.0\ \mathrm{g\,mol^{-1}}. \]
Da \(n_A:n_B=1:3\), gilt
\[ \frac{M_A+3M_B}{4}=24.0\ \mathrm{g\,mol^{-1}}. \]
Das Substrat ist Methylamin-\(^{13}\mathrm C\), [13CH3]N. Sein Kohlenstoffatom hat die Oxidationszahl \(-2\). Durch Disproportionierung kann ein Kohlenstoffatom zu \(+4\) im Kohlenstoffdioxid oxidiert werden, während drei Kohlenstoffatome zu \(-4\) im Methan reduziert werden: Das erste gibt sechs Elektronen ab, während die anderen drei jeweils zwei Elektronen aufnehmen.
Für die markierten Produkte gilt
\[ M(\ce{^{13}CO2})=13+2(16)=45\ \mathrm{g\,mol^{-1}}, \] \[ M(\ce{^{13}CH4})=13+4(1)=17\ \mathrm{g\,mol^{-1}}. \]
Ihre mittlere molare Masse beträgt
\[ \frac{45+3(17)}4=24.0\ \mathrm{g\,mol^{-1}}, \]
was mit der gemessenen Dichte übereinstimmt. Daher ist A markiertes Kohlenstoffdioxid und B markiertes Methan; ihre Identitäten und SMILES sind oben angegeben.
8.3
Bei pH 7 sind die vorherrschenden Formen in wässriger Lösung Methylammonium anstelle von Methylamin, Ammonium anstelle von Ammoniak und Hydrogencarbonat anstelle von gelöstem Kohlenstoffdioxid.
Die zusätzlichen Spezies in der Gleichung sind:
| Spezies | Name | SMILES |
|---|---|---|
| \(\ce{^{13}CH3NH3+}\) | Methylammonium-\(^{13}\mathrm C\) | [13CH3][NH3+] |
| \(\ce{H2O}\) | Wasser | O |
| \(\ce{H^{13}CO3-}\) | Hydrogencarbonat-\(^{13}\mathrm C\) | O[13C](=O)[O-] |
| \(\ce{NH4+}\) | Ammonium | [NH4+] |
| \(\ce{H+}\) | Wasserstoffion, das vereinbarungsgemäß ein solvatisiertes Proton darstellt | [H+] |
Die ausgeglichene Gleichung lautet
\[ \boxed{\ce{4 ^{13}CH3NH3+ + 3 H2O -> 3 ^{13}CH4 + H^{13}CO3- + 4 NH4+ + H+}}. \]
Beide Seiten enthalten vier Kohlenstoffatome, dreißig Wasserstoffatome, vier Stickstoffatome und drei Sauerstoffatome; beide haben die Gesamtladung \(+4\).
Das gasförmige oxidierte Produkt bleibt Kohlenstoffdioxid. Sein Zusammenhang mit der vorherrschenden gelösten Form ist
\[ \ce{^{13}CO2 + H2O <=> H^{13}CO3- + H+}. \]
8.4
Der angegebene tRNA-gebundene Rest ist die Acylgruppe \(\ce{RCH(NH2)CO}\). Zur Rückgewinnung der freien Aminosäure wird eine OH-Gruppe mit der molaren Masse \(17\ \mathrm{g\,mol^{-1}}\) hinzugefügt. Daher gilt
\[ M_X=238+17=255\ \mathrm{g\,mol^{-1}}. \]
Eine α-Aminosäure enthält bereits C, H, N und O; dies sind also ihre vier Elemente. Die Anzahl ihrer Sauerstoffatome beträgt
\[ n_{\mathrm O} =\frac{0.188(255)}{16} =2.996\approx3. \]
Jeder Austausch von \(\ce{^{12}C}\) gegen \(\ce{^{13}C}\) oder von \(\ce{^{14}N}\) gegen \(\ce{^{15}N}\) erhöht die gerundete molare Masse um \(1\ \mathrm{g\,mol^{-1}}\). Somit gilt
\[ n_{\mathrm C}+n_{\mathrm N}=253-238=15. \]
Zwei Lysinmoleküle liefern höchstens zwölf Kohlenstoffatome und vier Stickstoffatome. Die selektive Markierung beider ursprünglichen ε-Aminogruppen erhöht die Produktmasse um nur eine Einheit, sodass genau eines dieser beiden Stickstoffatome erhalten bleibt. Unter Einbeziehung der zwei möglichen Stickstoffatome der α-Aminogruppen ergibt sich
\[ n_{\mathrm N}\leq3,\qquad n_{\mathrm C}\leq12. \]
Ihre Summe beträgt fünfzehn, also müssen beide Obergrenzen erreicht werden:
\[ n_{\mathrm C}=12,\qquad n_{\mathrm N}=3. \]
Die verbleibende Masse entfällt auf Wasserstoff:
\[ n_{\mathrm H} =\frac{255-12(12)-3(14)-3(16)}{1} =21. \]
Damit folgt
\[ \boxed{X=\ce{C12H21N3O3}}. \]
Der Sauerstoffanteil stimmt überein:
\[ \frac{48}{255}\times100\%=18.82\%\approx18.8\%. \]
8.5 i
L-Lysin ist \((2S)\)-2,6-Diaminohexansäure, N[C@@H](CCCCN)C(=O)O, mit der Summenformel \(\ce{C6H14N2O2}\).
Da C ein Strukturisomer von Lysin ist, gilt
\[ \boxed{C=\ce{C6H14N2O2}}. \]
Bei der Kondensation eines Moleküls C mit einem Lysinmolekül wird ein Wassermolekül abgespalten:
\[ \ce{C6H14N2O2 + C6H14N2O2 -> C12H26N4O3 + H2O}. \]
Daher gilt
\[ \boxed{D=\ce{C12H26N4O3}}. \]
Da E unter Abspaltung eines Wassermoleküls X bildet, gilt
\[ \ce{C12H23N3O4 -> C12H21N3O3 + H2O}, \]
und somit
\[ \boxed{E=\ce{C12H23N3O4}}. \]
Die Strukturen mit der in 8.6–8.7 bestimmten Stereochemie sind nachfolgend angegeben. Diese SMILES stellen die neutralen Formen der freien Säuren dar.
| Verbindung | Name | SMILES |
|---|---|---|
| C | \((2R,3R)\)-2,5-Diamino-3-methylpentansäure; 3-Methyl-D-ornithin | N[C@H]([C@H](C)CCN)C(=O)O |
| D | \(N^\varepsilon\)-[(2R,3R)-2,5-Diamino-3-methylpentanoyl]-L-lysin | N[C@@H](CCCCNC(=O)[C@H](N)[C@H](C)CCN)C(=O)O |
| E | \(N^\varepsilon\)-[(2R,3R)-2-Amino-3-methyl-5-oxopentanoyl]-L-lysin | N[C@@H](CCCCNC(=O)[C@H](N)[C@H](C)CC=O)C(=O)O |
Ihre Konnektivitäten lassen sich durch die folgenden kondensierten Strukturformeln wiedergeben:
\[ \begin{aligned} C:\;&\ce{HOOC-CH(NH2)-CH(CH3)-CH2-CH2-NH2},\\ D:\;&\ce{HOOC-CH(NH2)-(CH2)4-NH-C(=O)-CH(NH2)-CH(CH3)-CH2-CH2-NH2},\\ E:\;&\ce{HOOC-CH(NH2)-(CH2)4-NH-C(=O)-CH(NH2)-CH(CH3)-CH2-CHO}. \end{aligned} \]
Die Amidbindung in D verbindet die Carboxylgruppe von C mit der ε-Aminogruppe des zweiten Lysinmoleküls.
8.5 ii
Die endständige Aminomethylgruppe in D wird zur Aldehydgruppe in E. Dies ist eine oxidative Desaminierung.
Unter Verwendung der neutralen Molekülformen lautet die Oxidationshalbreaktion
\[ \ce{C12H26N4O3 + H2O -> C12H23N3O4 + NH3 + 2 H+ + 2 e-}. \]
Hier ist \(\ce{NH3}\) Ammoniak, N. Der Elektronenakzeptor ist in der Aufgabe nicht angegeben.
Die erhalten gebliebene Aminogruppe von E greift anschließend intramolekular dessen Aldehydkohlenstoffatom an. Durch Kondensation wird Wasser abgespalten und der fünfgliedrige Iminring von X gebildet.
8.6
Position 3 ist ein gesättigtes Ringkohlenstoffatom mit zwei unterschiedlichen Wegen entlang des Rings. Ein Methyl- oder R-Substituent an dieser Stelle würde ein stereogenes Methin-Kohlenstoffatom erzeugen. Da Position 3 ausdrücklich nicht asymmetrisch ist, muss der dort angegebene Substituent H sein, wodurch eine Methylengruppe entsteht.
Die verbleibenden Substituenten Me und R besetzen die Positionen 4 und 5.
Kehren wir die abschließende iminbildende Kondensation gedanklich um: Das Imin-Kohlenstoffatom an Position 2 wird zur Aldehydgruppe, während der Ringstickstoff zu einer an Position 5 gebundenen Aminogruppe wird. Da die Vorstufe C eine α-Aminosäure ist, muss ihre von der Carboxylgruppe abgeleitete Carbonylgruppe direkt an dieses die Aminogruppe tragende Kohlenstoffatom gebunden sein. Somit befindet sich der große Carboxamid-Substituent an Position 5:
\[ \mathrm R=\ce{-C(=O)-NH-(CH2)4-CH(NH2)-COOH}. \]
Dies ist der von Lysin abgeleitete Carboxamid-Substituent, dessen Bindungsstelle zum Ring mit [*] markiert ist und der als [*]C(=O)NCCCC[C@H](N)C(=O)O dargestellt wird. Seine Zusammensetzung ist \(\ce{C7H13N2O3}\), entsprechend etwa \(173\ \mathrm{g\,mol^{-1}}\), was mit der angegebenen Massenbedingung übereinstimmt.
Folglich gilt
\[ \boxed{3:\mathrm H,\qquad4:\mathrm{Me},\qquad5:\mathrm R}. \]
8.7
Für C lautet die gesuchte Struktur
\[ \ce{HOOC-CH(NH2)-CH(CH3)-CH2-CH2-NH2}, \]
mit den Konfigurationen \(\boxed{2R,3R}\).
Eine genaue Beschreibung der Fischer-Projektion lautet: Die Carboxylgruppe wird oben und die \(\ce{CH2CH2NH2}\)-Kette unten angeordnet; die Aminogruppe an C2 und die Methylgruppe an C3 werden rechts angeordnet, während sich an beiden Zentren Wasserstoff links befindet. Der stereochemische SMILES lautet N[C@H]([C@H](C)CCN)C(=O)O.
Für X wird die in der Aufgabenstellung gezeigte Orientierung des fünfgliedrigen Rings beibehalten:
- Die Doppelbindung verbindet N1 und C2.
- C3 ist eine Methylengruppe.
- C4 trägt die Methylgruppe an der gestrichelten Bindung, die vom Betrachter weg gerichtet ist.
- C5 trägt R am ausgefüllten Keil, der zum Betrachter hin gerichtet ist.
- Das α-Kohlenstoffatom des Lysins behält seine \(S\)-Konfiguration.
Die CIP-Prioritäten bestimmen die Ringkonfigurationen:
| Zentrum | Prioritäten, von der höchsten zur niedrigsten | Konfiguration |
|---|---|---|
| Ring-C4 | Ringweg über C5; Ringweg über C3; Methyl; H | \(R\) |
| Ring-C5 | Ring-N; Carbonylkohlenstoff von R; Ring-C4; H | \(R\) |
| α-Kohlenstoffatom des Lysins | Amino-N; Carboxylkohlenstoff; Seitenkettenkohlenstoff; H | \(S\) |
Beispielsweise hat an Ring-C5 der Carbonylkohlenstoff die Vergleichsliste \((\mathrm O,\mathrm O,\mathrm N)\), die gegenüber der Liste \((\mathrm C,\mathrm C,\mathrm H)\) von Ring-C4 Vorrang hat.
Somit ist X Pyrrolysin, mit
\[ \boxed{\text{Lysin }\alpha:S;\qquad\text{Ring }4:R;\qquad\text{Ring }5:R}. \]
Sein vollständiger stereochemischer SMILES lautet
N[C@@H](CCCCNC(=O)[C@@H]1N=CC[C@H]1C)C(=O)O.
Die Keile geben die Konfiguration an; sie schreiben keine bestimmte feste Ringkonformation vor.
8.8
Die Anzahlen der funktionellen Gruppen in den vier Basen sind:
| Base | Name und SMILES | Exocyclische Aminogruppen | Exocyclische Sauerstoffatome |
|---|---|---|---|
| A | Adenin, Nc1ncnc2[nH]cnc12 |
1 | 0 |
| C | Cytosin, Nc1cc[nH]c(=O)n1 |
1 | 1 |
| G | Guanin, Nc1nc2[nH]cnc2c(=O)[nH]1 |
1 | 1 |
| U | Uracil, O=c1cc[nH]c(=O)[nH]1 |
0 | 2 |
Ihre Anzahlen im Codon seien \(a,c,g,u\). Ein Codon enthält drei Basen:
\[ a+c+g+u=3. \]
Aus den zwei Aminogruppen folgt
\[ a+c+g=2, \]
also \(u=1\). Aus den drei Sauerstoffatomen folgt
\[ c+g+2u=3, \]
somit \(c+g=1\) und daher \(a=1\).
Die ausgefüllte Tabelle lautet
| Stickstoffbase | 1 | 2 | 3 | 0 oder 1 | 1 oder 2 |
|---|---|---|---|---|---|
| A | ✓ | ||||
| C | ✓ | ||||
| G | ✓ | ||||
| U | ✓ |
Das Codon enthält somit ein A, ein U und entweder ein C oder ein G. Damit ist die Zusammensetzung bestimmt, aber noch nicht die Reihenfolge.
8.9 a
Ein mögliches X-Codon muss genau die Basen AUC oder AUG in irgendeiner Reihenfolge enthalten. Die Überprüfung der drei Leseraster zeigt, dass die ersten beiden keine vollständigen Codons mit einer dieser Zusammensetzungen enthalten. Das dritte Leseraster ergibt
\[ 5'\ldots\mathrm{AA}\mid \mathrm{UAG}\mid \mathrm{AAU}\mid \mathrm{UAG}\mid \mathrm{CGG}\mid \mathrm{AAC}\mid \mathrm{AGA}\mid \mathrm{GGG}\mid \mathrm{UGA}\mid \mathrm C\ldots3'. \]
UAG kommt zweimal vor, UGA hingegen einmal. Da nur ein Codon X codiert und im Fragment mehr als ein X-Rest vorkommt, gilt
\[ \boxed{\text{X-Codon}=\mathrm{UAG}}. \]
Es gibt acht vollständige Codons. Das vorangestellte AA und das abschließende C sind unvollständige Codons und tragen keine Reste zur gesuchten Anzahl bei.
Da das Fragment zur codierenden Sequenz des Enzyms gehört, wird das letzte vollständige Codon UGA in diesem enzymcodierenden Fragment als Selenocystein gelesen. Daher gilt
\[ \boxed{8\text{ Aminosäurereste werden eingebaut}}. \]
8.9 b
Die Translation ergibt
| Vollständiges Codon | Rest |
|---|---|
| UAG | X, Pyrrolysin |
| AAU | Asn |
| UAG | X, Pyrrolysin |
| CGG | Arg |
| AAC | Asn |
| AGA | Arg |
| GGG | Gly |
| UGA | Sec |
Damit ergibt sich vom N- zum C-Terminus
\[ \boxed{\mathrm{X-Asn-X-Arg-Asn-Arg-Gly-Sec}}. \]
Die weiteren Aminosäuren sind unten angegeben. Die SMILES beschreiben ihre neutralen freien Aminosäuren; beim Einbau in das Protein entstehen die entsprechenden Peptidreste.
| Abkürzung | Name | SMILES |
|---|---|---|
| Asn | L-Asparagin | N[C@@H](CC(=O)N)C(=O)O |
| Arg | L-Arginin | N[C@@H](CCCNC(=N)N)C(=O)O |
| Gly | Glycin | NCC(=O)O |
| Sec | L-Selenocystein, mit \(R\)-Konfiguration an seinem α-Kohlenstoffatom | N[C@@H](C[SeH])C(=O)O |
Füllen Sie die ersten acht Antwortkästchen mit dieser Sequenz aus und lassen Sie die letzten zwei leer.
Die Lösung wurde mit der offiziellen Lösung abgeglichen.
IChO 2013 · Teori sorusu 8
Arkelerin benzersiz yaşamı
Arkeler (veya arkebakteriler), tek hücreli mikroorganizmalardır. Moleküler düzeyde bakterilerden ve ökaryotlardan önemli ölçüde farklıdırlar.
Metilaminin suyla enzimatik tepkimesi, bazı arkelerin başlıca enerji kaynağıdır. Bir deneyde, bir arke suşu, tek enerji kaynağı olarak \(\ce{^{13}CH3NH2}\) içeren besiyerinde, pH 7'de ve anaerobik (oksijensiz) koşullarda yetiştirilmiştir. Belirli bir inkübasyon süresinden sonra, arke kültürünün üzerindeki gazdan örnek alınarak analiz edilmiştir. Gazın, sırasıyla 1 : 3 mol oranında A ve B olmak üzere iki madde içerdiği bulunmuştur (örneğin \(\ce{H2}\)'ye göre bağıl yoğunluğu 12.0'dır).
8.1 Karışımdaki A ve B'nin hacim yüzdelerini (%) hesaplayınız.
8.2 Toplanan gazda azot atomu bulunmadığına göre A ve B'yi belirleyiniz.
8.3 Yukarıdaki deneyde açıklanan metilaminin suyla enzimatik tepkimesinin denklemini, her türün baskın biçimini kullanarak yazınız.
Metilamini kullanabilen birçok arkede, α-amino asit X'in kalıntısını içeren enzimler bulunur. X hakkında şunlar bilinmektedir:
- 4 elementin atomlarından oluşur;
- kütlece %18.8 oksijen içerir;
- kendine özgü tek bir tRNA'sı vardır ve translasyon sırasında arkelerin proteinlerine katılır.
L-lizin amino asidinin (aşağıdaki şemada yapısına bakınız), arkelerde X'in öncülü olduğu belirlenmiştir. X'te bulunan tüm karbon ve azot atomları, başlangıçtaki iki lizin molekülünden gelir. X'in biyosentez yollarını aydınlatmak için bir model sisteme farklı izotoplarla işaretlenmiş L-lizinler eklenmiştir. Sonuçlar tabloda özetlenmiştir.
| L-lizinin izotop bileşimi | tRNA'ya bağlı X kalıntısının \(\ce{[RCH(NH2)CO]}\) molar kütlesi (tam sayıya yuvarlanmış), \((\mathrm{g\,mol^{-1}})\) |
|---|---|
| Normal | 238 |
| Tüm karbonlar \(\ce{^{13}C}\), tüm azotlar \(\ce{^{15}N}\) | 253 |
| ε-amino grubu \(\ce{^{15}N}\) içerir | 239 |
8.4 X'in molekül formülünü belirleyiniz.
X, arkelerde aşağıdaki şemaya göre biyosentezlenir (\(E_1\), \(E_2\) ve \(E_3\) – enzimler):
İlk basamakta lizin, yapı izomerine (α-amino asit, C) dönüşür; D bir peptit bağı, E ise bir formil grubu \(\ce{-CHO}\) içerir. Yukarıdaki şemada tüm tepkime katsayıları 1'e eşittir.
8.5 i) C, D ve E'nin kimyasal formüllerini veriniz.
ii) Aşağıda verilen tepkime türlerinden, \(E_3\) enziminin katalizlediği tepkimeye karşılık gelen yalnızca birini seçiniz (işaretleyiniz).
- ☐ Oksidatif deaminasyon
- ☐ Dekarboksilasyon
- ☐ Moleküller arası deaminasyon
- ☐ Hidroksilasyon
- ☐ Peptit bağının hidrolizi
X, aşağıdaki yapısal parçayı içerir:
R, kütlesi büyük bir sübstitüenttir (\(M>100\ \mathrm{g\,mol^{-1}}\)). 3. karbon atomu asimetrik değildir. 4. ve 5. karbon atomları stereojenik merkezlerdir. Halkadaki tüm karbon atomları en az bir hidrojen atomuna bağlıdır. Her sübstitüent (H, Me ve R) yalnızca bir kez bulunur.
8.6 H, Me ve R sübstitüentlerinin konumlarını belirleyiniz.
8.7 C ve X'in yapı formüllerini stereokimyasal ayrıntılarıyla çiziniz. X'in her stereomerkezini \(R\) veya \(S\) olarak işaretleyiniz.
Arkelerde X kalıntılarının proteinlere katılmasından yalnızca bir kodon sorumludur. Bu kodonu oluşturan azotlu bazlar, toplam iki halka dışı amino grubu ve üç halka dışı oksijen atomu içerir.
8.8 Aşağıdaki tabloyu doldurarak kodonun nükleotit bileşimini belirleyiniz. X'i kodlayan kodondaki her azotlu bazın sayısını yazınız. Her satırda yalnızca bir kutuyu işaretleyiniz.
Kodondaki baz sayısı
| Azotlu baz | 1 | 2 | 3 | 0 veya 1 | 1 veya 2 |
|---|---|---|---|---|---|
| A | |||||
| C | |||||
| G | |||||
| U |
Aşağıda verilen mRNA kodlama dizisi parçası, bir arke enzimine X kalıntısının katılmasını kodlayan kodonları içerir:
\(5'\ldots\mathrm{AAUAGAAUUAGCGGAACAGAGGGUGAC}\ldots3'\)
8.9 a Genetik kod tablosunu kullanarak, bu parçanın translasyonu sonucunda enzim zincirine kaç amino asit kalıntısının katıldığını belirleyiniz.
8.9 b Bu parçadan translasyonla elde edilen amino asit dizisini yazınız. Parçada birden fazla X kalıntısı bulunduğuna dikkat ediniz.
Aşağıdaki kutuları amino asit kısaltmalarıyla doldurunuz (N-ucundan C-ucuna doğru).
Kutu sayısının gerekenden fazla olduğuna dikkat ediniz. Birden fazla olasılık varsa, hepsini “/” ile ayırarak yazınız. Translasyon belirli bir konumda duruyorsa, “STOP” yazınız ve sağındaki tüm kutuları boş bırakınız.
(a) Yirmi amino asit için RNA kodonları
İkinci baz
| Birinci baz | U | C | A | G | Üçüncü baz |
|---|---|---|---|---|---|
| U | Phe | Ser | Tyr | Cys | U |
| U | Phe | Ser | Tyr | Cys | C |
| U | Leu | Ser | STOP | STOP | A |
| U | Leu | Ser | STOP | Trp | G |
| C | Leu | Pro | His | Arg | U |
| C | Leu | Pro | His | Arg | C |
| C | Leu | Pro | Gln | Arg | A |
| C | Leu | Pro | Gln | Arg | G |
| A | Ile | Thr | Asn | Ser | U |
| A | Ile | Thr | Asn | Ser | C |
| A | Ile | Thr | Lys | Arg | A |
| A | Met (başlangıç) | Thr | Lys | Arg | G |
| G | Val | Ala | Asp | Gly | U |
| G | Val | Ala | Asp | Gly | C |
| G | Val | Ala | Glu | Gly | A |
| G | Val | Ala | Glu | Gly | G |
| Amino Asit Kısaltmaları: |
|---|
| Ala = Alanin |
| Arg = Arjinin |
| Asp = Aspartik asit |
| Asn = Asparajin |
| Cys = Sistein |
| Glu = Glutamik asit |
| Gln = Glutamin |
| Gly = Glisin |
| His = Histidin |
| Ile = İzolösin |
| Leu = Lösin |
| Lys = Lizin |
| Met = Metiyonin |
| Phe = Fenilalanin |
| Pro = Prolin |
| Ser = Serin |
| Thr = Treonin |
| Trp = Triptofan |
| Tyr = Tirozin |
| Val = Valin |
Soru metni resmi İngilizce metinden çevrilmiştir.
Cevaplar
-
8.1: Hacimce \(A=25\%\), \(B=75\%\).
-
8.2: A, karbon dioksit-\(^{13}\mathrm C\), \(\ce{^{13}CO2}\),
O=[13C]=O; B, metan-\(^{13}\mathrm C\), \(\ce{^{13}CH4}\),[13CH4]'tür. -
8.3: \[ \boxed{\ce{4 ^{13}CH3NH3+ + 3 H2O -> 3 ^{13}CH4 + H^{13}CO3- + 4 NH4+ + H+}} \]
-
8.4: \(\boxed{\ce{C12H21N3O3}}\). X, pirolizindir,
N[C@@H](CCCCNC(=O)[C@@H]1N=CC[C@H]1C)C(=O)O. -
8.5 i: \(\boxed{\mathbf C:\ce{C6H14N2O2};\quad \mathbf D:\ce{C12H26N4O3};\quad \mathbf E:\ce{C12H23N3O4}}\). Adları ve yapılarını gösteren SMILES gösterimleri çözümde verilmiştir.
-
8.5 ii: Oksidatif deaminasyon.
-
8.6: \(\boxed{3:\mathrm H;\quad4:\mathrm{Me};\quad5:\mathrm R}\).
-
8.7: C, \((2R,3R)\)-2,5-diamino-3-metilpentanoik asittir,
N[C@H]([C@H](C)CCN)C(=O)O. X'in üç stereomerkezi vardır: lizinin α-karbonu \(S\), halkadaki 4 ve 5 konumlarının her ikisi de \(R\)'dir. -
8.8: A için 1, C için 0 veya 1, G için 0 veya 1 ve U için 1'i işaretleyiniz. C ve G'den tam olarak biri bulunur.
-
8.9 a: Enzimi kodlayan bu parçada UGA selenosistein olarak okunursa, \(\boxed{8\text{ amino asit kalıntısı}}\).
-
8.9 b: N-ucundan C-ucuna doğru: \[ \boxed{\mathrm{X-Asn-X-Arg-Asn-Arg-Gly-Sec}} \] Burada X pirolizin, Sec ise selenosisteindir. Sekiz kutuyu doldurunuz ve kalan iki kutuyu boş bırakınız.
Çözüm
8.1
Aynı sıcaklık ve basınçta gaz hacimleri, mol cinsinden madde miktarlarıyla orantılıdır. Dolayısıyla
\[ \phi_A=\frac{1}{1+3}\times100\%=25\%, \qquad \phi_B=\frac{3}{1+3}\times100\%=75\%. \]
8.2
Referans gaz dihidrojendir, \(\ce{H2}\), [H][H]. Verilen verilere uygun tam sayı atom kütleleri kullanılırsa,
\[ \overline M =D_{\ce{H2}}M_{\ce{H2}} =12.0\times2.00 =24.0\ \mathrm{g\,mol^{-1}}. \]
\(n_A:n_B=1:3\) olduğundan,
\[ \frac{M_A+3M_B}{4}=24.0\ \mathrm{g\,mol^{-1}}. \]
Substrat, metilamin-\(^{13}\mathrm C\)'dir, [13CH3]N. Karbonunun yükseltgenme basamağı \(-2\)'dir. Disproporsiyonlaşma, bir karbonu karbon dioksitte \(+4\)'e yükseltgeyip üç karbonu metanda \(-4\)'e indirgeyebilir: ilki altı elektron verirken, diğer üçünün her biri iki elektron alır.
İşaretli ürünler için,
\[ M(\ce{^{13}CO2})=13+2(16)=45\ \mathrm{g\,mol^{-1}}, \] \[ M(\ce{^{13}CH4})=13+4(1)=17\ \mathrm{g\,mol^{-1}}. \]
Bunların ortalama molar kütlesi
\[ \frac{45+3(17)}4=24.0\ \mathrm{g\,mol^{-1}}, \]
olup ölçülen yoğunlukla uyumludur. Dolayısıyla A işaretli karbon dioksit, B ise işaretli metandır; kimlikleri ve SMILES gösterimleri yukarıda verilmiştir.
8.3
pH 7'de sulu çözeltideki baskın biçimler, metilamin yerine metilamonyum, amonyak yerine amonyum ve çözünmüş karbon dioksit yerine hidrojen karbonattır.
Denklemde yer alan ek türler şunlardır:
| Tür | Adı | SMILES |
|---|---|---|
| \(\ce{^{13}CH3NH3+}\) | Metilamonyum-\(^{13}\mathrm C\) | [13CH3][NH3+] |
| \(\ce{H2O}\) | Su | O |
| \(\ce{H^{13}CO3-}\) | Hidrojen karbonat-\(^{13}\mathrm C\) | O[13C](=O)[O-] |
| \(\ce{NH4+}\) | Amonyum | [NH4+] |
| \(\ce{H+}\) | Geleneksel olarak solvatlanmış bir protonu temsil eden hidrojen iyonu | [H+] |
Denkleştirilmiş denklem şöyledir:
\[ \boxed{\ce{4 ^{13}CH3NH3+ + 3 H2O -> 3 ^{13}CH4 + H^{13}CO3- + 4 NH4+ + H+}}. \]
Her iki taraf da dört karbon atomu, otuz hidrojen atomu, dört azot atomu ve üç oksijen atomu içerir; her iki tarafın toplam yükü \(+4\)'tür.
Gaz hâlindeki yükseltgenmiş ürün karbon dioksit olarak kalır. Baskın çözünmüş biçimle ilişkisi şöyledir:
\[ \ce{^{13}CO2 + H2O <=> H^{13}CO3- + H+}. \]
8.4
Belirtilen tRNA'ya bağlı kalıntı, \(\ce{RCH(NH2)CO}\) açil grubudur. Serbest amino asidi elde etmek için molar kütlesi \(17\ \mathrm{g\,mol^{-1}}\) olan bir OH grubu eklenir. Böylece
\[ M_X=238+17=255\ \mathrm{g\,mol^{-1}}. \]
Bir α-amino asit zaten C, H, N ve O içerir; dolayısıyla dört elementi bunlardır. Oksijen atomu sayısı
\[ n_{\mathrm O} =\frac{0.188(255)}{16} =2.996\approx3. \]
\(\ce{^{12}C}\)'nin \(\ce{^{13}C}\) ile veya \(\ce{^{14}N}\)'nin \(\ce{^{15}N}\) ile her yer değiştirmesi, yuvarlanmış molar kütleyi \(1\ \mathrm{g\,mol^{-1}}\) artırır. Dolayısıyla
\[ n_{\mathrm C}+n_{\mathrm N}=253-238=15. \]
İki lizin molekülü en fazla on iki karbon ve dört azot sağlar. Başlangıçtaki her iki ε-amino grubunun seçici olarak işaretlenmesi, ürünün kütlesini yalnızca bir birim artırır; dolayısıyla bu iki azot atomundan tam olarak biri korunur. Olası iki α-amino azotu da dâhil edildiğinde
\[ n_{\mathrm N}\leq3,\qquad n_{\mathrm C}\leq12. \]
Toplamları on beş olduğundan, her iki üst sınıra da ulaşılmalıdır:
\[ n_{\mathrm C}=12,\qquad n_{\mathrm N}=3. \]
Kalan kütle hidrojene aittir:
\[ n_{\mathrm H} =\frac{255-12(12)-3(14)-3(16)}{1} =21. \]
Dolayısıyla
\[ \boxed{X=\ce{C12H21N3O3}}. \]
Oksijen yüzdesi de sonucu doğrular:
\[ \frac{48}{255}\times100\%=18.82\%\approx18.8\%. \]
8.5 i
L-lizin, molekül formülü \(\ce{C6H14N2O2}\) olan \((2S)\)-2,6-diaminohekzanoik asittir, N[C@@H](CCCCN)C(=O)O.
C, lizinin yapı izomeri olduğundan,
\[ \boxed{C=\ce{C6H14N2O2}}. \]
Bir C molekülünün bir lizin molekülüyle kondenzasyonu sonucunda bir su molekülü ayrılır:
\[ \ce{C6H14N2O2 + C6H14N2O2 -> C12H26N4O3 + H2O}. \]
Dolayısıyla
\[ \boxed{D=\ce{C12H26N4O3}}. \]
E, bir su molekülü kaybederek X'i oluşturduğundan,
\[ \ce{C12H23N3O4 -> C12H21N3O3 + H2O}, \]
ve böylece
\[ \boxed{E=\ce{C12H23N3O4}}. \]
8.6–8.7'de belirlenen stereokimyalarıyla yapılar aşağıdaki gibidir. Bu SMILES gösterimleri, nötr serbest asit biçimlerini temsil eder.
| Bileşik | Adı | SMILES |
|---|---|---|
| C | \((2R,3R)\)-2,5-Diamino-3-metilpentanoik asit; 3-metil-D-ornitin | N[C@H]([C@H](C)CCN)C(=O)O |
| D | \(N^\varepsilon\)-[(2R,3R)-2,5-diamino-3-metilpentanoil]-L-lizin | N[C@@H](CCCCNC(=O)[C@H](N)[C@H](C)CCN)C(=O)O |
| E | \(N^\varepsilon\)-[(2R,3R)-2-amino-3-metil-5-oksopentanoil]-L-lizin | N[C@@H](CCCCNC(=O)[C@H](N)[C@H](C)CC=O)C(=O)O |
Bağlanma düzenlerini gösteren kısaltılmış yapı formülleri şöyledir:
\[ \begin{aligned} C:\;&\ce{HOOC-CH(NH2)-CH(CH3)-CH2-CH2-NH2},\\ D:\;&\ce{HOOC-CH(NH2)-(CH2)4-NH-C(=O)-CH(NH2)-CH(CH3)-CH2-CH2-NH2},\\ E:\;&\ce{HOOC-CH(NH2)-(CH2)4-NH-C(=O)-CH(NH2)-CH(CH3)-CH2-CHO}. \end{aligned} \]
D'deki amit, C'nin karboksil grubunu ikinci lizin molekülünün ε-amino grubuna bağlar.
8.5 ii
D'deki uç aminometil grubu, E'deki aldehit grubuna dönüşür. Bu, oksidatif deaminasyondur.
Nötr moleküler biçimler kullanılarak yazıldığında, yükseltgenme yarı tepkimesi şöyledir:
\[ \ce{C12H26N4O3 + H2O -> C12H23N3O4 + NH3 + 2 H+ + 2 e-}. \]
Burada \(\ce{NH3}\) amonyaktır, N. Soruda elektron alıcısı belirtilmemiştir.
Ardından E'nin korunan amino grubu, molekül içi olarak aldehit karbonuna saldırır. Kondenzasyonla su ayrılır ve X'in beş üyeli imin halkası oluşur.
8.6
- konum, iki farklı halka yoluna sahip doymuş bir halka karbonudur. Buradaki bir metil veya R sübstitüenti, stereojenik bir metin karbonu oluştururdu. 3. konumun asimetrik olmadığı açıkça belirtildiğinden, burada gösterilen sübstitüent H olmalıdır; böylece bir metilen grubu oluşur.
Kalan Me ve R sübstitüentleri, 4 ve 5 konumlarında yer alır.
İmin oluşturan son kondenzasyonu zihinsel olarak tersine çeviriniz: 2. konumdaki imin karbonu aldehide dönüşürken, halka azotu 5. konuma bağlı bir amino grubuna dönüşür. Öncül C bir α-amino asit olduğundan, karboksilinden türeyen karbonil, amino grubu taşıyan bu karbona doğrudan bağlı olmalıdır. Dolayısıyla büyük karboksamit sübstitüenti 5. konumdadır:
\[ \mathrm R=\ce{-C(=O)-NH-(CH2)4-CH(NH2)-COOH}. \]
Bu, lizinden türeyen karboksamit sübstitüentidir; halkaya bağlandığı yer [*] ile işaretlenerek [*]C(=O)NCCCC[C@H](N)C(=O)O biçiminde gösterilir. Bileşimi \(\ce{C7H13N2O3}\) olup yaklaşık \(173\ \mathrm{g\,mol^{-1}}\)'e karşılık gelir ve belirtilen kütle koşuluyla uyumludur.
Sonuç olarak,
\[ \boxed{3:\mathrm H,\qquad4:\mathrm{Me},\qquad5:\mathrm R}. \]
8.7
C için istenen yapı
\[ \ce{HOOC-CH(NH2)-CH(CH3)-CH2-CH2-NH2}, \]
olup konfigürasyonları \(\boxed{2R,3R}\)'dir.
Fischer projeksiyonunun kesin bir tarifi şöyledir: karboksil grubunu üste, \(\ce{CH2CH2NH2}\) zincirini alta yerleştiriniz; C2'de amino grubunu sağa ve C3'te metil grubunu sağa, her iki merkezde de hidrojeni sola yerleştiriniz. Stereokimyasal SMILES gösterimi N[C@H]([C@H](C)CCN)C(=O)O şeklindedir.
X için, soruda gösterilen beş üyeli halkanın yönelimini koruyunuz:
- Çift bağ N1 ile C2'yi birleştirir.
- C3 bir metilen grubudur.
- C4, gözlemciden uzağa yönelen kesikli bağ üzerinde metil taşır.
- C5, gözlemciye doğru yönelen dolu kama üzerinde R taşır.
- Lizinin α-karbonu, \(S\) konfigürasyonunu korur.
CIP öncelikleri, halka konfigürasyonlarını belirler:
| Merkez | En yüksekten en düşüğe öncelikler | Konfigürasyon |
|---|---|---|
| Halka C4 | C5 üzerinden halka yolu; C3 üzerinden halka yolu; metil; H | \(R\) |
| Halka C5 | Halka N'si; R'nin karbonil karbonu; halka C4'ü; H | \(R\) |
| Lizinin α-karbonu | Amino N'si; karboksil karbonu; yan zincir karbonu; H | \(S\) |
Örneğin halka C5'inde, karbonil karbonunun karşılaştırma listesi \((\mathrm O,\mathrm O,\mathrm N)\) olup halka C4'ünün \((\mathrm C,\mathrm C,\mathrm H)\) listesinden daha yüksek önceliğe sahiptir.
Böylece X pirolizindir ve
\[ \boxed{\text{lizin }\alpha:S;\qquad\text{halka }4:R;\qquad\text{halka }5:R}. \]
Tam stereokimyasal SMILES gösterimi şöyledir:
N[C@@H](CCCCNC(=O)[C@@H]1N=CC[C@H]1C)C(=O)O.
Kamalar konfigürasyonu belirtir; belirli, sabit bir halka konformasyonunu gerektirmez.
8.8
Dört bazdaki fonksiyonel grup sayıları şöyledir:
| Baz | Adı ve SMILES gösterimi | Halka dışı amino grupları | Halka dışı oksijen atomları |
|---|---|---|---|
| A | Adenin, Nc1ncnc2[nH]cnc12 |
1 | 0 |
| C | Sitozin, Nc1cc[nH]c(=O)n1 |
1 | 1 |
| G | Guanin, Nc1nc2[nH]cnc2c(=O)[nH]1 |
1 | 1 |
| U | Urasil, O=c1cc[nH]c(=O)[nH]1 |
0 | 2 |
Kodondaki sayıları \(a,c,g,u\) olsun. Bir kodon üç baz içerir:
\[ a+c+g+u=3. \]
İki amino grubu şu eşitliği verir:
\[ a+c+g=2, \]
dolayısıyla \(u=1\). Üç oksijen atomu ise şu eşitliği verir:
\[ c+g+2u=3, \]
böylece \(c+g=1\) ve dolayısıyla \(a=1\).
Tamamlanmış tablo şöyledir:
| Azotlu baz | 1 | 2 | 3 | 0 veya 1 | 1 veya 2 |
|---|---|---|---|---|---|
| A | ✓ | ||||
| C | ✓ | ||||
| G | ✓ | ||||
| U | ✓ |
Böylece kodon bir A, bir U ve ya bir C ya da bir G içerir. Bu, bileşimi belirler; ancak sıralamayı henüz belirlemez.
8.9 a
Bir X kodonu adayı, herhangi bir sırada tam olarak AUC veya AUG bazlarını içermelidir. Üç okuma çerçevesi kontrol edildiğinde, ilk ikisinin bu iki bileşimden herhangi birine sahip tam kodon içermediği görülür. Üçüncü çerçeve şunu verir:
\[ 5'\ldots\mathrm{AA}\mid \mathrm{UAG}\mid \mathrm{AAU}\mid \mathrm{UAG}\mid \mathrm{CGG}\mid \mathrm{AAC}\mid \mathrm{AGA}\mid \mathrm{GGG}\mid \mathrm{UGA}\mid \mathrm C\ldots3'. \]
UAG iki kez, UGA ise bir kez geçer. X'i yalnızca bir kodon kodladığından ve parçada birden fazla X kalıntısı bulunduğundan,
\[ \boxed{\text{X kodonu}=\mathrm{UAG}}. \]
Sekiz tam kodon vardır. Baştaki AA ve sondaki C, eksik kodonlardır ve istenen kalıntı sayısına katkıda bulunmaz.
Parça enzimin kodlama dizisine ait olduğundan, son tam kodon olan UGA, enzimi kodlayan bu parçada selenosistein olarak okunur. Dolayısıyla
\[ \boxed{8\text{ amino asit kalıntısı katılır}}. \]
8.9 b
Translasyon sonucu şöyledir:
| Tam kodon | Kalıntı |
|---|---|
| UAG | X, pirolizin |
| AAU | Asn |
| UAG | X, pirolizin |
| CGG | Arg |
| AAC | Asn |
| AGA | Arg |
| GGG | Gly |
| UGA | Sec |
Böylece N-ucundan C-ucuna doğru,
\[ \boxed{\mathrm{X-Asn-X-Arg-Asn-Arg-Gly-Sec}}. \]
Diğer amino asitler aşağıda tanımlanmıştır. SMILES gösterimleri, bunların nötr serbest amino asitlerini tanımlar; proteine katılmalarıyla karşılık gelen peptit kalıntıları oluşur.
| Kısaltma | Adı | SMILES |
|---|---|---|
| Asn | L-Asparajin | N[C@@H](CC(=O)N)C(=O)O |
| Arg | L-Arjinin | N[C@@H](CCCNC(=N)N)C(=O)O |
| Gly | Glisin | NCC(=O)O |
| Sec | α-karbonunda \(R\) konfigürasyonuna sahip L-selenosistein | N[C@@H](C[SeH])C(=O)O |
İlk sekiz cevap kutusunu bu diziyle doldurunuz ve son iki kutuyu boş bırakınız.
Çözüm, resmi çözümle karşılaştırılarak kontrol edildi.
IChO 2013 · Problema teórico 8
La singular vida de las arqueas
Las arqueas (o arqueobacterias) son microorganismos unicelulares. Difieren considerablemente de las bacterias y los eucariotas a nivel molecular.
La reacción enzimática de la metilamina con el agua es la principal fuente de energía para algunas arqueas. En un experimento concreto, se cultivó una cepa de arqueas a pH 7 en condiciones anaerobias (sin oxígeno) en un medio nutritivo que contenía \(\ce{^{13}CH3NH2}\) como única fuente de energía. Tras un cierto período de incubación, se tomó y analizó una muestra del gas situado sobre el cultivo de arqueas. Se encontró que el gas contenía dos sustancias, A y B, en una proporción molar de 1 : 3, respectivamente (la densidad de la muestra con respecto a \(\ce{H2}\) es 12.0).
8.1 Calcule las fracciones en volumen (en %) de A y B en la mezcla.
8.2 Determine A y B si el gas recogido no contiene átomos de nitrógeno.
8.3 Escriba la ecuación de la reacción enzimática de la metilamina con el agua descrita en el experimento anterior utilizando la forma predominante de cada especie.
En muchas arqueas capaces de utilizar metilamina se encuentran enzimas que contienen el residuo del α-aminoácido X. Se sabe que X:
- está compuesto por átomos de 4 elementos;
- contiene un 18.8 % en masa de oxígeno;
- posee un único ARNt específico y se incorpora a las proteínas de las arqueas durante la traducción.
Se identificó el aminoácido L-lisina (véase la estructura en el esquema siguiente) como precursor de X en las arqueas. Todos los átomos de carbono y nitrógeno presentes en X proceden de dos moléculas iniciales de lisina. Se introdujeron distintas L-lisinas marcadas isotópicamente en un sistema modelo para esclarecer las rutas biosintéticas de X. Los resultados se resumen en la tabla.
| Composición isotópica de la L-lisina | Masa molar (redondeada a un número entero) del residuo de X \(\ce{[RCH(NH2)CO]}\), unido al ARNt, \((\mathrm{g\,mol^{-1}})\) |
|---|---|
| Normal | 238 |
| Todos los carbonos \(\ce{^{13}C}\), todos los nitrógenos \(\ce{^{15}N}\) | 253 |
| Grupo ε-amino con \(\ce{^{15}N}\) | 239 |
8.4 Determine la fórmula molecular de X.
X se biosintetiza en las arqueas según el siguiente esquema (\(E_1\), \(E_2\) y \(E_3\): enzimas):
En la primera etapa, la lisina se transforma en su isómero estructural (un α-aminoácido, C), mientras que D contiene un enlace peptídico y E, un grupo formilo \(\ce{-CHO}\). Todos los coeficientes de reacción del esquema anterior son iguales a 1.
8.5 i) Indique la fórmula química de C, D y E.
ii) Entre los tipos de reacción indicados a continuación, elija (marque) solo uno que corresponda a la reacción catalizada por la enzima \(E_3\).
- ☐ Desaminación oxidativa
- ☐ Descarboxilación
- ☐ Desaminación intermolecular
- ☐ Hidroxilación
- ☐ Hidrólisis del enlace peptídico
X contiene el siguiente fragmento:
R es un sustituyente de gran masa (\(M>100\ \mathrm{g\,mol^{-1}}\)). El tercer átomo de carbono no es asimétrico. Los átomos de carbono cuarto y quinto son centros estereogénicos. Todos los átomos de carbono del ciclo están unidos al menos a un átomo de hidrógeno. Cada sustituyente (H, Me y R) aparece una sola vez.
8.6 Determine las posiciones de los sustituyentes H, Me y R.
8.7 Dibuje las fórmulas estructurales de C y X con los detalles estereoquímicos. Marque cada estereocentro de X con \(R\) o \(S\).
Solo un codón es responsable de la incorporación de los residuos de X a las proteínas de las arqueas. Las bases nitrogenadas que forman este codón contienen en total dos grupos amino exocíclicos y tres átomos de oxígeno exocíclicos.
8.8 Determine la composición nucleotídica del codón completando la tabla siguiente. Escriba el número de cada base nitrogenada en el codón que codifica X. Marque solo una casilla en cada fila.
Número de bases en el codón
| Base nitrogenada | 1 | 2 | 3 | 0 o 1 | 1 o 2 |
|---|---|---|---|---|---|
| A | |||||
| C | |||||
| G | |||||
| U |
El fragmento de la secuencia codificante de ARNm que se muestra a continuación contiene los codones que codifican la incorporación del residuo de X a una enzima de arqueas:
\(5'\ldots\mathrm{AAUAGAAUUAGCGGAACAGAGGGUGAC}\ldots3'\)
8.9 a Utilizando la tabla del código genético, determine cuántos residuos de aminoácidos se incorporan a la cadena de la enzima como resultado de la traducción de este fragmento.
8.9 b Escriba la secuencia de aminoácidos traducida a partir de este fragmento. Tenga en cuenta que en el fragmento se encuentra más de un residuo de X.
Complete las casillas siguientes con las abreviaturas de los aminoácidos (del extremo N al extremo C).
Tenga en cuenta que hay más casillas de las necesarias. Si hay más de una posibilidad, escríbalas todas separadas por «/». Si la traducción se detiene en una posición concreta, escriba «STOP» y deje vacías todas las casillas situadas a la derecha.
(a) Codones de ARN para los veinte aminoácidos
Segunda base
| Primera base | U | C | A | G | Tercera base |
|---|---|---|---|---|---|
| U | Phe | Ser | Tyr | Cys | U |
| U | Phe | Ser | Tyr | Cys | C |
| U | Leu | Ser | STOP | STOP | A |
| U | Leu | Ser | STOP | Trp | G |
| C | Leu | Pro | His | Arg | U |
| C | Leu | Pro | His | Arg | C |
| C | Leu | Pro | Gln | Arg | A |
| C | Leu | Pro | Gln | Arg | G |
| A | Ile | Thr | Asn | Ser | U |
| A | Ile | Thr | Asn | Ser | C |
| A | Ile | Thr | Lys | Arg | A |
| A | Met (inicio) | Thr | Lys | Arg | G |
| G | Val | Ala | Asp | Gly | U |
| G | Val | Ala | Asp | Gly | C |
| G | Val | Ala | Glu | Gly | A |
| G | Val | Ala | Glu | Gly | G |
| Abreviaturas de los aminoácidos: |
|---|
| Ala = Alanina |
| Arg = Arginina |
| Asp = Ácido aspártico |
| Asn = Asparagina |
| Cys = Cisteína |
| Glu = Ácido glutámico |
| Gln = Glutamina |
| Gly = Glicina |
| His = Histidina |
| Ile = Isoleucina |
| Leu = Leucina |
| Lys = Lisina |
| Met = Metionina |
| Phe = Fenilalanina |
| Pro = Prolina |
| Ser = Serina |
| Thr = Treonina |
| Trp = Triptófano |
| Tyr = Tirosina |
| Val = Valina |
Enunciado traducido del texto oficial en inglés.
Respuestas
-
8.1: \(A=25\%\), \(B=75\%\) en volumen.
-
8.2: A es dióxido de carbono-\(^{13}\mathrm C\), \(\ce{^{13}CO2}\),
O=[13C]=O; B es metano-\(^{13}\mathrm C\), \(\ce{^{13}CH4}\),[13CH4]. -
8.3: \[ \boxed{\ce{4 ^{13}CH3NH3+ + 3 H2O -> 3 ^{13}CH4 + H^{13}CO3- + 4 NH4+ + H+}} \]
-
8.4: \(\boxed{\ce{C12H21N3O3}}\). X es pirrolisina,
N[C@@H](CCCCNC(=O)[C@@H]1N=CC[C@H]1C)C(=O)O. -
8.5 i: \(\boxed{\mathbf C:\ce{C6H14N2O2};\quad \mathbf D:\ce{C12H26N4O3};\quad \mathbf E:\ce{C12H23N3O4}}\). Sus nombres y SMILES estructurales se indican en la solución.
-
8.5 ii: Desaminación oxidativa.
-
8.6: \(\boxed{3:\mathrm H;\quad4:\mathrm{Me};\quad5:\mathrm R}\).
-
8.7: C es ácido \((2R,3R)\)-2,5-diamino-3-metilpentanoico,
N[C@H]([C@H](C)CCN)C(=O)O. X tiene tres estereocentros: el carbono α de la lisina es \(S\), y las posiciones 4 y 5 del anillo son ambas \(R\). -
8.8: Marque 1 para A, 0 o 1 para C, 0 o 1 para G y 1 para U. Está presente exactamente una de las bases C y G.
-
8.9 a: \(\boxed{8\text{ residuos de aminoácidos}}\), leyendo UGA como selenocisteína en este fragmento codificante de la enzima.
-
8.9 b: Del extremo N al extremo C: \[ \boxed{\mathrm{X-Asn-X-Arg-Asn-Arg-Gly-Sec}} \] Aquí X es pirrolisina y Sec es selenocisteína. Complete ocho casillas y deje vacías las dos restantes.
Solución
8.1
A la misma temperatura y presión, los volúmenes de los gases son proporcionales a sus cantidades en moles. Por tanto,
\[ \phi_A=\frac{1}{1+3}\times100\%=25\%, \qquad \phi_B=\frac{3}{1+3}\times100\%=75\%. \]
8.2
El gas de referencia es el dihidrógeno, \(\ce{H2}\), [H][H]. Utilizando las masas atómicas enteras adecuadas para los datos proporcionados,
\[ \overline M =D_{\ce{H2}}M_{\ce{H2}} =12.0\times2.00 =24.0\ \mathrm{g\,mol^{-1}}. \]
Puesto que \(n_A:n_B=1:3\),
\[ \frac{M_A+3M_B}{4}=24.0\ \mathrm{g\,mol^{-1}}. \]
El sustrato es metilamina-\(^{13}\mathrm C\), [13CH3]N. Su carbono tiene un estado de oxidación de \(-2\). La desproporción puede oxidar un carbono a \(+4\) en el dióxido de carbono y reducir tres carbonos a \(-4\) en el metano: el primero libera seis electrones, mientras que los otros tres consumen dos electrones cada uno.
Para los productos marcados,
\[ M(\ce{^{13}CO2})=13+2(16)=45\ \mathrm{g\,mol^{-1}}, \] \[ M(\ce{^{13}CH4})=13+4(1)=17\ \mathrm{g\,mol^{-1}}. \]
Su masa molar media es
\[ \frac{45+3(17)}4=24.0\ \mathrm{g\,mol^{-1}}, \]
lo que concuerda con la densidad medida. Por tanto, A es dióxido de carbono marcado y B es metano marcado, con las identidades y los SMILES indicados anteriormente.
8.3
A pH 7, las formas acuosas predominantes son el metilamonio en lugar de la metilamina, el amonio en lugar del amoníaco y el hidrogenocarbonato en lugar del dióxido de carbono disuelto.
Las especies adicionales de la ecuación son:
| Especie | Nombre | SMILES |
|---|---|---|
| \(\ce{^{13}CH3NH3+}\) | Metilamonio-\(^{13}\mathrm C\) | [13CH3][NH3+] |
| \(\ce{H2O}\) | Agua | O |
| \(\ce{H^{13}CO3-}\) | Hidrogenocarbonato-\(^{13}\mathrm C\) | O[13C](=O)[O-] |
| \(\ce{NH4+}\) | Amonio | [NH4+] |
| \(\ce{H+}\) | Ion hidrógeno, que representa convencionalmente un protón solvatado | [H+] |
La ecuación ajustada es
\[ \boxed{\ce{4 ^{13}CH3NH3+ + 3 H2O -> 3 ^{13}CH4 + H^{13}CO3- + 4 NH4+ + H+}}. \]
Ambos miembros contienen cuatro átomos de carbono, treinta átomos de hidrógeno, cuatro átomos de nitrógeno y tres átomos de oxígeno; ambos tienen una carga total de \(+4\).
El producto oxidado gaseoso sigue siendo dióxido de carbono. Su relación con la forma disuelta predominante es
\[ \ce{^{13}CO2 + H2O <=> H^{13}CO3- + H+}. \]
8.4
El residuo unido al ARNt especificado es el grupo acilo \(\ce{RCH(NH2)CO}\). Recuperar el aminoácido libre añade un grupo OH, de masa molar \(17\ \mathrm{g\,mol^{-1}}\). Por tanto,
\[ M_X=238+17=255\ \mathrm{g\,mol^{-1}}. \]
Un α-aminoácido ya contiene C, H, N y O, por lo que estos son sus cuatro elementos. Su número de átomos de oxígeno es
\[ n_{\mathrm O} =\frac{0.188(255)}{16} =2.996\approx3. \]
Cada sustitución de \(\ce{^{12}C}\) por \(\ce{^{13}C}\), o de \(\ce{^{14}N}\) por \(\ce{^{15}N}\), aumenta la masa molar redondeada en \(1\ \mathrm{g\,mol^{-1}}\). Así,
\[ n_{\mathrm C}+n_{\mathrm N}=253-238=15. \]
Dos moléculas de lisina aportan como máximo doce carbonos y cuatro nitrógenos. El marcado selectivo de ambos grupos ε-amino iniciales aumenta la masa del producto en una sola unidad, por lo que se conserva exactamente uno de esos dos átomos de nitrógeno. Al incluir los dos posibles nitrógenos α-amino se obtiene
\[ n_{\mathrm N}\leq3,\qquad n_{\mathrm C}\leq12. \]
Su suma es quince, por lo que deben alcanzarse ambos límites superiores:
\[ n_{\mathrm C}=12,\qquad n_{\mathrm N}=3. \]
La masa restante corresponde al hidrógeno:
\[ n_{\mathrm H} =\frac{255-12(12)-3(14)-3(16)}{1} =21. \]
Por tanto,
\[ \boxed{X=\ce{C12H21N3O3}}. \]
El porcentaje de oxígeno queda comprobado:
\[ \frac{48}{255}\times100\%=18.82\%\approx18.8\%. \]
8.5 i
La L-lisina es el ácido \((2S)\)-2,6-diaminohexanoico, N[C@@H](CCCCN)C(=O)O, de fórmula molecular \(\ce{C6H14N2O2}\).
Como C es un isómero estructural de la lisina,
\[ \boxed{C=\ce{C6H14N2O2}}. \]
La condensación de una molécula de C con una molécula de lisina elimina una molécula de agua:
\[ \ce{C6H14N2O2 + C6H14N2O2 -> C12H26N4O3 + H2O}. \]
Por tanto,
\[ \boxed{D=\ce{C12H26N4O3}}. \]
Puesto que E pierde una molécula de agua para producir X,
\[ \ce{C12H23N3O4 -> C12H21N3O3 + H2O}, \]
y, por tanto,
\[ \boxed{E=\ce{C12H23N3O4}}. \]
Las estructuras, con la estereoquímica establecida en 8.6–8.7, son las siguientes. Estos SMILES representan las formas neutras de los ácidos libres.
| Compuesto | Nombre | SMILES |
|---|---|---|
| C | Ácido \((2R,3R)\)-2,5-diamino-3-metilpentanoico; 3-metil-D-ornitina | N[C@H]([C@H](C)CCN)C(=O)O |
| D | \(N^\varepsilon\)-[(2R,3R)-2,5-diamino-3-metilpentanoil]-L-lisina | N[C@@H](CCCCNC(=O)[C@H](N)[C@H](C)CCN)C(=O)O |
| E | \(N^\varepsilon\)-[(2R,3R)-2-amino-3-metil-5-oxopentanoil]-L-lisina | N[C@@H](CCCCNC(=O)[C@H](N)[C@H](C)CC=O)C(=O)O |
Sus conectividades condensadas son
\[ \begin{aligned} C:\;&\ce{HOOC-CH(NH2)-CH(CH3)-CH2-CH2-NH2},\\ D:\;&\ce{HOOC-CH(NH2)-(CH2)4-NH-C(=O)-CH(NH2)-CH(CH3)-CH2-CH2-NH2},\\ E:\;&\ce{HOOC-CH(NH2)-(CH2)4-NH-C(=O)-CH(NH2)-CH(CH3)-CH2-CHO}. \end{aligned} \]
La amida de D une el grupo carboxilo de C al grupo ε-amino de la segunda molécula de lisina.
8.5 ii
El grupo aminometilo terminal de D se convierte en el grupo aldehído de E. Se trata de una desaminación oxidativa.
Escribiendo las formas moleculares neutras, su semirreacción de oxidación es
\[ \ce{C12H26N4O3 + H2O -> C12H23N3O4 + NH3 + 2 H+ + 2 e-}. \]
Aquí \(\ce{NH3}\) es amoníaco, N. El aceptor de electrones no se especifica en el problema.
El grupo amino que se conserva en E ataca entonces a su carbono aldehídico de forma intramolecular. La condensación elimina agua y forma el anillo imínico de cinco miembros de X.
8.6
La posición 3 es un carbono saturado del anillo con dos recorridos distintos por el anillo. Un sustituyente metilo o R en esa posición produciría un carbono metínico estereogénico. Puesto que se indica expresamente que la posición 3 no es asimétrica, el sustituyente señalado debe ser H, lo que la convierte en un grupo metileno.
Los sustituyentes restantes, Me y R, ocupan las posiciones 4 y 5.
Invierta conceptualmente la condensación final que forma la imina: el carbono imínico de la posición 2 se convierte en el aldehído, mientras que el nitrógeno del anillo se convierte en un grupo amino unido a la posición 5. Como el precursor C es un α-aminoácido, su carbonilo derivado del carboxilo debe estar unido directamente a ese carbono portador del grupo amino. Por tanto, el sustituyente carboxamida de gran tamaño se encuentra en la posición 5:
\[ \mathrm R=\ce{-C(=O)-NH-(CH2)4-CH(NH2)-COOH}. \]
Este es el sustituyente carboxamida derivado de la lisina, representado con su punto de unión al anillo marcado mediante [*] como [*]C(=O)NCCCC[C@H](N)C(=O)O. Su composición es \(\ce{C7H13N2O3}\), que corresponde a aproximadamente \(173\ \mathrm{g\,mol^{-1}}\), de acuerdo con la condición de masa indicada.
En consecuencia,
\[ \boxed{3:\mathrm H,\qquad4:\mathrm{Me},\qquad5:\mathrm R}. \]
8.7
Para C, la estructura requerida es
\[ \ce{HOOC-CH(NH2)-CH(CH3)-CH2-CH2-NH2}, \]
con las configuraciones \(\boxed{2R,3R}\).
Una descripción precisa de la proyección de Fischer es la siguiente: coloque el grupo carboxilo arriba y la cadena \(\ce{CH2CH2NH2}\) abajo; sitúe el grupo amino a la derecha en C2 y el grupo metilo a la derecha en C3, con el hidrógeno a la izquierda en ambos centros. Su SMILES estereoquímico es N[C@H]([C@H](C)CCN)C(=O)O.
Para X, conserve la orientación del anillo de cinco miembros mostrada en la pregunta:
- El doble enlace une N1 y C2.
- C3 es un grupo metileno.
- C4 lleva el metilo en el enlace de trazos, dirigido en sentido opuesto al observador.
- C5 lleva R en la cuña sólida, dirigida hacia el observador.
- El carbono α de la lisina conserva su configuración \(S\).
Las prioridades CIP establecen las configuraciones del anillo:
| Centro | Prioridades, de mayor a menor | Configuración |
|---|---|---|
| C4 del anillo | Recorrido por el anillo a través de C5; recorrido por el anillo a través de C3; metilo; H | \(R\) |
| C5 del anillo | N del anillo; carbono carbonílico de R; C4 del anillo; H | \(R\) |
| Carbono α de la lisina | N del grupo amino; carbono del carboxilo; carbono de la cadena lateral; H | \(S\) |
Por ejemplo, en C5 del anillo, el carbono carbonílico tiene la lista de comparación \((\mathrm O,\mathrm O,\mathrm N)\), que tiene prioridad sobre la lista \((\mathrm C,\mathrm C,\mathrm H)\) de C4 del anillo.
Así, X es pirrolisina, con
\[ \boxed{\text{lisina }\alpha:S;\qquad\text{anillo }4:R;\qquad\text{anillo }5:R}. \]
Su SMILES estereoquímico completo es
N[C@@H](CCCCNC(=O)[C@@H]1N=CC[C@H]1C)C(=O)O.
Las cuñas especifican la configuración; no exigen una conformación fija concreta del anillo.
8.8
Los recuentos de grupos funcionales en las cuatro bases son:
| Base | Nombre y SMILES | Grupos amino exocíclicos | Átomos de oxígeno exocíclicos |
|---|---|---|---|
| A | Adenina, Nc1ncnc2[nH]cnc12 |
1 | 0 |
| C | Citosina, Nc1cc[nH]c(=O)n1 |
1 | 1 |
| G | Guanina, Nc1nc2[nH]cnc2c(=O)[nH]1 |
1 | 1 |
| U | Uracilo, O=c1cc[nH]c(=O)[nH]1 |
0 | 2 |
Sean \(a,c,g,u\) sus cantidades en el codón. Un codón contiene tres bases:
\[ a+c+g+u=3. \]
Los dos grupos amino dan
\[ a+c+g=2, \]
por lo que \(u=1\). Los tres átomos de oxígeno dan
\[ c+g+2u=3, \]
de donde \(c+g=1\) y, por tanto, \(a=1\).
La tabla completa es
| Base nitrogenada | 1 | 2 | 3 | 0 o 1 | 1 o 2 |
|---|---|---|---|---|---|
| A | ✓ | ||||
| C | ✓ | ||||
| G | ✓ | ||||
| U | ✓ |
Así, el codón contiene una A, una U y una C o una G. Esto determina la composición, pero todavía no el orden.
8.9 a
Un codón candidato para X debe contener exactamente las bases AUC o AUG en algún orden. Al comprobar los tres marcos de lectura, los dos primeros no contienen ningún codón completo con ninguna de las dos composiciones. El tercer marco da
\[ 5'\ldots\mathrm{AA}\mid \mathrm{UAG}\mid \mathrm{AAU}\mid \mathrm{UAG}\mid \mathrm{CGG}\mid \mathrm{AAC}\mid \mathrm{AGA}\mid \mathrm{GGG}\mid \mathrm{UGA}\mid \mathrm C\ldots3'. \]
UAG aparece dos veces, mientras que UGA aparece una vez. Puesto que solo un codón codifica X y en el fragmento aparece más de un residuo de X,
\[ \boxed{\text{codón de X}=\mathrm{UAG}}. \]
Hay ocho codones completos. El AA inicial y la C final son codones incompletos y no aportan residuos al recuento solicitado.
Puesto que el fragmento pertenece a la secuencia codificante de la enzima, el último codón completo, UGA, se lee como selenocisteína en este fragmento codificante de la enzima. Por tanto,
\[ \boxed{8\text{ residuos de aminoácidos se incorporan}}. \]
8.9 b
La traducción es
| Codón completo | Residuo |
|---|---|
| UAG | X, pirrolisina |
| AAU | Asn |
| UAG | X, pirrolisina |
| CGG | Arg |
| AAC | Asn |
| AGA | Arg |
| GGG | Gly |
| UGA | Sec |
Por tanto, del extremo N al extremo C,
\[ \boxed{\mathrm{X-Asn-X-Arg-Asn-Arg-Gly-Sec}}. \]
Los aminoácidos adicionales se identifican a continuación. Los SMILES describen sus aminoácidos libres neutros; la incorporación a la proteína da los residuos peptídicos correspondientes.
| Abreviatura | Nombre | SMILES |
|---|---|---|
| Asn | L-Asparagina | N[C@@H](CC(=O)N)C(=O)O |
| Arg | L-Arginina | N[C@@H](CCCNC(=N)N)C(=O)O |
| Gly | Glicina | NCC(=O)O |
| Sec | L-Selenocisteína, con configuración \(R\) en su carbono α | N[C@@H](C[SeH])C(=O)O |
Complete las primeras ocho casillas de respuesta con esta secuencia y deje vacías las dos últimas.
La solución se comprobó con la solución oficial.
IChO 2013 · 理论题 8
古菌独特的生命活动
古菌(或古细菌)是单细胞微生物。它们在分子水平上与细菌和真核生物存在显著差异。
甲胺与水的酶促反应是某些古菌的主要能量来源。在一项实验中,将一株古菌置于 pH 7 的厌氧(无氧)条件下培养,培养基以 \(\ce{^{13}CH3NH2}\) 为唯一能量来源。培养一段时间后,对古菌培养物上方的气体取样并进行分析。发现气体含有两种物质 A 和 B,二者的物质的量之比为 1 : 3(样品相对于 \(\ce{H2}\) 的密度为 12.0)。
8.1 计算混合物中 A 和 B 的体积分数(以 % 表示)。
8.2 若收集到的气体中不含氮原子,确定 A 和 B。
8.3 用各物种的主要存在形式,写出上述实验中甲胺与水发生酶促反应的方程式。
在许多能够利用甲胺的古菌中,发现了含有 α-氨基酸 X 残基的酶。已知 X:
- 由 4 种元素的原子组成;
- 氧的质量分数为 18.8%;
- 具有唯一一种专属的 tRNA,并在翻译过程中掺入古菌的蛋白质。
已确定氨基酸 L-赖氨酸(结构见下方反应示意图)是古菌中 X 的前体。X 中的所有碳原子和氮原子均来自两个起始赖氨酸分子。为阐明 X 的生物合成途径,将不同同位素标记的 L-赖氨酸引入一个模型体系。结果汇总于下表。
| L-赖氨酸的同位素组成 | 与 tRNA 结合的 X 残基 \(\ce{[RCH(NH2)CO]}\) 的摩尔质量(取整),\((\mathrm{g\,mol^{-1}})\) |
|---|---|
| 正常 | 238 |
| 所有碳均为 \(\ce{^{13}C}\),所有氮均为 \(\ce{^{15}N}\) | 253 |
| ε-氨基中的氮为 \(\ce{^{15}N}\) | 239 |
8.4 确定 X 的分子式。
X 在古菌中按以下反应示意图进行生物合成(\(E_1\)、\(E_2\) 和 \(E_3\) 为酶):
第一步中,赖氨酸转化为其构造异构体(α-氨基酸 C);D 含有一个肽键,E 含有一个甲酰基 \(\ce{-CHO}\)。上述反应示意图中的所有反应系数均为 1。
8.5 i) 写出 C、D 和 E 的化学式。
ii) 从下列反应类型中选择(打勾)与酶 \(E_3\) 催化的反应相对应的唯一一项。
- ☐ 氧化脱氨
- ☐ 脱羧
- ☐ 分子间脱氨
- ☐ 羟基化
- ☐ 肽键水解
X 含有以下片段:
R 是一个质量较大的取代基(\(M>100\ \mathrm{g\,mol^{-1}}\))。第 3 个碳原子不是不对称碳原子。第 4 和第 5 个碳原子为立体中心。环中的所有碳原子都至少连接一个氢原子。每种取代基(H、Me 和 R)都只出现一次。
8.6 确定取代基 H、Me 和 R 的位置。
8.7 画出 C 和 X 的结构式,并标明立体化学细节。用 \(R\) 或 \(S\) 标注 X 的每个立体中心。
在古菌中,只有一个密码子负责将 X 残基掺入蛋白质。构成该密码子的含氮碱基共含有两个环外氨基和三个环外氧原子。
8.8 填写下表,确定该密码子的核苷酸组成。写出编码 X 的密码子中各含氮碱基的数目。每行仅在一个方框内打勾。
密码子中碱基的数目
| 含氮碱基 | 1 | 2 | 3 | 0 或 1 | 1 或 2 |
|---|---|---|---|---|---|
| A | |||||
| C | |||||
| G | |||||
| U |
下列 mRNA 编码序列片段含有使 X 残基掺入一种古菌酶的密码子:
\(5'\ldots\mathrm{AAUAGAAUUAGCGGAACAGAGGGUGAC}\ldots3'\)
8.9 a 利用遗传密码表,判断翻译此片段会使多少个氨基酸残基掺入该酶的肽链。
8.9 b 写出由此片段翻译得到的氨基酸序列。注意,该片段中含有不止一个 X 残基。
在下方方框中填写氨基酸缩写(从 N 端到 C 端)。
注意,方框数多于所需数量。若存在多种可能性,请全部写出,并用“/”分隔。若翻译在某个位置终止,请填写“STOP”,并将其右侧所有方框留空。
(a) 二十种氨基酸的 RNA 密码子
第二个碱基
| 第一个碱基 | U | C | A | G | 第三个碱基 |
|---|---|---|---|---|---|
| U | Phe | Ser | Tyr | Cys | U |
| U | Phe | Ser | Tyr | Cys | C |
| U | Leu | Ser | STOP | STOP | A |
| U | Leu | Ser | STOP | Trp | G |
| C | Leu | Pro | His | Arg | U |
| C | Leu | Pro | His | Arg | C |
| C | Leu | Pro | Gln | Arg | A |
| C | Leu | Pro | Gln | Arg | G |
| A | Ile | Thr | Asn | Ser | U |
| A | Ile | Thr | Asn | Ser | C |
| A | Ile | Thr | Lys | Arg | A |
| A | Met(起始) | Thr | Lys | Arg | G |
| G | Val | Ala | Asp | Gly | U |
| G | Val | Ala | Asp | Gly | C |
| G | Val | Ala | Glu | Gly | A |
| G | Val | Ala | Glu | Gly | G |
| 氨基酸缩写: |
|---|
| Ala = 丙氨酸 |
| Arg = 精氨酸 |
| Asp = 天冬氨酸 |
| Asn = 天冬酰胺 |
| Cys = 半胱氨酸 |
| Glu = 谷氨酸 |
| Gln = 谷氨酰胺 |
| Gly = 甘氨酸 |
| His = 组氨酸 |
| Ile = 异亮氨酸 |
| Leu = 亮氨酸 |
| Lys = 赖氨酸 |
| Met = 甲硫氨酸 |
| Phe = 苯丙氨酸 |
| Pro = 脯氨酸 |
| Ser = 丝氨酸 |
| Thr = 苏氨酸 |
| Trp = 色氨酸 |
| Tyr = 酪氨酸 |
| Val = 缬氨酸 |
题目译自官方英文原文。
答案
-
8.1: 体积分数为 \(A=25\%\)、\(B=75\%\)。
-
8.2: A 是二氧化碳-\(^{13}\mathrm C\),\(\ce{^{13}CO2}\),
O=[13C]=O;B 是甲烷-\(^{13}\mathrm C\),\(\ce{^{13}CH4}\),[13CH4]。 -
8.3: \[ \boxed{\ce{4 ^{13}CH3NH3+ + 3 H2O -> 3 ^{13}CH4 + H^{13}CO3- + 4 NH4+ + H+}} \]
-
8.4: \(\boxed{\ce{C12H21N3O3}}\)。X 是吡咯赖氨酸,
N[C@@H](CCCCNC(=O)[C@@H]1N=CC[C@H]1C)C(=O)O。 -
8.5 i: \(\boxed{\mathbf C:\ce{C6H14N2O2};\quad \mathbf D:\ce{C12H26N4O3};\quad \mathbf E:\ce{C12H23N3O4}}\)。它们的名称和结构 SMILES 见解答。
-
8.5 ii: 氧化脱氨。
-
8.6: \(\boxed{3:\mathrm H;\quad4:\mathrm{Me};\quad5:\mathrm R}\)。
-
8.7: C 是 \((2R,3R)\)-2,5-二氨基-3-甲基戊酸,
N[C@H]([C@H](C)CCN)C(=O)O。X 有三个立体中心:赖氨酸的 α-碳为 \(S\) 构型,环的 4 位和 5 位均为 \(R\) 构型。 -
8.8: A 勾选 1,C 勾选 0 或 1,G 勾选 0 或 1,U 勾选 1。C 和 G 中恰有一种存在。
-
8.9 a: \(\boxed{8\text{ 个氨基酸残基}}\),在该酶的编码片段中将 UGA 读作硒代半胱氨酸。
-
8.9 b: 从 N 端到 C 端: \[ \boxed{\mathrm{X-Asn-X-Arg-Asn-Arg-Gly-Sec}} \] 这里 X 为吡咯赖氨酸,Sec 为硒代半胱氨酸。填写八个方框,其余两个留空。
解答
8.1
在相同温度和压力下,气体体积与物质的量成正比。因此
\[ \phi_A=\frac{1}{1+3}\times100\%=25\%, \qquad \phi_B=\frac{3}{1+3}\times100\%=75\%. \]
8.2
参比气体为氢气,\(\ce{H2}\),[H][H]。采用与题给数据相适应的整数原子质量,
\[ \overline M =D_{\ce{H2}}M_{\ce{H2}} =12.0\times2.00 =24.0\ \mathrm{g\,mol^{-1}}. \]
由于 \(n_A:n_B=1:3\),
\[ \frac{M_A+3M_B}{4}=24.0\ \mathrm{g\,mol^{-1}}. \]
底物为甲胺-\(^{13}\mathrm C\),[13CH3]N。其中碳的氧化态为 \(-2\)。歧化反应可将一个碳氧化为二氧化碳中的 \(+4\) 价,同时将三个碳还原为甲烷中的 \(-4\) 价:前者释放六个电子,另外三个碳各接受两个电子。
对于标记产物,
\[ M(\ce{^{13}CO2})=13+2(16)=45\ \mathrm{g\,mol^{-1}}, \] \[ M(\ce{^{13}CH4})=13+4(1)=17\ \mathrm{g\,mol^{-1}}. \]
它们的平均摩尔质量为
\[ \frac{45+3(17)}4=24.0\ \mathrm{g\,mol^{-1}}, \]
与测得的密度一致。因此 A 是标记的二氧化碳,B 是标记的甲烷,其具体物质及 SMILES 如上所示。
8.3
在 pH 7 时,水溶液中的主要存在形式为甲铵离子而非甲胺、铵离子而非氨,以及碳酸氢根离子而非溶解的二氧化碳。
方程式中另外涉及的物种为:
| 物种 | 名称 | SMILES |
|---|---|---|
| \(\ce{^{13}CH3NH3+}\) | 甲铵离子-\(^{13}\mathrm C\) | [13CH3][NH3+] |
| \(\ce{H2O}\) | 水 | O |
| \(\ce{H^{13}CO3-}\) | 碳酸氢根离子-\(^{13}\mathrm C\) | O[13C](=O)[O-] |
| \(\ce{NH4+}\) | 铵离子 | [NH4+] |
| \(\ce{H+}\) | 氢离子,按惯例表示溶剂化质子 | [H+] |
配平后的方程式为
\[ \boxed{\ce{4 ^{13}CH3NH3+ + 3 H2O -> 3 ^{13}CH4 + H^{13}CO3- + 4 NH4+ + H+}}. \]
两侧均含有四个碳原子、三十个氢原子、四个氮原子和三个氧原子;两侧的总电荷均为 \(+4\)。
气态氧化产物仍为二氧化碳。它与主要溶解形式之间的关系为
\[ \ce{^{13}CO2 + H2O <=> H^{13}CO3- + H+}. \]
8.4
题目指定的与 tRNA 结合的残基为酰基 \(\ce{RCH(NH2)CO}\)。恢复为游离氨基酸需增加一个 OH 基团,其摩尔质量为 \(17\ \mathrm{g\,mol^{-1}}\)。因此
\[ M_X=238+17=255\ \mathrm{g\,mol^{-1}}. \]
α-氨基酸本身已含有 C、H、N 和 O,因此这四种元素就是其全部组成元素。其氧原子数为
\[ n_{\mathrm O} =\frac{0.188(255)}{16} =2.996\approx3. \]
每用一个 \(\ce{^{13}C}\) 替代 \(\ce{^{12}C}\),或用一个 \(\ce{^{15}N}\) 替代 \(\ce{^{14}N}\),取整后的摩尔质量就增加 \(1\ \mathrm{g\,mol^{-1}}\)。因此
\[ n_{\mathrm C}+n_{\mathrm N}=253-238=15. \]
两个赖氨酸分子最多提供十二个碳原子和四个氮原子。选择性标记两个起始 ε-氨基只使产物质量增加一个单位,因此这两个氮原子中恰有一个被保留。再计入两个可能保留的 α-氨基氮原子,可得
\[ n_{\mathrm N}\leq3,\qquad n_{\mathrm C}\leq12. \]
两者之和为十五,因此两者必定均达到各自的上限:
\[ n_{\mathrm C}=12,\qquad n_{\mathrm N}=3. \]
剩余质量来自氢:
\[ n_{\mathrm H} =\frac{255-12(12)-3(14)-3(16)}{1} =21. \]
因此
\[ \boxed{X=\ce{C12H21N3O3}}. \]
检验氧的质量百分数:
\[ \frac{48}{255}\times100\%=18.82\%\approx18.8\%. \]
8.5 i
L-赖氨酸为 \((2S)\)-2,6-二氨基己酸,N[C@@H](CCCCN)C(=O)O,分子式为 \(\ce{C6H14N2O2}\)。
由于 C 是赖氨酸的构造异构体,
\[ \boxed{C=\ce{C6H14N2O2}}. \]
一分子 C 与一分子赖氨酸缩合,脱去一分子水:
\[ \ce{C6H14N2O2 + C6H14N2O2 -> C12H26N4O3 + H2O}. \]
因此
\[ \boxed{D=\ce{C12H26N4O3}}. \]
由于 E 脱去一分子水生成 X,
\[ \ce{C12H23N3O4 -> C12H21N3O3 + H2O}, \]
故
\[ \boxed{E=\ce{C12H23N3O4}}. \]
结合 8.6–8.7 中确定的立体化学,其结构如下。这些 SMILES 表示中性的游离酸形式。
| 化合物 | 名称 | SMILES |
|---|---|---|
| C | \((2R,3R)\)-2,5-二氨基-3-甲基戊酸;3-甲基-D-鸟氨酸 | N[C@H]([C@H](C)CCN)C(=O)O |
| D | \(N^\varepsilon\)-[(2R,3R)-2,5-二氨基-3-甲基戊酰基]-L-赖氨酸 | N[C@@H](CCCCNC(=O)[C@H](N)[C@H](C)CCN)C(=O)O |
| E | \(N^\varepsilon\)-[(2R,3R)-2-氨基-3-甲基-5-氧代戊酰基]-L-赖氨酸 | N[C@@H](CCCCNC(=O)[C@H](N)[C@H](C)CC=O)C(=O)O |
它们的连接关系可用以下结构简式表示:
\[ \begin{aligned} C:\;&\ce{HOOC-CH(NH2)-CH(CH3)-CH2-CH2-NH2},\\ D:\;&\ce{HOOC-CH(NH2)-(CH2)4-NH-C(=O)-CH(NH2)-CH(CH3)-CH2-CH2-NH2},\\ E:\;&\ce{HOOC-CH(NH2)-(CH2)4-NH-C(=O)-CH(NH2)-CH(CH3)-CH2-CHO}. \end{aligned} \]
D 中的酰胺键将 C 的羧基与第二个赖氨酸分子的 ε-氨基连接起来。
8.5 ii
D 中末端的氨甲基变为 E 中的醛基。这是氧化脱氨。
用中性分子形式书写,其氧化半反应为
\[ \ce{C12H26N4O3 + H2O -> C12H23N3O4 + NH3 + 2 H+ + 2 e-}. \]
这里 \(\ce{NH3}\) 为氨,N。题目未指定电子受体。
随后,E 中保留的氨基在分子内进攻其醛基碳原子。缩合反应脱去水,形成 X 的五元亚胺环。
8.6
3 位是饱和的环碳原子,从该原子出发沿环的两个方向延伸的路径不同。若该位置连接甲基或 R 取代基,就会形成具有立体异构性的次甲基碳原子。由于题目明确指出 3 位不是不对称碳原子,因此该位置所示的取代基必须为 H,使其成为亚甲基。
其余取代基 Me 和 R 占据 4 位和 5 位。
设想将最后形成亚胺的缩合反应逆向进行:2 位的亚胺碳变为醛基,而环氮变为连接在 5 位上的氨基。由于前体 C 是一种 α-氨基酸,其由羧基衍生的羰基必须直接连接在这个带氨基的碳原子上。因此,体积较大的甲酰胺取代基位于 5 位:
\[ \mathrm R=\ce{-C(=O)-NH-(CH2)4-CH(NH2)-COOH}. \]
这是由赖氨酸衍生的甲酰胺取代基;用 [*] 标记其与环的连接位置,可表示为 [*]C(=O)NCCCC[C@H](N)C(=O)O。其组成为 \(\ce{C7H13N2O3}\),对应的摩尔质量约为 \(173\ \mathrm{g\,mol^{-1}}\),符合题目给出的质量条件。
因此,
\[ \boxed{3:\mathrm H,\qquad4:\mathrm{Me},\qquad5:\mathrm R}. \]
8.7
对于 C,所需结构为
\[ \ce{HOOC-CH(NH2)-CH(CH3)-CH2-CH2-NH2}, \]
构型为 \(\boxed{2R,3R}\)。
其费歇尔投影式的准确描述为:将羧基置于顶端,\(\ce{CH2CH2NH2}\) 链置于底端;在 C2 处将氨基置于右侧,在 C3 处将甲基置于右侧,两个中心的氢均位于左侧。其立体化学 SMILES 为 N[C@H]([C@H](C)CCN)C(=O)O。
对于 X,保持题图中所示五元环的取向:
- 双键连接 N1 和 C2。
- C3 为亚甲基。
- C4 上的甲基通过虚线键相连,背向观察者。
- C5 上的 R 通过实楔形键相连,朝向观察者。
- 赖氨酸的 α-碳保留其 \(S\) 构型。
CIP 优先次序可确定环上各中心的构型:
| 中心 | 优先次序,从高到低 | 构型 |
|---|---|---|
| 环 C4 | 经 C5 的环路径;经 C3 的环路径;甲基;H | \(R\) |
| 环 C5 | 环 N;R 的羰基碳;环 C4;H | \(R\) |
| 赖氨酸 α-碳 | 氨基 N;羧基碳;侧链碳;H | \(S\) |
例如,在环 C5 处,羰基碳的比较列表为 \((\mathrm O,\mathrm O,\mathrm N)\),其优先次序高于环 C4 的列表 \((\mathrm C,\mathrm C,\mathrm H)\)。
因此,X 为吡咯赖氨酸,其构型为
\[ \boxed{\text{赖氨酸 }\alpha:S;\qquad\text{环 }4:R;\qquad\text{环 }5:R}. \]
其完整的立体化学 SMILES 为
N[C@@H](CCCCNC(=O)[C@@H]1N=CC[C@H]1C)C(=O)O。
楔形键指定的是构型,并不要求环采取某一种固定构象。
8.8
四种碱基中各官能团的数目如下:
| 碱基 | 名称与 SMILES | 环外氨基数 | 环外氧原子数 |
|---|---|---|---|
| A | 腺嘌呤,Nc1ncnc2[nH]cnc12 |
1 | 0 |
| C | 胞嘧啶,Nc1cc[nH]c(=O)n1 |
1 | 1 |
| G | 鸟嘌呤,Nc1nc2[nH]cnc2c(=O)[nH]1 |
1 | 1 |
| U | 尿嘧啶,O=c1cc[nH]c(=O)[nH]1 |
0 | 2 |
设它们在密码子中的数目为 \(a,c,g,u\)。一个密码子含有三个碱基:
\[ a+c+g+u=3. \]
由两个氨基可得
\[ a+c+g=2, \]
故 \(u=1\)。由三个氧原子可得
\[ c+g+2u=3, \]
因此 \(c+g=1\),进而 \(a=1\)。
填写后的表格为
| 含氮碱基 | 1 | 2 | 3 | 0 或 1 | 1 或 2 |
|---|---|---|---|---|---|
| A | ✓ | ||||
| C | ✓ | ||||
| G | ✓ | ||||
| U | ✓ |
因此,该密码子含有一个 A、一个 U,以及一个 C 或一个 G。由此确定了组成,但尚未确定排列顺序。
8.9 a
X 的候选密码子必须恰好由 AUC 或 AUG 这组三个碱基按某种顺序排列而成。检查三个阅读框,前两个均不含具有上述任一组成的完整密码子。第三个阅读框给出
\[ 5'\ldots\mathrm{AA}\mid \mathrm{UAG}\mid \mathrm{AAU}\mid \mathrm{UAG}\mid \mathrm{CGG}\mid \mathrm{AAC}\mid \mathrm{AGA}\mid \mathrm{GGG}\mid \mathrm{UGA}\mid \mathrm C\ldots3'. \]
UAG 出现两次,而 UGA 出现一次。由于只有一个密码子编码 X,且该片段中含有不止一个 X 残基,
\[ \boxed{\text{X 的密码子}=\mathrm{UAG}}. \]
共有八个完整密码子。开头的 AA 和末尾的 C 属于不完整的密码子,不计入题目所求的残基数。
由于该片段属于此酶的编码序列,在该酶的编码片段中,最后一个完整密码子 UGA 被读作硒代半胱氨酸。因此
\[ \boxed{8\text{ 个氨基酸残基被掺入}}. \]
8.9 b
翻译结果为
| 完整密码子 | 残基 |
|---|---|
| UAG | X,吡咯赖氨酸 |
| AAU | Asn |
| UAG | X,吡咯赖氨酸 |
| CGG | Arg |
| AAC | Asn |
| AGA | Arg |
| GGG | Gly |
| UGA | Sec |
因此,从 N 端到 C 端为
\[ \boxed{\mathrm{X-Asn-X-Arg-Asn-Arg-Gly-Sec}}. \]
其余氨基酸的具体名称如下。SMILES 描述的是它们的中性游离氨基酸形式;掺入蛋白质后形成相应的肽残基。
| 缩写 | 名称 | SMILES |
|---|---|---|
| Asn | L-天冬酰胺 | N[C@@H](CC(=O)N)C(=O)O |
| Arg | L-精氨酸 | N[C@@H](CCCNC(=N)N)C(=O)O |
| Gly | 甘氨酸 | NCC(=O)O |
| Sec | L-硒代半胱氨酸,其 α-碳为 \(R\) 构型 | N[C@@H](C[SeH])C(=O)O |
在前八个答题方框中填入此序列,最后两个留空。
解答已与官方解答核对。
IChO 2013 · Теоретическая задача 8
Уникальная жизнь архей
Археи (или архебактерии) — одноклеточные микроорганизмы. На молекулярном уровне они существенно отличаются от бактерий и эукариот.
Ферментативная реакция метиламина с водой служит основным источником энергии для некоторых архей. В одном эксперименте штамм архей культивировали при pH 7 в анаэробных (бескислородных) условиях на питательной среде, содержащей \(\ce{^{13}CH3NH2}\) в качестве единственного источника энергии. После определённого периода инкубации отобрали и проанализировали пробу газа над культурой архей. Было установлено, что газ содержит два вещества, A и B, в молярном отношении 1 : 3 соответственно (плотность пробы относительно \(\ce{H2}\) равна 12.0).
8.1 Рассчитайте объёмные доли (в %) A и B в смеси.
8.2 Определите A и B, если в собранном газе нет атомов азота.
8.3 Запишите уравнение ферментативной реакции метиламина с водой, описанной в приведённом выше эксперименте, используя преобладающую форму каждого химического вида.
У многих архей, способных использовать метиламин, обнаружены ферменты, содержащие остаток α-аминокислоты X. Известно, что X:
- состоит из атомов 4 элементов;
- содержит 18.8 массовых % кислорода;
- имеет единственную собственную тРНК и включается в белки архей в ходе трансляции.
В качестве предшественника X у архей была идентифицирована аминокислота L-лизин (см. структуру на схеме ниже). Все атомы углерода и азота в X происходят из двух исходных молекул лизина. Для выяснения путей биосинтеза X в модельную систему вводили различные изотопно-меченые L-лизины. Результаты приведены в таблице.
| Изотопный состав L-лизина | Молярная масса (округлённая до целого числа) остатка X \(\ce{[RCH(NH2)CO]}\), связанного с тРНК, \((\mathrm{g\,mol^{-1}})\) |
|---|---|
| Обычный | 238 |
| Все атомы углерода — \(\ce{^{13}C}\), все атомы азота — \(\ce{^{15}N}\) | 253 |
| ε-Аминогруппа с \(\ce{^{15}N}\) | 239 |
8.4 Определите молекулярную формулу X.
Биосинтез X у архей происходит по следующей схеме (\(E_1\), \(E_2\) и \(E_3\) — ферменты):
На первой стадии лизин превращается в свой структурный изомер (α-аминокислоту C), при этом D содержит пептидную связь, а E — формильную группу \(\ce{-CHO}\). Все коэффициенты реакций на приведённой выше схеме равны 1.
8.5 i) Приведите химические формулы C, D и E.
ii) Из приведённых ниже типов реакций выберите (отметьте галочкой) только один, соответствующий реакции, катализируемой ферментом \(E_3\).
- ☐ Окислительное дезаминирование
- ☐ Декарбоксилирование
- ☐ Межмолекулярное дезаминирование
- ☐ Гидроксилирование
- ☐ Гидролиз пептидной связи
X содержит следующий фрагмент:
R — заместитель с большой молярной массой (\(M>100\ \mathrm{g\,mol^{-1}}\)). 3-й атом углерода не является асимметрическим. 4-й и 5-й атомы углерода являются стереогенными центрами. Все атомы углерода в цикле связаны по меньшей мере с одним атомом водорода. Каждый заместитель (H, Me и R) встречается только один раз.
8.6 Определите положения заместителей H, Me и R.
8.7 Изобразите структурные формулы C и X с указанием стереохимии. Обозначьте каждый стереоцентр X как \(R\) или \(S\).
Только один кодон отвечает за включение остатков X в белки архей. Азотистые основания, образующие этот кодон, содержат в общей сложности две экзоциклические аминогруппы и три экзоциклических атома кислорода.
8.8 Определите нуклеотидный состав кодона, заполнив приведённую ниже таблицу. Запишите число каждого азотистого основания в кодоне, кодирующем X. Отметьте галочкой только одну клетку в каждой строке.
Число оснований в кодоне
| Азотистое основание | 1 | 2 | 3 | 0 или 1 | 1 или 2 |
|---|---|---|---|---|---|
| A | |||||
| C | |||||
| G | |||||
| U |
Приведённый ниже фрагмент кодирующей последовательности мРНК содержит кодоны, кодирующие включение остатков X в фермент архей:
\(5'\ldots\mathrm{AAUAGAAUUAGCGGAACAGAGGGUGAC}\ldots3'\)
8.9 a Используя таблицу генетического кода, определите, сколько аминокислотных остатков включается в цепь фермента в результате трансляции этого фрагмента.
8.9 b Запишите аминокислотную последовательность, получаемую при трансляции этого фрагмента. Учтите, что во фрагменте присутствует более одного остатка X.
Заполните приведённые ниже клетки сокращёнными обозначениями аминокислот (от N-конца к C-концу).
Учтите, что число клеток избыточно. Если существует более одного варианта, запишите все варианты через «/». Если в определённом положении трансляция прекращается, напишите «STOP» и оставьте все клетки справа пустыми.
(a) Кодоны РНК для двадцати аминокислот
Второе основание
| Первое основание | U | C | A | G | Третье основание |
|---|---|---|---|---|---|
| U | Phe | Ser | Tyr | Cys | U |
| U | Phe | Ser | Tyr | Cys | C |
| U | Leu | Ser | STOP | STOP | A |
| U | Leu | Ser | STOP | Trp | G |
| C | Leu | Pro | His | Arg | U |
| C | Leu | Pro | His | Arg | C |
| C | Leu | Pro | Gln | Arg | A |
| C | Leu | Pro | Gln | Arg | G |
| A | Ile | Thr | Asn | Ser | U |
| A | Ile | Thr | Asn | Ser | C |
| A | Ile | Thr | Lys | Arg | A |
| A | Met (старт) | Thr | Lys | Arg | G |
| G | Val | Ala | Asp | Gly | U |
| G | Val | Ala | Asp | Gly | C |
| G | Val | Ala | Glu | Gly | A |
| G | Val | Ala | Glu | Gly | G |
| Сокращённые обозначения аминокислот: |
|---|
| Ala = Аланин |
| Arg = Аргинин |
| Asp = Аспарагиновая кислота |
| Asn = Аспарагин |
| Cys = Цистеин |
| Glu = Глутаминовая кислота |
| Gln = Глутамин |
| Gly = Глицин |
| His = Гистидин |
| Ile = Изолейцин |
| Leu = Лейцин |
| Lys = Лизин |
| Met = Метионин |
| Phe = Фенилаланин |
| Pro = Пролин |
| Ser = Серин |
| Thr = Треонин |
| Trp = Триптофан |
| Tyr = Тирозин |
| Val = Валин |
Условие переведено с официального английского текста.
Ответы
-
8.1: \(A=25\%\), \(B=75\%\) по объёму.
-
8.2: A — диоксид углерода-\(^{13}\mathrm C\), \(\ce{^{13}CO2}\),
O=[13C]=O; B — метан-\(^{13}\mathrm C\), \(\ce{^{13}CH4}\),[13CH4]. -
8.3: \[ \boxed{\ce{4 ^{13}CH3NH3+ + 3 H2O -> 3 ^{13}CH4 + H^{13}CO3- + 4 NH4+ + H+}} \]
-
8.4: \(\boxed{\ce{C12H21N3O3}}\). X — пирролизин,
N[C@@H](CCCCNC(=O)[C@@H]1N=CC[C@H]1C)C(=O)O. -
8.5 i: \(\boxed{\mathbf C:\ce{C6H14N2O2};\quad \mathbf D:\ce{C12H26N4O3};\quad \mathbf E:\ce{C12H23N3O4}}\). Их названия и структурные записи SMILES приведены в решении.
-
8.5 ii: Окислительное дезаминирование.
-
8.6: \(\boxed{3:\mathrm H;\quad4:\mathrm{Me};\quad5:\mathrm R}\).
-
8.7: C — \((2R,3R)\)-2,5-диамино-3-метилпентановая кислота,
N[C@H]([C@H](C)CCN)C(=O)O. У X три стереоцентра: α-атом углерода лизина имеет конфигурацию \(S\), а положения 4 и 5 в цикле — оба \(R\). -
8.8: Отметьте 1 для A, 0 или 1 для C, 0 или 1 для G и 1 для U. Присутствует ровно одно из оснований C и G.
-
8.9 a: \(\boxed{8\text{ аминокислотных остатков}}\), если UGA в этом фрагменте, кодирующем фермент, считывается как селеноцистеин.
-
8.9 b: От N-конца к C-концу: \[ \boxed{\mathrm{X-Asn-X-Arg-Asn-Arg-Gly-Sec}} \] Здесь X — пирролизин, а Sec — селеноцистеин. Заполните восемь клеток и оставьте две оставшиеся пустыми.
Решение
8.1
При одинаковых температуре и давлении объёмы газов пропорциональны их количествам вещества в молях. Поэтому
\[ \phi_A=\frac{1}{1+3}\times100\%=25\%, \qquad \phi_B=\frac{3}{1+3}\times100\%=75\%. \]
8.2
Газ сравнения — молекулярный водород, \(\ce{H2}\), [H][H]. Используя целочисленные атомные массы, соответствующие приведённым данным, получаем
\[ \overline M =D_{\ce{H2}}M_{\ce{H2}} =12.0\times2.00 =24.0\ \mathrm{g\,mol^{-1}}. \]
Поскольку \(n_A:n_B=1:3\),
\[ \frac{M_A+3M_B}{4}=24.0\ \mathrm{g\,mol^{-1}}. \]
Субстрат — метиламин-\(^{13}\mathrm C\), [13CH3]N. Его атом углерода имеет степень окисления \(-2\). При диспропорционировании один атом углерода может окислиться до \(+4\) в диоксиде углерода, а три атома углерода — восстановиться до \(-4\) в метане: первый отдаёт шесть электронов, а каждый из трёх остальных принимает по два электрона.
Для меченых продуктов
\[ M(\ce{^{13}CO2})=13+2(16)=45\ \mathrm{g\,mol^{-1}}, \] \[ M(\ce{^{13}CH4})=13+4(1)=17\ \mathrm{g\,mol^{-1}}. \]
Их средняя молярная масса равна
\[ \frac{45+3(17)}4=24.0\ \mathrm{g\,mol^{-1}}, \]
что согласуется с измеренной плотностью. Следовательно, A — меченый диоксид углерода, а B — меченый метан; их формулы и записи SMILES приведены выше.
8.3
При pH 7 преобладающими формами в водном растворе являются метиламмоний, а не метиламин, аммоний, а не аммиак, и гидрокарбонат, а не растворённый диоксид углерода.
Дополнительные химические виды в уравнении:
| Химический вид | Название | SMILES |
|---|---|---|
| \(\ce{^{13}CH3NH3+}\) | Метиламмоний-\(^{13}\mathrm C\) | [13CH3][NH3+] |
| \(\ce{H2O}\) | Вода | O |
| \(\ce{H^{13}CO3-}\) | Гидрокарбонат-\(^{13}\mathrm C\) | O[13C](=O)[O-] |
| \(\ce{NH4+}\) | Аммоний | [NH4+] |
| \(\ce{H+}\) | Ион водорода, условно обозначающий сольватированный протон | [H+] |
Уравнение с расставленными коэффициентами имеет вид
\[ \boxed{\ce{4 ^{13}CH3NH3+ + 3 H2O -> 3 ^{13}CH4 + H^{13}CO3- + 4 NH4+ + H+}}. \]
В обеих частях содержатся четыре атома углерода, тридцать атомов водорода, четыре атома азота и три атома кислорода; суммарный заряд каждой части равен \(+4\).
Газообразным продуктом окисления остаётся диоксид углерода. Его связь с преобладающей растворённой формой выражается равновесием
\[ \ce{^{13}CO2 + H2O <=> H^{13}CO3- + H+}. \]
8.4
Указанный остаток, связанный с тРНК, представляет собой ацильную группу \(\ce{RCH(NH2)CO}\). При восстановлении свободной аминокислоты добавляется группа OH с молярной массой \(17\ \mathrm{g\,mol^{-1}}\). Следовательно,
\[ M_X=238+17=255\ \mathrm{g\,mol^{-1}}. \]
α-Аминокислота уже содержит C, H, N и O, поэтому именно эти четыре элемента входят в её состав. Число атомов кислорода в ней равно
\[ n_{\mathrm O} =\frac{0.188(255)}{16} =2.996\approx3. \]
Каждая замена \(\ce{^{12}C}\) на \(\ce{^{13}C}\) или \(\ce{^{14}N}\) на \(\ce{^{15}N}\) увеличивает округлённую молярную массу на \(1\ \mathrm{g\,mol^{-1}}\). Таким образом,
\[ n_{\mathrm C}+n_{\mathrm N}=253-238=15. \]
Две молекулы лизина дают не более двенадцати атомов углерода и четырёх атомов азота. Избирательное мечение обеих исходных ε-аминогрупп увеличивает массу продукта только на одну единицу, поэтому сохраняется ровно один из этих двух атомов азота. С учётом двух возможных атомов азота α-аминогрупп получаем
\[ n_{\mathrm N}\leq3,\qquad n_{\mathrm C}\leq12. \]
Их сумма равна пятнадцати, поэтому оба верхних предела должны достигаться:
\[ n_{\mathrm C}=12,\qquad n_{\mathrm N}=3. \]
Оставшаяся масса приходится на водород:
\[ n_{\mathrm H} =\frac{255-12(12)-3(14)-3(16)}{1} =21. \]
Следовательно,
\[ \boxed{X=\ce{C12H21N3O3}}. \]
Проверка массовой доли кислорода:
\[ \frac{48}{255}\times100\%=18.82\%\approx18.8\%. \]
8.5 i
L-Лизин — это \((2S)\)-2,6-диаминогексановая кислота, N[C@@H](CCCCN)C(=O)O, с молекулярной формулой \(\ce{C6H14N2O2}\).
Поскольку C — структурный изомер лизина,
\[ \boxed{C=\ce{C6H14N2O2}}. \]
При конденсации одной молекулы C с одной молекулой лизина отщепляется одна молекула воды:
\[ \ce{C6H14N2O2 + C6H14N2O2 -> C12H26N4O3 + H2O}. \]
Следовательно,
\[ \boxed{D=\ce{C12H26N4O3}}. \]
Поскольку E теряет одну молекулу воды, образуя X,
\[ \ce{C12H23N3O4 -> C12H21N3O3 + H2O}, \]
то
\[ \boxed{E=\ce{C12H23N3O4}}. \]
Структуры со стереохимией, установленной в 8.6–8.7, приведены ниже. Эти записи SMILES представляют нейтральные формы свободных кислот.
| Соединение | Название | SMILES |
|---|---|---|
| C | \((2R,3R)\)-2,5-Диамино-3-метилпентановая кислота; 3-метил-D-орнитин | N[C@H]([C@H](C)CCN)C(=O)O |
| D | \(N^\varepsilon\)-[(2R,3R)-2,5-диамино-3-метилпентаноил]-L-лизин | N[C@@H](CCCCNC(=O)[C@H](N)[C@H](C)CCN)C(=O)O |
| E | \(N^\varepsilon\)-[(2R,3R)-2-амино-3-метил-5-оксопентаноил]-L-лизин | N[C@@H](CCCCNC(=O)[C@H](N)[C@H](C)CC=O)C(=O)O |
Их сокращённые структурные формулы:
\[ \begin{aligned} C:\;&\ce{HOOC-CH(NH2)-CH(CH3)-CH2-CH2-NH2},\\ D:\;&\ce{HOOC-CH(NH2)-(CH2)4-NH-C(=O)-CH(NH2)-CH(CH3)-CH2-CH2-NH2},\\ E:\;&\ce{HOOC-CH(NH2)-(CH2)4-NH-C(=O)-CH(NH2)-CH(CH3)-CH2-CHO}. \end{aligned} \]
Амидная связь в D соединяет карбоксильную группу C с ε-аминогруппой второй молекулы лизина.
8.5 ii
Концевая аминометильная группа в D превращается в альдегидную группу в E. Это окислительное дезаминирование.
При записи нейтральных молекулярных форм полуреакция окисления имеет вид
\[ \ce{C12H26N4O3 + H2O -> C12H23N3O4 + NH3 + 2 H+ + 2 e-}. \]
Здесь \(\ce{NH3}\) — аммиак, N. Акцептор электронов в условии не указан.
Затем сохранившаяся аминогруппа E внутримолекулярно атакует углерод его альдегидной группы. При конденсации отщепляется вода и образуется пятичленный иминный цикл X.
8.6
Положение 3 занимает насыщенный атом углерода цикла, от которого в двух направлениях идут разные последовательности атомов кольца. Метильный заместитель или заместитель R в этом положении сделал бы метиновый атом углерода стереогенным. Поскольку прямо указано, что положение 3 не является асимметрическим, обозначенный при нём заместитель должен быть H, что делает его метиленовой группой.
Оставшиеся заместители, Me и R, занимают положения 4 и 5.
Мысленно обратим последнюю стадию конденсации с образованием имина: иминный атом углерода в положении 2 превращается в альдегидную группу, а атом азота кольца — в аминогруппу, присоединённую к положению 5. Поскольку предшественник C — α-аминокислота, его карбонильная группа, происходящая из карбоксильной группы, должна быть непосредственно связана с этим атомом углерода, несущим аминогруппу. Следовательно, большой карбоксамидный заместитель находится в положении 5:
\[ \mathrm R=\ce{-C(=O)-NH-(CH2)4-CH(NH2)-COOH}. \]
Это карбоксамидный заместитель, происходящий из лизина; если обозначить место его присоединения к кольцу символом [*], его запись имеет вид [*]C(=O)NCCCC[C@H](N)C(=O)O. Его состав — \(\ce{C7H13N2O3}\), что соответствует приблизительно \(173\ \mathrm{g\,mol^{-1}}\) и согласуется с указанным условием для массы.
Следовательно,
\[ \boxed{3:\mathrm H,\qquad4:\mathrm{Me},\qquad5:\mathrm R}. \]
8.7
Для C искомая структура имеет вид
\[ \ce{HOOC-CH(NH2)-CH(CH3)-CH2-CH2-NH2}, \]
с конфигурациями \(\boxed{2R,3R}\).
Точное описание проекции Фишера: расположите карбоксильную группу сверху, а цепь \(\ce{CH2CH2NH2}\) снизу; поместите аминогруппу справа при C2 и метильную группу справа при C3, а водород — слева при обоих центрах. Стереохимическая запись SMILES: N[C@H]([C@H](C)CCN)C(=O)O.
Для X сохраните ориентацию пятичленного кольца, показанную в условии:
- Двойная связь соединяет N1 и C2.
- C3 — метиленовая группа.
- При C4 метильная группа расположена на штриховой связи, направленной от наблюдателя.
- При C5 заместитель R расположен на сплошном клине, направленном к наблюдателю.
- α-Атом углерода лизина сохраняет конфигурацию \(S\).
Приоритеты по правилам CIP определяют конфигурации атомов кольца:
| Центр | Приоритеты от высшего к низшему | Конфигурация |
|---|---|---|
| C4 кольца | Путь по кольцу через C5; путь по кольцу через C3; метил; H | \(R\) |
| C5 кольца | N кольца; карбонильный углерод R; C4 кольца; H | \(R\) |
| α-Атом углерода лизина | N аминогруппы; карбоксильный углерод; углерод боковой цепи; H | \(S\) |
Например, при C5 кольца карбонильный углерод имеет список сравнения \((\mathrm O,\mathrm O,\mathrm N)\), который имеет более высокий приоритет, чем список \((\mathrm C,\mathrm C,\mathrm H)\) для C4 кольца.
Таким образом, X — пирролизин, для которого
\[ \boxed{\text{лизин }\alpha:S;\qquad\text{кольцо }4:R;\qquad\text{кольцо }5:R}. \]
Его полная стереохимическая запись SMILES:
N[C@@H](CCCCNC(=O)[C@@H]1N=CC[C@H]1C)C(=O)O.
Клиновидные связи задают конфигурацию; они не требуют определённой фиксированной конформации кольца.
8.8
Числа функциональных групп в четырёх основаниях:
| Основание | Название и SMILES | Экзоциклические аминогруппы | Экзоциклические атомы кислорода |
|---|---|---|---|
| A | Аденин, Nc1ncnc2[nH]cnc12 |
1 | 0 |
| C | Цитозин, Nc1cc[nH]c(=O)n1 |
1 | 1 |
| G | Гуанин, Nc1nc2[nH]cnc2c(=O)[nH]1 |
1 | 1 |
| U | Урацил, O=c1cc[nH]c(=O)[nH]1 |
0 | 2 |
Пусть их числа в кодоне равны \(a,c,g,u\). Кодон содержит три основания:
\[ a+c+g+u=3. \]
Две аминогруппы дают
\[ a+c+g=2, \]
поэтому \(u=1\). Три атома кислорода дают
\[ c+g+2u=3, \]
откуда \(c+g=1\) и, следовательно, \(a=1\).
Заполненная таблица:
| Азотистое основание | 1 | 2 | 3 | 0 или 1 | 1 или 2 |
|---|---|---|---|---|---|
| A | ✓ | ||||
| C | ✓ | ||||
| G | ✓ | ||||
| U | ✓ |
Таким образом, кодон содержит одно A, одно U и либо одно C, либо одно G. Это определяет состав, но пока не порядок оснований.
8.9 a
Возможный кодон X должен содержать ровно основания AUC или AUG в некотором порядке. Проверка трёх рамок считывания показывает, что первые две не содержат полных кодонов ни с одним из этих составов. Третья рамка даёт
\[ 5'\ldots\mathrm{AA}\mid \mathrm{UAG}\mid \mathrm{AAU}\mid \mathrm{UAG}\mid \mathrm{CGG}\mid \mathrm{AAC}\mid \mathrm{AGA}\mid \mathrm{GGG}\mid \mathrm{UGA}\mid \mathrm C\ldots3'. \]
UAG встречается дважды, а UGA — один раз. Поскольку X кодируется только одним кодоном и во фрагменте присутствует более одного остатка X,
\[ \boxed{\text{кодон X}=\mathrm{UAG}}. \]
Имеется восемь полных кодонов. Начальные AA и конечное C относятся к неполным кодонам и не дают остатков, учитываемых в искомом числе.
Поскольку фрагмент принадлежит кодирующей последовательности фермента, последний полный кодон, UGA, в этом фрагменте, кодирующем фермент, считывается как селеноцистеин. Следовательно,
\[ \boxed{8\text{ аминокислотных остатков включается}}. \]
8.9 b
Результат трансляции:
| Полный кодон | Остаток |
|---|---|
| UAG | X, пирролизин |
| AAU | Asn |
| UAG | X, пирролизин |
| CGG | Arg |
| AAC | Asn |
| AGA | Arg |
| GGG | Gly |
| UGA | Sec |
Следовательно, от N-конца к C-концу,
\[ \boxed{\mathrm{X-Asn-X-Arg-Asn-Arg-Gly-Sec}}. \]
Дополнительные аминокислоты указаны ниже. Записи SMILES описывают их нейтральные свободные формы; при включении в белок образуются соответствующие пептидные остатки.
| Сокращение | Название | SMILES |
|---|---|---|
| Asn | L-Аспарагин | N[C@@H](CC(=O)N)C(=O)O |
| Arg | L-Аргинин | N[C@@H](CCCNC(=N)N)C(=O)O |
| Gly | Глицин | NCC(=O)O |
| Sec | L-Селеноцистеин с конфигурацией \(R\) при α-атоме углерода | N[C@@H](C[SeH])C(=O)O |
Заполните первые восемь клеток для ответа этой последовательностью и оставьте последние две пустыми.
Решение проверено по официальному решению.
IChO 2013 · مسألة نظرية 8
الحياة الفريدة للعتائق
العتائق (أو البكتيريا القديمة) كائنات حية دقيقة وحيدة الخلية. وهي تختلف اختلافًا كبيرًا عن البكتيريا وحقيقيات النوى على المستوى الجزيئي.
يُعد التفاعل الإنزيمي لميثيل أمين مع الماء مصدر الطاقة الرئيسي لبعض العتائق. في تجربة معينة، نُمّيت سلالة من العتائق عند pH 7 في ظروف لاهوائية (خالية من الأكسجين)، في وسط غذائي يحتوي على \(\ce{^{13}CH3NH2}\) بوصفه المصدر الوحيد للطاقة. وبعد فترة حضانة معينة، أُخذت عينة من الغاز الموجود فوق مزرعة العتائق وحُلّلت. وتبيّن أن الغاز يحتوي على مادتين، A وB، بنسبة مولية 1 : 3 على الترتيب (كثافة العينة بالنسبة إلى \(\ce{H2}\) تساوي 12.0).
8.1 احسب الكسرين الحجميين (بالنسبة المئوية) للمادتين A وB في المزيج.
8.2 حدّد A وB إذا كان الغاز المجمّع لا يحتوي على ذرات نيتروجين.
8.3 اكتب معادلة التفاعل الإنزيمي لميثيل أمين مع الماء الموصوف في التجربة أعلاه، مستخدمًا الصورة السائدة لكل نوع كيميائي.
توجد إنزيمات تحتوي على بقية الحمض الأميني α المرموز إليه بـ X في كثير من العتائق القادرة على الاستفادة من ميثيل أمين. ومن المعروف أن X:
- يتكوّن من ذرات 4 عناصر؛
- يحتوي على 18.8% كتليًا من الأكسجين؛
- له جزيء tRNA نوعي واحد خاص به، ويُدمج في بروتينات العتائق أثناء الترجمة.
حُدّد الحمض الأميني L-ليسين (انظر البنية في المخطط أدناه) بوصفه سلف X في العتائق. وتنشأ جميع ذرات الكربون والنيتروجين الموجودة في X من جزيئَي ليسين ابتدائيين. وأُدخلت أشكال مختلفة من L-ليسين الموسوم بالنظائر إلى نظام نموذجي لتوضيح مسارات التخليق الحيوي لـ X. وتُلخّص النتائج في الجدول.
| التركيب النظائري لـ L-ليسين | الكتلة المولية (مقرّبة إلى عدد صحيح) لبقية X، \(\ce{[RCH(NH2)CO]}\)، المرتبطة بـ tRNA، \((\mathrm{g\,mol^{-1}})\) |
|---|---|
| طبيعي | 238 |
| جميع ذرات الكربون \(\ce{^{13}C}\)، وجميع ذرات النيتروجين \(\ce{^{15}N}\) | 253 |
| مجموعة الأمينو ε موسومة بـ \(\ce{^{15}N}\) | 239 |
8.4 حدّد الصيغة الجزيئية لـ X.
يُخلّق X حيويًا في العتائق وفق المخطط الآتي (\(E_1\) و\(E_2\) و\(E_3\) إنزيمات):
في الخطوة الأولى، يتحوّل الليسين إلى متماكبه البنيوي (حمض أميني α، C)، بينما يحتوي D على رابطة ببتيدية، ويحتوي E على مجموعة فورميل \(\ce{-CHO}\). وجميع معاملات التفاعل في المخطط أعلاه تساوي 1.
8.5 i) أعطِ الصيغ الكيميائية لكل من C وD وE.
ii) من أنواع التفاعلات الواردة أدناه، اختر (بوضع علامة) نوعًا واحدًا فقط يوافق التفاعل الذي يحفّزه الإنزيم \(E_3\).
- ☐ نزع الأمين التأكسدي
- ☐ نزع الكربوكسيل
- ☐ نزع الأمين بين الجزيئات
- ☐ الهيدروكسلة
- ☐ التحلّل المائي للرابطة الببتيدية
يحتوي X على الجزء الآتي:
R مستبدَل ذو كتلة كبيرة (\(M>100\ \mathrm{g\,mol^{-1}}\)). ذرة الكربون الثالثة ليست غير متناظرة. وذرتا الكربون الرابعة والخامسة مركزان مولّدان للتصاوغ الفراغي. وترتبط جميع ذرات الكربون في الحلقة بذرة هيدروجين واحدة على الأقل. ويوجد كل مستبدَل (H وMe وR) مرة واحدة فقط.
8.6 حدّد مواضع المستبدَلات H وMe وR.
8.7 ارسم الصيغ البنيوية لـ C وX مع تفاصيل الكيمياء الفراغية. وعيّن كل مركز فراغي في X بالرمز \(R\) أو \(S\).
كودون واحد فقط مسؤول عن إدماج بقايا X في البروتينات لدى العتائق. وتحتوي القواعد النيتروجينية التي تكوّن هذا الكودون، في مجموعها، على مجموعتَي أمينو خارج الحلقة وثلاث ذرات أكسجين خارج الحلقة.
8.8 حدّد التركيب النيوكليوتيدي للكودون بملء الجدول أدناه. اكتب عدد كل قاعدة نيتروجينية في الكودون المشفّر لـ X. ضع علامة في خانة واحدة فقط في كل سطر.
عدد القواعد في الكودون
| القاعدة النيتروجينية | 1 | 2 | 3 | 0 أو 1 | 1 أو 2 |
|---|---|---|---|---|---|
| A | |||||
| C | |||||
| G | |||||
| U |
يحتوي مقطع التسلسل المشفّر من mRNA الوارد أدناه على الكودونات التي تشفّر إدماج بقية X في أحد إنزيمات العتائق:
\(5'\ldots\mathrm{AAUAGAAUUAGCGGAACAGAGGGUGAC}\ldots3'\)
8.9 a باستخدام جدول الشفرة الوراثية، حدّد عدد بقايا الأحماض الأمينية التي تُدمج في سلسلة الإنزيم نتيجة ترجمة هذا المقطع.
8.9 b اكتب تسلسل الأحماض الأمينية الناتج عن ترجمة هذا المقطع. لاحظ أن المقطع يحتوي على أكثر من بقية واحدة من X.
املأ الخانات أدناه باختصارات الأحماض الأمينية (من النهاية N إلى النهاية C).
لاحظ أن عدد الخانات أكبر من المطلوب. إذا وُجد أكثر من احتمال، فاكتبها جميعًا مفصولة بالرمز «/». وإذا توقفت الترجمة عند موضع معين، فاكتب «STOP» واترك جميع الخانات الواقعة إلى يمينه فارغة.
(a) كودونات RNA للأحماض الأمينية العشرين
القاعدة الثانية
| القاعدة الأولى | U | C | A | G | القاعدة الثالثة |
|---|---|---|---|---|---|
| U | Phe | Ser | Tyr | Cys | U |
| U | Phe | Ser | Tyr | Cys | C |
| U | Leu | Ser | STOP | STOP | A |
| U | Leu | Ser | STOP | Trp | G |
| C | Leu | Pro | His | Arg | U |
| C | Leu | Pro | His | Arg | C |
| C | Leu | Pro | Gln | Arg | A |
| C | Leu | Pro | Gln | Arg | G |
| A | Ile | Thr | Asn | Ser | U |
| A | Ile | Thr | Asn | Ser | C |
| A | Ile | Thr | Lys | Arg | A |
| A | Met (بدء) | Thr | Lys | Arg | G |
| G | Val | Ala | Asp | Gly | U |
| G | Val | Ala | Asp | Gly | C |
| G | Val | Ala | Glu | Gly | A |
| G | Val | Ala | Glu | Gly | G |
| اختصارات الأحماض الأمينية: |
|---|
| Ala = ألانين |
| Arg = أرجينين |
| Asp = حمض الأسبارتيك |
| Asn = أسباراجين |
| Cys = سيستئين |
| Glu = حمض الغلوتاميك |
| Gln = غلوتامين |
| Gly = غليسين |
| His = هيستيدين |
| Ile = آيزوليوسين |
| Leu = ليوسين |
| Lys = ليسين |
| Met = ميثيونين |
| Phe = فينيل ألانين |
| Pro = برولين |
| Ser = سيرين |
| Thr = ثريونين |
| Trp = تريبتوفان |
| Tyr = تيروزين |
| Val = فالين |
نص المسألة مترجم عن النص الإنجليزي الرسمي.
الإجابات
-
8.1: \(A=25\%\)، \(B=75\%\) حجميًا.
-
8.2: A هو ثاني أكسيد الكربون-\(^{13}\mathrm C\)، \(\ce{^{13}CO2}\)،
O=[13C]=O؛ وB هو الميثان-\(^{13}\mathrm C\)، \(\ce{^{13}CH4}\)،[13CH4]. -
8.3: \[ \boxed{\ce{4 ^{13}CH3NH3+ + 3 H2O -> 3 ^{13}CH4 + H^{13}CO3- + 4 NH4+ + H+}} \]
-
8.4: \(\boxed{\ce{C12H21N3O3}}\). X هو بيروليسين،
N[C@@H](CCCCNC(=O)[C@@H]1N=CC[C@H]1C)C(=O)O. -
8.5 i: \(\boxed{\mathbf C:\ce{C6H14N2O2};\quad \mathbf D:\ce{C12H26N4O3};\quad \mathbf E:\ce{C12H23N3O4}}\). ترد أسماؤها وتمثيلاتها البنيوية بصيغة SMILES في الحل.
-
8.5 ii: نزع الأمين التأكسدي.
-
8.6: \(\boxed{3:\mathrm H;\quad4:\mathrm{Me};\quad5:\mathrm R}\).
-
8.7: C هو حمض \((2R,3R)\)-2,5-ثنائي أمينو-3-ميثيل البنتانويك،
N[C@H]([C@H](C)CCN)C(=O)O. يحتوي X على ثلاثة مراكز فراغية: ذرة الكربون α في الليسين ذات التشكيل \(S\)، والموضعان 4 و5 في الحلقة كلاهما ذو التشكيل \(R\). -
8.8: ضع علامة عند 1 لـ A، و0 أو 1 لـ C، و0 أو 1 لـ G، و1 لـ U. توجد واحدة فقط من القاعدتين C وG.
-
8.9 a: \(\boxed{8\text{ بقايا أحماض أمينية}}\)، بقراءة UGA بوصفه سيلينوسيستئين في هذا المقطع المشفّر للإنزيم.
-
8.9 b: من النهاية N إلى النهاية C: \[ \boxed{\mathrm{X-Asn-X-Arg-Asn-Arg-Gly-Sec}} \] هنا X هو بيروليسين وSec هو سيلينوسيستئين. املأ ثماني خانات واترك الخانتين المتبقيتين فارغتين.
الحل
8.1
عند ثبوت درجة الحرارة والضغط، تتناسب أحجام الغازات طرديًا مع كمياتها بالمول. ومن ثم
\[ \phi_A=\frac{1}{1+3}\times100\%=25\%, \qquad \phi_B=\frac{3}{1+3}\times100\%=75\%. \]
8.2
الغاز المرجعي هو ثنائي الهيدروجين، \(\ce{H2}\)، [H][H]. وباستخدام الكتل الذرية الصحيحة الملائمة للمعطيات المقدّمة،
\[ \overline M =D_{\ce{H2}}M_{\ce{H2}} =12.0\times2.00 =24.0\ \mathrm{g\,mol^{-1}}. \]
بما أن \(n_A:n_B=1:3\)،
\[ \frac{M_A+3M_B}{4}=24.0\ \mathrm{g\,mol^{-1}}. \]
الركيزة هي ميثيل أمين-\(^{13}\mathrm C\)، [13CH3]N. وحالة أكسدة الكربون فيه هي \(-2\). ويمكن لتفاعل عدم التناسب أن يؤكسد ذرة كربون واحدة إلى \(+4\) في ثاني أكسيد الكربون، ويختزل ثلاث ذرات كربون إلى \(-4\) في الميثان: تطلق الأولى ستة إلكترونات، بينما تستهلك كل واحدة من الذرات الثلاث الأخرى إلكترونين.
بالنسبة إلى النواتج الموسومة،
\[ M(\ce{^{13}CO2})=13+2(16)=45\ \mathrm{g\,mol^{-1}}, \] \[ M(\ce{^{13}CH4})=13+4(1)=17\ \mathrm{g\,mol^{-1}}. \]
ومتوسط كتلتيهما الموليتين هو
\[ \frac{45+3(17)}4=24.0\ \mathrm{g\,mol^{-1}}, \]
وهو ما يتوافق مع الكثافة المقيسة. لذلك فإن A هو ثاني أكسيد الكربون الموسوم، وB هو الميثان الموسوم، وقد ورد تحديدهما وتمثيلهما بصيغة SMILES أعلاه.
8.3
عند pH 7، تكون الصور السائدة في المحلول المائي هي ميثيل أمونيوم بدلًا من ميثيل أمين، والأمونيوم بدلًا من الأمونيا، وهيدروجين كربونات بدلًا من ثاني أكسيد الكربون المذاب.
الأنواع الكيميائية الإضافية في المعادلة هي:
| النوع الكيميائي | الاسم | SMILES |
|---|---|---|
| \(\ce{^{13}CH3NH3+}\) | ميثيل أمونيوم-\(^{13}\mathrm C\) | [13CH3][NH3+] |
| \(\ce{H2O}\) | ماء | O |
| \(\ce{H^{13}CO3-}\) | هيدروجين كربونات-\(^{13}\mathrm C\) | O[13C](=O)[O-] |
| \(\ce{NH4+}\) | أمونيوم | [NH4+] |
| \(\ce{H+}\) | أيون الهيدروجين، الذي يمثّل اصطلاحًا بروتونًا مُذابًا | [H+] |
المعادلة الموزونة هي
\[ \boxed{\ce{4 ^{13}CH3NH3+ + 3 H2O -> 3 ^{13}CH4 + H^{13}CO3- + 4 NH4+ + H+}}. \]
يحتوي كلا الطرفين على أربع ذرات كربون وثلاثين ذرة هيدروجين وأربع ذرات نيتروجين وثلاث ذرات أكسجين؛ وتبلغ الشحنة الكلية لكل طرف \(+4\).
يبقى الناتج الغازي المؤكسَد هو ثاني أكسيد الكربون. وعلاقته بالصورة المذابة السائدة هي
\[ \ce{^{13}CO2 + H2O <=> H^{13}CO3- + H+}. \]
8.4
البقية المحدّدة المرتبطة بـ tRNA هي مجموعة الأسيل \(\ce{RCH(NH2)CO}\). وتستلزم استعادة الحمض الأميني الحر إضافة مجموعة OH، التي تبلغ كتلتها المولية \(17\ \mathrm{g\,mol^{-1}}\). ومن ثم
\[ M_X=238+17=255\ \mathrm{g\,mol^{-1}}. \]
يحتوي الحمض الأميني α أصلًا على C وH وN وO، لذا فهذه هي عناصره الأربعة. وعدد ذرات الأكسجين فيه هو
\[ n_{\mathrm O} =\frac{0.188(255)}{16} =2.996\approx3. \]
كل استبدال لـ \(\ce{^{12}C}\) بـ \(\ce{^{13}C}\)، أو لـ \(\ce{^{14}N}\) بـ \(\ce{^{15}N}\)، يزيد الكتلة المولية المقرّبة بمقدار \(1\ \mathrm{g\,mol^{-1}}\). ومن ثم
\[ n_{\mathrm C}+n_{\mathrm N}=253-238=15. \]
يوفّر جزيئا الليسين اثنتي عشرة ذرة كربون وأربع ذرات نيتروجين على الأكثر. ويزيد الوسم الانتقائي لكلتا مجموعتَي الأمينو ε الابتدائيتين كتلة الناتج بمقدار وحدة واحدة فقط، لذا تُحتفَظ بذرة واحدة فقط من ذرتَي النيتروجين هاتين. وبإضافة ذرتَي نيتروجين مجموعتَي الأمينو α اللتين يمكن الاحتفاظ بهما، نحصل على
\[ n_{\mathrm N}\leq3,\qquad n_{\mathrm C}\leq12. \]
مجموعهما خمسة عشر، لذا لا بد من بلوغ الحدّين الأعلى كليهما:
\[ n_{\mathrm C}=12,\qquad n_{\mathrm N}=3. \]
الكتلة المتبقية تعود إلى الهيدروجين:
\[ n_{\mathrm H} =\frac{255-12(12)-3(14)-3(16)}{1} =21. \]
وعليه
\[ \boxed{X=\ce{C12H21N3O3}}. \]
وتتوافق النسبة المئوية للأكسجين مع المعطى:
\[ \frac{48}{255}\times100\%=18.82\%\approx18.8\%. \]
8.5 i
L-ليسين هو حمض \((2S)\)-2,6-ثنائي أمينو الهكسانويك، N[C@@H](CCCCN)C(=O)O، وصيغته الجزيئية \(\ce{C6H14N2O2}\).
بما أن C متماكب بنيوي لليسين،
\[ \boxed{C=\ce{C6H14N2O2}}. \]
يؤدي تكاثف جزيء واحد من C مع جزيء ليسين واحد إلى فقدان جزيء ماء واحد:
\[ \ce{C6H14N2O2 + C6H14N2O2 -> C12H26N4O3 + H2O}. \]
وعليه
\[ \boxed{D=\ce{C12H26N4O3}}. \]
بما أن E يفقد جزيء ماء واحدًا لإنتاج X،
\[ \ce{C12H23N3O4 -> C12H21N3O3 + H2O}, \]
فإن
\[ \boxed{E=\ce{C12H23N3O4}}. \]
ترد البنى فيما يلي، مع الكيمياء الفراغية التي تُحدَّد في 8.6–8.7. وتمثّل صيغ SMILES هذه صور الأحماض الحرة المتعادلة.
| المركّب | الاسم | SMILES |
|---|---|---|
| C | حمض \((2R,3R)\)-2,5-ثنائي أمينو-3-ميثيل البنتانويك؛ 3-ميثيل-D-أورنيثين | N[C@H]([C@H](C)CCN)C(=O)O |
| D | \(N^\varepsilon\)-[(2R,3R)-2,5-ثنائي أمينو-3-ميثيل بنتانويل]-L-ليسين | N[C@@H](CCCCNC(=O)[C@H](N)[C@H](C)CCN)C(=O)O |
| E | \(N^\varepsilon\)-[(2R,3R)-2-أمينو-3-ميثيل-5-أوكسوبنتانويل]-L-ليسين | N[C@@H](CCCCNC(=O)[C@H](N)[C@H](C)CC=O)C(=O)O |
وصيغها البنائية المكثفة هي
\[ \begin{aligned} C:\;&\ce{HOOC-CH(NH2)-CH(CH3)-CH2-CH2-NH2},\\ D:\;&\ce{HOOC-CH(NH2)-(CH2)4-NH-C(=O)-CH(NH2)-CH(CH3)-CH2-CH2-NH2},\\ E:\;&\ce{HOOC-CH(NH2)-(CH2)4-NH-C(=O)-CH(NH2)-CH(CH3)-CH2-CHO}. \end{aligned} \]
تصل الرابطة الأميدية في D مجموعة الكربوكسيل في C بمجموعة الأمينو ε في جزيء الليسين الثاني.
8.5 ii
تتحوّل مجموعة الأمينوميثيل الطرفية في D إلى مجموعة الألدهيد في E. وهذا هو نزع الأمين التأكسدي.
بكتابة الصور الجزيئية المتعادلة، يكون نصف تفاعل الأكسدة كما يلي
\[ \ce{C12H26N4O3 + H2O -> C12H23N3O4 + NH3 + 2 H+ + 2 e-}. \]
هنا \(\ce{NH3}\) هي الأمونيا، N. ولم يُحدَّد متقبّل الإلكترونات في المسألة.
تهاجم مجموعة الأمينو المحتفَظ بها في E بعد ذلك ذرة كربون الألدهيد داخل الجزيء نفسه. ويؤدي التكاثف إلى فقدان الماء وتكوين حلقة الإيمين الخماسية في X.
8.6
الموضع 3 هو ذرة كربون حلقية مشبعة يتفرّع منها مساران مختلفان عبر الحلقة. ومن شأن وجود مستبدَل ميثيل أو R فيها أن يجعلها ذرة كربون ميثينية مولّدة للتصاوغ الفراغي. وبما أن النص ينفي صراحةً عدم التناظر عن الموضع 3، فلا بد أن يكون المستبدَل المشار إليه فيه هو H، مما يجعله مجموعة ميثيلين.
يشغل المستبدَلان المتبقيان، Me وR، الموضعين 4 و5.
لنعكس ذهنيًا تفاعل التكاثف النهائي المكوّن للإيمين: تتحوّل ذرة كربون الإيمين في الموضع 2 إلى مجموعة ألدهيد، بينما يتحوّل نيتروجين الحلقة إلى مجموعة أمينو مرتبطة بالموضع 5. وبما أن السلف C هو حمض أميني α، فلا بد أن ترتبط مجموعة الكربونيل المشتقة من مجموعة الكربوكسيل فيه مباشرةً بذرة الكربون الحاملة لمجموعة الأمينو. ومن ثم يكون مستبدَل الكربوكساميد الكبير في الموضع 5:
\[ \mathrm R=\ce{-C(=O)-NH-(CH2)4-CH(NH2)-COOH}. \]
هذا هو مستبدَل الكربوكساميد المشتق من الليسين، ويُمثَّل، مع الإشارة إلى موضع ارتباطه بالحلقة بالرمز [*]، بالصيغة [*]C(=O)NCCCC[C@H](N)C(=O)O. وتركيبه هو \(\ce{C7H13N2O3}\)، وهو ما يقابل كتلة مولية تقارب \(173\ \mathrm{g\,mol^{-1}}\)، بما يتوافق مع شرط الكتلة المذكور.
وبناءً على ذلك،
\[ \boxed{3:\mathrm H,\qquad4:\mathrm{Me},\qquad5:\mathrm R}. \]
8.7
بالنسبة إلى C، البنية المطلوبة هي
\[ \ce{HOOC-CH(NH2)-CH(CH3)-CH2-CH2-NH2}, \]
بالتشكيلين \(\boxed{2R,3R}\).
الوصف الدقيق لإسقاط فيشر هو: ضع مجموعة الكربوكسيل في الأعلى والسلسلة \(\ce{CH2CH2NH2}\) في الأسفل؛ وضع مجموعة الأمينو على اليمين عند C2 ومجموعة الميثيل على اليمين عند C3، مع وضع الهيدروجين على اليسار عند كلا المركزين. وتمثيله بصيغة SMILES التي تبيّن الكيمياء الفراغية هو N[C@H]([C@H](C)CCN)C(=O)O.
بالنسبة إلى X، احتفظ باتجاه الحلقة الخماسية الموضّح في السؤال:
- تصل الرابطة المزدوجة بين N1 وC2.
- C3 مجموعة ميثيلين.
- تحمل C4 مجموعة ميثيل على الرابطة المتقطّعة، متجهةً بعيدًا عن الناظر.
- تحمل C5 المستبدَل R على الإسفين الممتلئ، متجهًا نحو الناظر.
- تحتفظ ذرة الكربون α في الليسين بتشكيلها \(S\).
تحدّد أولويات CIP التشكيلات في الحلقة:
| المركز | الأولويات، من الأعلى إلى الأدنى | التشكيل |
|---|---|---|
| C4 في الحلقة | مسار الحلقة عبر C5؛ مسار الحلقة عبر C3؛ ميثيل؛ H | \(R\) |
| C5 في الحلقة | N في الحلقة؛ كربون الكربونيل في R؛ C4 في الحلقة؛ H | \(R\) |
| كربون α في الليسين | N في الأمينو؛ كربون الكربوكسيل؛ كربون السلسلة الجانبية؛ H | \(S\) |
فعلى سبيل المثال، عند C5 في الحلقة، تكون قائمة المقارنة لكربون الكربونيل هي \((\mathrm O,\mathrm O,\mathrm N)\)، وهي أعلى أولويةً من قائمة C4 في الحلقة، \((\mathrm C,\mathrm C,\mathrm H)\).
إذن X هو بيروليسين، وله
\[ \boxed{\text{ليسين }\alpha:S;\qquad\text{الحلقة }4:R;\qquad\text{الحلقة }5:R}. \]
وتمثيله الكامل بصيغة SMILES التي تبيّن الكيمياء الفراغية هو
N[C@@H](CCCCNC(=O)[C@@H]1N=CC[C@H]1C)C(=O)O.
تحدّد الروابط الإسفينية التشكيل؛ ولا تشترط هيئة توافقية ثابتة بعينها للحلقة.
8.8
أعداد المجموعات الوظيفية في القواعد الأربع هي:
| القاعدة | الاسم وصيغة SMILES | مجموعات الأمينو خارج الحلقة | ذرات الأكسجين خارج الحلقة |
|---|---|---|---|
| A | أدينين، Nc1ncnc2[nH]cnc12 |
1 | 0 |
| C | سيتوسين، Nc1cc[nH]c(=O)n1 |
1 | 1 |
| G | غوانين، Nc1nc2[nH]cnc2c(=O)[nH]1 |
1 | 1 |
| U | يوراسيل، O=c1cc[nH]c(=O)[nH]1 |
0 | 2 |
لتكن أعدادها في الكودون \(a,c,g,u\). يحتوي الكودون على ثلاث قواعد:
\[ a+c+g+u=3. \]
تعطي مجموعتا الأمينو
\[ a+c+g=2, \]
ومن ثم \(u=1\). وتعطي ذرات الأكسجين الثلاث
\[ c+g+2u=3, \]
وعليه \(c+g=1\)، وبالتالي \(a=1\).
الجدول المكتمل هو
| القاعدة النيتروجينية | 1 | 2 | 3 | 0 أو 1 | 1 أو 2 |
|---|---|---|---|---|---|
| A | ✓ | ||||
| C | ✓ | ||||
| G | ✓ | ||||
| U | ✓ |
إذن يحتوي الكودون على قاعدة A واحدة وقاعدة U واحدة، وإما قاعدة C واحدة أو قاعدة G واحدة. وهذا يحدّد التركيب، لكنه لا يحدّد الترتيب بعد.
8.9 a
يجب أن يحتوي أي كودون مرشّح لتشفير X على القواعد AUC أو AUG تحديدًا، بترتيب ما. وعند فحص أطر القراءة الثلاثة، نجد أن الإطارين الأولين لا يحتويان على أي كودون كامل له أيٌّ من هذين التركيبين. ويعطي الإطار الثالث
\[ 5'\ldots\mathrm{AA}\mid \mathrm{UAG}\mid \mathrm{AAU}\mid \mathrm{UAG}\mid \mathrm{CGG}\mid \mathrm{AAC}\mid \mathrm{AGA}\mid \mathrm{GGG}\mid \mathrm{UGA}\mid \mathrm C\ldots3'. \]
يتكرر UAG مرتين، بينما يرد UGA مرة واحدة. وبما أن كودونًا واحدًا فقط يشفّر X، وأن المقطع يحتوي على أكثر من بقية واحدة من X،
\[ \boxed{\text{كودون X}=\mathrm{UAG}}. \]
توجد ثمانية كودونات كاملة. أما AA في البداية وC في النهاية فهما جزءان من كودونين غير مكتملين، ولا يسهمان بأي بقايا في العدد المطلوب.
بما أن المقطع ينتمي إلى التسلسل المشفّر للإنزيم، فإن الكودون الكامل الأخير، UGA، يُقرأ بوصفه سيلينوسيستئين في هذا المقطع المشفّر للإنزيم. وعليه
\[ \boxed{8\text{ بقايا أحماض أمينية تُدمج}}. \]
8.9 b
الترجمة هي
| الكودون الكامل | البقية |
|---|---|
| UAG | X، بيروليسين |
| AAU | Asn |
| UAG | X، بيروليسين |
| CGG | Arg |
| AAC | Asn |
| AGA | Arg |
| GGG | Gly |
| UGA | Sec |
ومن ثم، من النهاية N إلى النهاية C،
\[ \boxed{\mathrm{X-Asn-X-Arg-Asn-Arg-Gly-Sec}}. \]
تُحدَّد الأحماض الأمينية الإضافية أدناه. تصف صيغ SMILES أحماضها الأمينية الحرة المتعادلة؛ ويؤدي إدماجها في البروتين إلى تكوين البقايا الببتيدية المقابلة.
| الاختصار | الاسم | SMILES |
|---|---|---|
| Asn | L-أسباراجين | N[C@@H](CC(=O)N)C(=O)O |
| Arg | L-أرجينين | N[C@@H](CCCNC(=N)N)C(=O)O |
| Gly | غليسين | NCC(=O)O |
| Sec | L-سيلينوسيستئين، ذو التشكيل \(R\) عند ذرة الكربون α فيه | N[C@@H](C[SeH])C(=O)O |
املأ خانات الإجابة الثماني الأولى بهذا التسلسل واترك الخانتين الأخيرتين فارغتين.
تمت مراجعة الحل بمقارنته بالحل الرسمي.