IChO 2005 · Theory problem 8
Protein Folding
Most proteins exist usually only in two forms, the native form (N) and the unfolded form (U) when they are thermally or chemically denatured, without appreciable concentrations of other stable intermediates in equilibrium with the native and unfolded forms. For these proteins, the folding-unfolding equilibrium can be described by the following simple chemical equation:
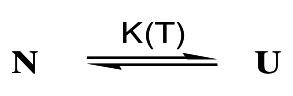
where N and U denote the folded state (native state) and the unfolded state (denatured state) of the protein, respectively. \(K(T)\) is the equilibrium constant for the process at absolute temperature \(T\).
8.1 What is the equilibrium constant for the process when the native and denatured states are present in equal proportions at equilibrium?
8.2 What is the standard free energy change of the process \((\Delta G^\circ(T))\) when the native and denatured states are present in equal proportions at equilibrium? Express your answer in SI units.
8.3 If \((C_{\mathrm N})_{\mathrm{eq}}\) and \((C_{\mathrm U})_{\mathrm{eq}}\) denote the equilibrium concentrations of \(N\) and \(U\) in solution, respectively, and \(C\) is the total concentration of the protein, the fraction of the total protein that is unfolded under the equilibrium condition is given by \(f_{\mathrm U}=(C_{\mathrm U})_{\mathrm{eq}}/C\). Deduce an expression for \(f_{\mathrm U}\) in terms of the equilibrium constant \(K\). Show all work on the answer sheet.
When a protein is denatured by increasing the temperature of the solution, the fraction of the unfolded protein increases with temperature, as shown in the following Figure.
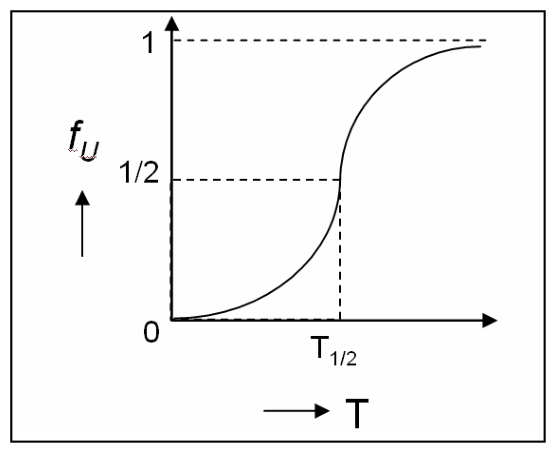
The mid-point of the denaturation curve is given by \(f_{\mathrm U}=\tfrac12\) and \(T=T_{1/2}\). The latter is often referred to as the denaturation temperature. At temperatures higher than \(T_{1/2}\), \(f_{\mathrm U}\) increases above \(\tfrac12\), but at temperatures lower than \(T_{1/2}\), \(f_{\mathrm U}\) decreases below \(\tfrac12\).
8.4 What is the sign of \(\Delta G^\circ(T)\) at temperatures below and above \(T_{1/2}\)? Select your answer from the following choices.
a) Negative both below and above \(T_{1/2}\).
b) Positive both below and above \(T_{1/2}\).
c) Positive below \(T_{1/2}\), but negative above \(T_{1/2}\).
d) Negative below \(T_{1/2}\), but positive above \(T_{1/2}\)..
8.5 How does the standard Gibbs free energy change for the process vary when the temperature (i) increases above \(T_{1/2}\) and (ii) decreases below \(T_{1/2}\)? Select your answer from the following choices.
a) Decrease in both cases.
b) Increase in both cases.
c) Increases above \(T_{1/2}\), but decreases below \(T_{1/2}\).
d) Decreases above \(T_{1/2}\), but increases below \(T_{1/2}\).
The kinetics of unfolding and refolding of a protein has recently become an intense area of study. We could rewrite the chemical equation for the process as follows:
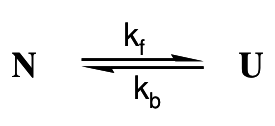
where \(k_f\) and \(k_b\) denote the forward and backward reaction rate constants, respectively., assuming that both the forward and reverse processes are elementary steps that follow first-order kinetics.
8.6 For the simple chemical equation and elementary kinetic steps used to describe the protein folding-unfolding process outlined above, what is the relationship between equilibrium constant \(K\) and the rate constants \(k_f\) and \(k_b\)?
8.7 Derive a rate law for the overall process, that is \(\mathrm dC_{\mathrm U}/\mathrm dt\) in terms of only rate constants, \(C_{\mathrm U}\) and \((C_{\mathrm U})_{\mathrm{eq}}\).
Official English text of the problem.
Answers
- 8.1: \(\boxed{K=1}\), dimensionless.
- 8.2: \(\boxed{\Delta G^\circ(T)=0\ \mathrm{J\,mol^{-1}}}\).
- 8.3: \(\boxed{f_{\mathrm U}=\dfrac{K}{1+K}}\).
- 8.4: (c) — positive below \(T_{1/2}\), negative above \(T_{1/2}\).
- 8.5: (d) — relative to its value at \(T_{1/2}\), \(\Delta G^\circ\) decreases on heating above the midpoint and increases on cooling below it.
- 8.6: \(\boxed{K=\dfrac{k_f}{k_b}}\).
- 8.7: \(\boxed{\dfrac{\mathrm dC_{\mathrm U}}{\mathrm dt}=(k_f+k_b)\big[(C_{\mathrm U})_{\mathrm{eq}}-C_{\mathrm U}\big]}\).
Solution
Throughout, the forward process is unfolding, \(\ce{N -> U}\). The labels denote the native and unfolded conformations of the same protein. Its molecular structure is unspecified, so no unique SMILES can be assigned; ordinary SMILES also does not describe the folding conformation.
8.1
For the two-state equilibrium \(\ce{N <=> U}\), the equilibrium constant in the concentration model used here is
\[ K(T)=\frac{(C_{\mathrm U})_{\mathrm{eq}}} {(C_{\mathrm N})_{\mathrm{eq}}}. \]
Equal proportions mean equal concentrations, giving
\[ \boxed{K(T)=1}. \]
The ratio, and hence \(K\), is dimensionless.
8.2
The standard reaction Gibbs energy and equilibrium constant satisfy
\[ \Delta G^\circ(T)=-RT\ln K(T). \]
Using \(K=1\),
\[ \boxed{\Delta G^\circ(T)=-RT\ln 1 =0\ \mathrm{J\,mol^{-1}}}. \]
8.3
Conservation of the total protein concentration gives
\[ C=(C_{\mathrm N})_{\mathrm{eq}}+(C_{\mathrm U})_{\mathrm{eq}}. \]
Since
\[ (C_{\mathrm U})_{\mathrm{eq}} =K(C_{\mathrm N})_{\mathrm{eq}}, \]
the unfolded fraction is
\[ \begin{aligned} f_{\mathrm U} &=\frac{(C_{\mathrm U})_{\mathrm{eq}}} {(C_{\mathrm N})_{\mathrm{eq}}+(C_{\mathrm U})_{\mathrm{eq}}}\\ &=\frac{K(C_{\mathrm N})_{\mathrm{eq}}} {(1+K)(C_{\mathrm N})_{\mathrm{eq}}}\\ &=\boxed{\frac{K}{1+K}}. \end{aligned} \]
Equivalently,
\[ K=\frac{f_{\mathrm U}}{1-f_{\mathrm U}}. \]
8.4
Below the denaturation midpoint,
\[ f_{\mathrm U}<\frac12 \quad\Longrightarrow\quad K=\frac{f_{\mathrm U}}{1-f_{\mathrm U}}<1. \]
Thus \(\ln K<0\), and because \(R,T>0\),
\[ \Delta G^\circ(T)=-RT\ln K>0. \]
Above the midpoint,
\[ f_{\mathrm U}>\frac12 \quad\Longrightarrow\quad K>1 \quad\Longrightarrow\quad \Delta G^\circ(T)<0. \]
Therefore the answer is (c):
\[ \boxed{ \begin{cases} \Delta G^\circ(T)>0,&T<T_{1/2},\\ \Delta G^\circ(T)=0,&T=T_{1/2},\\ \Delta G^\circ(T)<0,&T>T_{1/2}. \end{cases}} \]
8.5
At \(T_{1/2}\), equal populations give \(K=1\) and \(\Delta G^\circ=0\).
(i) Heating above \(T_{1/2}\) increases the unfolded fraction, giving \(K>1\). Consequently, \(\Delta G^\circ=-RT\ln K\) becomes negative: it decreases from its midpoint value.
(ii) Cooling below \(T_{1/2}\) decreases the unfolded fraction, giving \(K<1\). Consequently, \(\Delta G^\circ\) becomes positive: it increases from its midpoint value.
Thus the intended choice is
\[ \boxed{\text{(d)}}. \]
8.6
The first-order forward and backward reaction rates are
\[ r_f=k_fC_{\mathrm N}, \qquad r_b=k_bC_{\mathrm U}. \]
At equilibrium these rates are equal:
\[ k_f(C_{\mathrm N})_{\mathrm{eq}} =k_b(C_{\mathrm U})_{\mathrm{eq}}. \]
Rearranging,
\[ \boxed{ K=\frac{(C_{\mathrm U})_{\mathrm{eq}}} {(C_{\mathrm N})_{\mathrm{eq}}} =\frac{k_f}{k_b}}. \]
Both first-order rate constants have SI units \(\mathrm{s^{-1}}\), so their ratio is dimensionless.
8.7
At fixed temperature, the net rate of formation of unfolded protein is
\[ \frac{\mathrm dC_{\mathrm U}}{\mathrm dt} =k_fC_{\mathrm N}-k_bC_{\mathrm U}. \]
The total protein concentration is conserved:
\[ C_{\mathrm N}+C_{\mathrm U}=C. \]
Substituting \(C_{\mathrm N}=C-C_{\mathrm U}\),
\[ \frac{\mathrm dC_{\mathrm U}}{\mathrm dt} =k_fC-(k_f+k_b)C_{\mathrm U}. \]
At equilibrium, the derivative vanishes, so
\[ k_fC=(k_f+k_b)(C_{\mathrm U})_{\mathrm{eq}}. \]
Eliminating \(C\) yields the requested rate law:
\[ \boxed{ \frac{\mathrm dC_{\mathrm U}}{\mathrm dt} =(k_f+k_b)\left[(C_{\mathrm U})_{\mathrm{eq}}-C_{\mathrm U}\right]}. \]
This correctly predicts an increase in \(C_{\mathrm U}\) when it is below equilibrium and a decrease when it is above equilibrium. With concentrations in \(\mathrm{mol\,m^{-3}}\), the rate has units \(\mathrm{mol\,m^{-3}\,s^{-1}}\).
The solution was checked against the official solution.
IChO 2005 · Theorieaufgabe 8
Proteinfaltung
Die meisten Proteine liegen gewöhnlich nur in zwei Formen vor, der nativen Form (N) und der entfalteten Form (U), wenn sie thermisch oder chemisch denaturiert werden, ohne dass andere stabile Zwischenzustände in nennenswerten Konzentrationen im Gleichgewicht mit der nativen und der entfalteten Form vorliegen. Für diese Proteine lässt sich das Faltungs-Entfaltungs-Gleichgewicht durch die folgende einfache chemische Gleichung beschreiben:
Dabei bezeichnen N und U den gefalteten Zustand (nativen Zustand) bzw. den entfalteten Zustand (denaturierten Zustand) des Proteins. \(K(T)\) ist die Gleichgewichtskonstante des Vorgangs bei der absoluten Temperatur \(T\).
8.1 Wie groß ist die Gleichgewichtskonstante des Vorgangs, wenn der native und der denaturierte Zustand im Gleichgewicht zu gleichen Anteilen vorliegen?
8.2 Wie groß ist die Änderung der freien Standardenthalpie des Vorgangs \((\Delta G^\circ(T))\), wenn der native und der denaturierte Zustand im Gleichgewicht zu gleichen Anteilen vorliegen? Geben Sie Ihre Antwort in SI-Einheiten an.
8.3 Wenn \((C_{\mathrm N})_{\mathrm{eq}}\) und \((C_{\mathrm U})_{\mathrm{eq}}\) die Gleichgewichtskonzentrationen von \(N\) bzw. \(U\) in Lösung bezeichnen und \(C\) die Gesamtkonzentration des Proteins ist, ist der Anteil des gesamten Proteins, der unter Gleichgewichtsbedingungen entfaltet vorliegt, durch \(f_{\mathrm U}=(C_{\mathrm U})_{\mathrm{eq}}/C\) gegeben. Leiten Sie einen Ausdruck für \(f_{\mathrm U}\) in Abhängigkeit von der Gleichgewichtskonstante \(K\) her. Geben Sie den vollständigen Rechenweg auf dem Antwortbogen an.
Wird ein Protein durch Erhöhung der Temperatur der Lösung denaturiert, nimmt der Anteil des entfalteten Proteins mit der Temperatur zu, wie in der folgenden Abbildung dargestellt.
Der Mittelpunkt der Denaturierungskurve ist durch \(f_{\mathrm U}=\tfrac12\) und \(T=T_{1/2}\) gegeben. Letztere wird häufig als Denaturierungstemperatur bezeichnet. Bei Temperaturen oberhalb von \(T_{1/2}\) steigt \(f_{\mathrm U}\) über \(\tfrac12\), während \(f_{\mathrm U}\) bei Temperaturen unterhalb von \(T_{1/2}\) unter \(\tfrac12\) sinkt.
8.4 Welches Vorzeichen hat \(\Delta G^\circ(T)\) bei Temperaturen unterhalb und oberhalb von \(T_{1/2}\)? Wählen Sie Ihre Antwort aus den folgenden Möglichkeiten aus.
a) Negativ sowohl unterhalb als auch oberhalb von \(T_{1/2}\).
b) Positiv sowohl unterhalb als auch oberhalb von \(T_{1/2}\).
c) Positiv unterhalb von \(T_{1/2}\), aber negativ oberhalb von \(T_{1/2}\).
d) Negativ unterhalb von \(T_{1/2}\), aber positiv oberhalb von \(T_{1/2}\)..
8.5 Wie verändert sich die Änderung der freien Standardenthalpie des Vorgangs, wenn die Temperatur (i) über \(T_{1/2}\) erhöht und (ii) unter \(T_{1/2}\) gesenkt wird? Wählen Sie Ihre Antwort aus den folgenden Möglichkeiten aus.
a) Sie nimmt in beiden Fällen ab.
b) Sie nimmt in beiden Fällen zu.
c) Sie nimmt oberhalb von \(T_{1/2}\) zu, aber unterhalb von \(T_{1/2}\) ab.
d) Sie nimmt oberhalb von \(T_{1/2}\) ab, aber unterhalb von \(T_{1/2}\) zu.
Die Kinetik der Entfaltung und Rückfaltung eines Proteins ist in jüngster Zeit zu einem intensiv untersuchten Forschungsgebiet geworden. Die chemische Gleichung für den Vorgang lässt sich wie folgt umschreiben:
Dabei bezeichnen \(k_f\) und \(k_b\) die Geschwindigkeitskonstanten der Hin- bzw. Rückreaktion, wobei angenommen wird, dass sowohl der Hin- als auch der Rückvorgang Elementarschritte sind, die einer Kinetik erster Ordnung folgen.
8.6 Welcher Zusammenhang besteht zwischen der Gleichgewichtskonstante \(K\) und den Geschwindigkeitskonstanten \(k_f\) und \(k_b\) für die oben angegebene einfache chemische Gleichung und die kinetischen Elementarschritte zur Beschreibung der Faltung und Entfaltung des Proteins?
8.7 Leiten Sie ein Geschwindigkeitsgesetz für den Gesamtvorgang her, also \(\mathrm dC_{\mathrm U}/\mathrm dt\), das nur von den Geschwindigkeitskonstanten, \(C_{\mathrm U}\) und \((C_{\mathrm U})_{\mathrm{eq}}\) abhängt.
Aufgabentext aus dem offiziellen englischen Text übersetzt.
Antworten
- 8.1: \(\boxed{K=1}\), dimensionslos.
- 8.2: \(\boxed{\Delta G^\circ(T)=0\ \mathrm{J\,mol^{-1}}}\).
- 8.3: \(\boxed{f_{\mathrm U}=\dfrac{K}{1+K}}\).
- 8.4: (c) — positiv unterhalb von \(T_{1/2}\), negativ oberhalb von \(T_{1/2}\).
- 8.5: (d) — bezogen auf ihren Wert bei \(T_{1/2}\) nimmt \(\Delta G^\circ\) beim Erwärmen über den Mittelpunkt ab und beim Abkühlen unter diesen zu.
- 8.6: \(\boxed{K=\dfrac{k_f}{k_b}}\).
- 8.7: \(\boxed{\dfrac{\mathrm dC_{\mathrm U}}{\mathrm dt}=(k_f+k_b)\big[(C_{\mathrm U})_{\mathrm{eq}}-C_{\mathrm U}\big]}\).
Lösung
Im Folgenden ist der Hinprozess stets die Entfaltung, \(\ce{N -> U}\). Die Bezeichnungen stehen für die native und die entfaltete Konformation desselben Proteins. Seine Molekülstruktur ist nicht angegeben, sodass keine eindeutige SMILES-Darstellung zugeordnet werden kann; gewöhnliche SMILES beschreiben außerdem nicht die Faltungskonformation.
8.1
Für das Zwei-Zustands-Gleichgewicht \(\ce{N <=> U}\) ist die Gleichgewichtskonstante im hier verwendeten Konzentrationsmodell
\[ K(T)=\frac{(C_{\mathrm U})_{\mathrm{eq}}} {(C_{\mathrm N})_{\mathrm{eq}}}. \]
Gleiche Anteile bedeuten gleiche Konzentrationen, sodass
\[ \boxed{K(T)=1}. \]
Das Verhältnis und damit \(K\) sind dimensionslos.
8.2
Für die freie Standardreaktionsenthalpie und die Gleichgewichtskonstante gilt
\[ \Delta G^\circ(T)=-RT\ln K(T). \]
Mit \(K=1\) ergibt sich
\[ \boxed{\Delta G^\circ(T)=-RT\ln 1 =0\ \mathrm{J\,mol^{-1}}}. \]
8.3
Aus der Erhaltung der Gesamtkonzentration des Proteins folgt
\[ C=(C_{\mathrm N})_{\mathrm{eq}}+(C_{\mathrm U})_{\mathrm{eq}}. \]
Da
\[ (C_{\mathrm U})_{\mathrm{eq}} =K(C_{\mathrm N})_{\mathrm{eq}}, \]
ist der entfaltete Anteil
\[ \begin{aligned} f_{\mathrm U} &=\frac{(C_{\mathrm U})_{\mathrm{eq}}} {(C_{\mathrm N})_{\mathrm{eq}}+(C_{\mathrm U})_{\mathrm{eq}}}\\ &=\frac{K(C_{\mathrm N})_{\mathrm{eq}}} {(1+K)(C_{\mathrm N})_{\mathrm{eq}}}\\ &=\boxed{\frac{K}{1+K}}. \end{aligned} \]
Äquivalent dazu gilt
\[ K=\frac{f_{\mathrm U}}{1-f_{\mathrm U}}. \]
8.4
Unterhalb des Denaturierungsmittelpunkts gilt
\[ f_{\mathrm U}<\frac12 \quad\Longrightarrow\quad K=\frac{f_{\mathrm U}}{1-f_{\mathrm U}}<1. \]
Damit ist \(\ln K<0\), und wegen \(R,T>0\) gilt
\[ \Delta G^\circ(T)=-RT\ln K>0. \]
Oberhalb des Mittelpunkts gilt
\[ f_{\mathrm U}>\frac12 \quad\Longrightarrow\quad K>1 \quad\Longrightarrow\quad \Delta G^\circ(T)<0. \]
Daher lautet die Antwort (c):
\[ \boxed{ \begin{cases} \Delta G^\circ(T)>0,&T<T_{1/2},\\ \Delta G^\circ(T)=0,&T=T_{1/2},\\ \Delta G^\circ(T)<0,&T>T_{1/2}. \end{cases}} \]
8.5
Bei \(T_{1/2}\) ergeben sich aus den gleichen Anteilen \(K=1\) und \(\Delta G^\circ=0\).
(i) Beim Erwärmen über \(T_{1/2}\) nimmt der entfaltete Anteil zu, sodass \(K>1\) gilt. Folglich wird \(\Delta G^\circ=-RT\ln K\) negativ: Die freie Standardenthalpie nimmt gegenüber ihrem Wert am Mittelpunkt ab.
(ii) Beim Abkühlen unter \(T_{1/2}\) nimmt der entfaltete Anteil ab, sodass \(K<1\) gilt. Folglich wird \(\Delta G^\circ\) positiv: Die freie Standardenthalpie nimmt gegenüber ihrem Wert am Mittelpunkt zu.
Somit ist die beabsichtigte Antwort
\[ \boxed{\text{(d)}}. \]
8.6
Die Geschwindigkeiten der Hin- und Rückreaktion erster Ordnung sind
\[ r_f=k_fC_{\mathrm N}, \qquad r_b=k_bC_{\mathrm U}. \]
Im Gleichgewicht sind diese Geschwindigkeiten gleich:
\[ k_f(C_{\mathrm N})_{\mathrm{eq}} =k_b(C_{\mathrm U})_{\mathrm{eq}}. \]
Durch Umstellen ergibt sich
\[ \boxed{ K=\frac{(C_{\mathrm U})_{\mathrm{eq}}} {(C_{\mathrm N})_{\mathrm{eq}}} =\frac{k_f}{k_b}}. \]
Beide Geschwindigkeitskonstanten erster Ordnung haben die SI-Einheit \(\mathrm{s^{-1}}\), sodass ihr Verhältnis dimensionslos ist.
8.7
Bei konstanter Temperatur beträgt die Nettobildungsgeschwindigkeit des entfalteten Proteins
\[ \frac{\mathrm dC_{\mathrm U}}{\mathrm dt} =k_fC_{\mathrm N}-k_bC_{\mathrm U}. \]
Die Gesamtkonzentration des Proteins bleibt erhalten:
\[ C_{\mathrm N}+C_{\mathrm U}=C. \]
Einsetzen von \(C_{\mathrm N}=C-C_{\mathrm U}\) ergibt
\[ \frac{\mathrm dC_{\mathrm U}}{\mathrm dt} =k_fC-(k_f+k_b)C_{\mathrm U}. \]
Im Gleichgewicht verschwindet die Ableitung, sodass
\[ k_fC=(k_f+k_b)(C_{\mathrm U})_{\mathrm{eq}}. \]
Durch Eliminieren von \(C\) erhält man das gesuchte Geschwindigkeitsgesetz:
\[ \boxed{ \frac{\mathrm dC_{\mathrm U}}{\mathrm dt} =(k_f+k_b)\left[(C_{\mathrm U})_{\mathrm{eq}}-C_{\mathrm U}\right]}. \]
Dies sagt korrekt eine Zunahme von \(C_{\mathrm U}\) voraus, wenn die Konzentration unter ihrem Gleichgewichtswert liegt, und eine Abnahme, wenn sie darüber liegt. Werden die Konzentrationen in \(\mathrm{mol\,m^{-3}}\) angegeben, hat die Geschwindigkeit die Einheit \(\mathrm{mol\,m^{-3}\,s^{-1}}\).
Die Lösung wurde mit der offiziellen Lösung abgeglichen.
IChO 2005 · Teori sorusu 8
Protein Katlanması
Çoğu protein, doğal ve açılmış biçimleriyle dengede bulunan diğer kararlı ara türlerin kayda değer derişimleri olmaksızın, genellikle yalnızca iki biçimde bulunur: doğal biçim (N) ve ısıl ya da kimyasal olarak denatüre edildiklerinde aldıkları açılmış biçim (U). Bu proteinler için katlanma-açılma dengesi aşağıdaki basit kimyasal denklemle açıklanabilir:
Burada N ve U, sırasıyla proteinin katlanmış hâlini (doğal hâlini) ve açılmış hâlini (denatüre hâlini) gösterir. \(K(T)\), \(T\) mutlak sıcaklığında bu sürecin denge sabitidir.
8.1 Doğal ve denatüre hâller dengede eşit oranlarda bulunduğunda sürecin denge sabiti nedir?
8.2 Doğal ve denatüre hâller dengede eşit oranlarda bulunduğunda sürecin standart serbest enerji değişimi \((\Delta G^\circ(T))\) nedir? Yanıtınızı SI birimleriyle ifade ediniz.
8.3 \((C_{\mathrm N})_{\mathrm{eq}}\) ve \((C_{\mathrm U})_{\mathrm{eq}}\), sırasıyla çözeltideki \(N\) ve \(U\)'nun denge derişimlerini, \(C\) ise proteinin toplam derişimini gösteriyorsa, denge koşullarında toplam proteinin açılmış olan kesri \(f_{\mathrm U}=(C_{\mathrm U})_{\mathrm{eq}}/C\) ile verilir. \(f_{\mathrm U}\) için denge sabiti \(K\) cinsinden bir ifade türetiniz. Tüm işlemleri yanıt kâğıdında gösteriniz.
Bir protein, çözeltinin sıcaklığı artırılarak denatüre edildiğinde, açılmış protein kesri aşağıdaki şekilde gösterildiği gibi sıcaklıkla artar.
Denatürasyon eğrisinin orta noktası \(f_{\mathrm U}=\tfrac12\) ve \(T=T_{1/2}\) ile verilir. Bu sıcaklık genellikle denatürasyon sıcaklığı olarak adlandırılır. \(T_{1/2}\)'den yüksek sıcaklıklarda \(f_{\mathrm U}\), \(\tfrac12\)'nin üzerine çıkarken, \(T_{1/2}\)'den düşük sıcaklıklarda \(f_{\mathrm U}\), \(\tfrac12\)'nin altına iner.
8.4 \(T_{1/2}\)'nin altındaki ve üzerindeki sıcaklıklarda \(\Delta G^\circ(T)\)'nin işareti nedir? Yanıtınızı aşağıdaki seçeneklerden seçiniz.
a) \(T_{1/2}\)'nin hem altında hem de üzerinde negatiftir.
b) \(T_{1/2}\)'nin hem altında hem de üzerinde pozitiftir.
c) \(T_{1/2}\)'nin altında pozitif, üzerinde ise negatiftir.
d) \(T_{1/2}\)'nin altında negatif, üzerinde ise pozitiftir.
8.5 Sıcaklık (i) \(T_{1/2}\)'nin üzerine çıkarıldığında ve (ii) \(T_{1/2}\)'nin altına düşürüldüğünde sürecin standart Gibbs serbest enerji değişimi nasıl değişir? Yanıtınızı aşağıdaki seçeneklerden seçiniz.
a) Her iki durumda da azalır.
b) Her iki durumda da artar.
c) \(T_{1/2}\)'nin üzerine çıkıldığında artar, altına inildiğinde ise azalır.
d) \(T_{1/2}\)'nin üzerine çıkıldığında azalır, altına inildiğinde ise artar.
Bir proteinin açılma ve yeniden katlanma kinetiği son zamanlarda yoğun biçimde çalışılan bir araştırma alanı hâline gelmiştir. Sürecin kimyasal denklemini aşağıdaki gibi yeniden yazabiliriz:
Burada \(k_f\) ve \(k_b\), sırasıyla ileri ve geri tepkimelerin hız sabitlerini gösterir; hem ileri hem de geri süreçlerin birinci dereceden kinetiğe uyan elementer basamaklar olduğu varsayılmaktadır.
8.6 Yukarıda özetlenen protein katlanma-açılma sürecini açıklamak için kullanılan basit kimyasal denklem ve elementer kinetik basamaklar için denge sabiti \(K\) ile hız sabitleri \(k_f\) ve \(k_b\) arasındaki ilişki nedir?
8.7 Toplam süreç için, yani \(\mathrm dC_{\mathrm U}/\mathrm dt\) için, yalnızca hız sabitleri, \(C_{\mathrm U}\) ve \((C_{\mathrm U})_{\mathrm{eq}}\) cinsinden bir hız yasası türetiniz.
Soru metni resmi İngilizce metinden çevrilmiştir.
Cevaplar
- 8.1: \(\boxed{K=1}\), boyutsuzdur.
- 8.2: \(\boxed{\Delta G^\circ(T)=0\ \mathrm{J\,mol^{-1}}}\).
- 8.3: \(\boxed{f_{\mathrm U}=\dfrac{K}{1+K}}\).
- 8.4: (c) — \(T_{1/2}\)'nin altında pozitif, üzerinde negatiftir.
- 8.5: (d) — \(T_{1/2}\)'deki değerine göre, \(\Delta G^\circ\) orta noktanın üzerine ısıtıldığında azalır, altına soğutulduğunda artar.
- 8.6: \(\boxed{K=\dfrac{k_f}{k_b}}\).
- 8.7: \(\boxed{\dfrac{\mathrm dC_{\mathrm U}}{\mathrm dt}=(k_f+k_b)\big[(C_{\mathrm U})_{\mathrm{eq}}-C_{\mathrm U}\big]}\).
Çözüm
Çözüm boyunca ileri süreç açılmadır: \(\ce{N -> U}\). Simgeler, aynı proteinin doğal ve açılmış konformasyonlarını gösterir. Proteinin moleküler yapısı belirtilmediğinden, ona tek bir SMILES gösterimi atanamaz; sıradan SMILES gösterimi de katlanma konformasyonunu tanımlamaz.
8.1
İki hâlli \(\ce{N <=> U}\) dengesi için burada kullanılan derişim modelindeki denge sabiti şöyledir:
\[ K(T)=\frac{(C_{\mathrm U})_{\mathrm{eq}}} {(C_{\mathrm N})_{\mathrm{eq}}}. \]
Eşit oranlar eşit derişimler anlamına geldiğinden,
\[ \boxed{K(T)=1}. \]
Bu oran ve dolayısıyla \(K\) boyutsuzdur.
8.2
Standart tepkime Gibbs enerjisi ile denge sabiti arasında şu ilişki vardır:
\[ \Delta G^\circ(T)=-RT\ln K(T). \]
\(K=1\) kullanıldığında,
\[ \boxed{\Delta G^\circ(T)=-RT\ln 1 =0\ \mathrm{J\,mol^{-1}}}. \]
8.3
Toplam protein derişiminin korunumu şu bağıntıyı verir:
\[ C=(C_{\mathrm N})_{\mathrm{eq}}+(C_{\mathrm U})_{\mathrm{eq}}. \]
Şu bağıntı geçerlidir:
\[ (C_{\mathrm U})_{\mathrm{eq}} =K(C_{\mathrm N})_{\mathrm{eq}}, \]
Bu nedenle açılmış protein kesri şöyledir:
\[ \begin{aligned} f_{\mathrm U} &=\frac{(C_{\mathrm U})_{\mathrm{eq}}} {(C_{\mathrm N})_{\mathrm{eq}}+(C_{\mathrm U})_{\mathrm{eq}}}\\ &=\frac{K(C_{\mathrm N})_{\mathrm{eq}}} {(1+K)(C_{\mathrm N})_{\mathrm{eq}}}\\ &=\boxed{\frac{K}{1+K}}. \end{aligned} \]
Eşdeğer olarak,
\[ K=\frac{f_{\mathrm U}}{1-f_{\mathrm U}}. \]
8.4
Denatürasyon orta noktasının altında,
\[ f_{\mathrm U}<\frac12 \quad\Longrightarrow\quad K=\frac{f_{\mathrm U}}{1-f_{\mathrm U}}<1. \]
Dolayısıyla \(\ln K<0\) olur ve \(R,T>0\) olduğundan,
\[ \Delta G^\circ(T)=-RT\ln K>0. \]
Orta noktanın üzerinde,
\[ f_{\mathrm U}>\frac12 \quad\Longrightarrow\quad K>1 \quad\Longrightarrow\quad \Delta G^\circ(T)<0. \]
Bu nedenle yanıt (c)'dir:
\[ \boxed{ \begin{cases} \Delta G^\circ(T)>0,&T<T_{1/2},\\ \Delta G^\circ(T)=0,&T=T_{1/2},\\ \Delta G^\circ(T)<0,&T>T_{1/2}. \end{cases}} \]
8.5
\(T_{1/2}\)'de, iki hâlde eşit sayıda molekül bulunması \(K=1\) ve \(\Delta G^\circ=0\) olmasını sağlar.
(i) \(T_{1/2}\)'nin üzerine ısıtmak açılmış protein kesrini artırır ve \(K>1\) olur. Sonuç olarak, \(\Delta G^\circ=-RT\ln K\) negatif olur: orta noktadaki değerine göre azalır.
(ii) \(T_{1/2}\)'nin altına soğutmak açılmış protein kesrini azaltır ve \(K<1\) olur. Sonuç olarak, \(\Delta G^\circ\) pozitif olur: orta noktadaki değerine göre artar.
Böylece kastedilen seçenek şudur:
\[ \boxed{\text{(d)}}. \]
8.6
Birinci dereceden ileri ve geri tepkimelerin hızları şöyledir:
\[ r_f=k_fC_{\mathrm N}, \qquad r_b=k_bC_{\mathrm U}. \]
Dengede bu hızlar eşittir:
\[ k_f(C_{\mathrm N})_{\mathrm{eq}} =k_b(C_{\mathrm U})_{\mathrm{eq}}. \]
Yeniden düzenlendiğinde,
\[ \boxed{ K=\frac{(C_{\mathrm U})_{\mathrm{eq}}} {(C_{\mathrm N})_{\mathrm{eq}}} =\frac{k_f}{k_b}}. \]
Birinci dereceden her iki hız sabitinin SI birimi de \(\mathrm{s^{-1}}\) olduğundan, oranları boyutsuzdur.
8.7
Sabit sıcaklıkta, açılmış proteinin net oluşum hızı şöyledir:
\[ \frac{\mathrm dC_{\mathrm U}}{\mathrm dt} =k_fC_{\mathrm N}-k_bC_{\mathrm U}. \]
Toplam protein derişimi korunur:
\[ C_{\mathrm N}+C_{\mathrm U}=C. \]
\(C_{\mathrm N}=C-C_{\mathrm U}\) yerine konulduğunda,
\[ \frac{\mathrm dC_{\mathrm U}}{\mathrm dt} =k_fC-(k_f+k_b)C_{\mathrm U}. \]
Dengede türev sıfır olur; dolayısıyla
\[ k_fC=(k_f+k_b)(C_{\mathrm U})_{\mathrm{eq}}. \]
\(C\) elendiğinde istenen hız yasası elde edilir:
\[ \boxed{ \frac{\mathrm dC_{\mathrm U}}{\mathrm dt} =(k_f+k_b)\left[(C_{\mathrm U})_{\mathrm{eq}}-C_{\mathrm U}\right]}. \]
Bu ifade, \(C_{\mathrm U}\)'nun denge değerinin altındayken artacağını ve üzerindeyken azalacağını doğru biçimde öngörür. Derişimler \(\mathrm{mol\,m^{-3}}\) cinsinden verildiğinde, hızın birimi \(\mathrm{mol\,m^{-3}\,s^{-1}}\) olur.
Çözüm, resmi çözümle karşılaştırılarak kontrol edildi.
IChO 2005 · Problema teórico 8
Plegamiento de proteínas
La mayoría de las proteínas suelen existir únicamente en dos formas, la forma nativa (N) y la forma desplegada (U) cuando se desnaturalizan térmica o químicamente, sin concentraciones apreciables de otros intermediarios estables en equilibrio con las formas nativa y desplegada. Para estas proteínas, el equilibrio de plegamiento-desplegamiento puede describirse mediante la siguiente ecuación química sencilla:
donde N y U representan el estado plegado (estado nativo) y el estado desplegado (estado desnaturalizado) de la proteína, respectivamente. \(K(T)\) es la constante de equilibrio del proceso a la temperatura absoluta \(T\).
8.1 ¿Cuál es la constante de equilibrio del proceso cuando los estados nativo y desnaturalizado están presentes en proporciones iguales en el equilibrio?
8.2 ¿Cuál es la variación de energía libre estándar del proceso \((\Delta G^\circ(T))\) cuando los estados nativo y desnaturalizado están presentes en proporciones iguales en el equilibrio? Exprese su respuesta en unidades del SI.
8.3 Si \((C_{\mathrm N})_{\mathrm{eq}}\) y \((C_{\mathrm U})_{\mathrm{eq}}\) representan las concentraciones de equilibrio de \(N\) y \(U\) en disolución, respectivamente, y \(C\) es la concentración total de la proteína, la fracción de la proteína total que está desplegada en condiciones de equilibrio viene dada por \(f_{\mathrm U}=(C_{\mathrm U})_{\mathrm{eq}}/C\). Deduzca una expresión para \(f_{\mathrm U}\) en función de la constante de equilibrio \(K\). Muestre todos los pasos en la hoja de respuestas.
Cuando una proteína se desnaturaliza al aumentar la temperatura de la disolución, la fracción de proteína desplegada aumenta con la temperatura, como se muestra en la siguiente figura.
El punto medio de la curva de desnaturalización viene dado por \(f_{\mathrm U}=\tfrac12\) y \(T=T_{1/2}\). Esta última suele denominarse temperatura de desnaturalización. A temperaturas superiores a \(T_{1/2}\), \(f_{\mathrm U}\) aumenta por encima de \(\tfrac12\), pero a temperaturas inferiores a \(T_{1/2}\), \(f_{\mathrm U}\) disminuye por debajo de \(\tfrac12\).
8.4 ¿Cuál es el signo de \(\Delta G^\circ(T)\) a temperaturas inferiores y superiores a \(T_{1/2}\)? Seleccione su respuesta entre las siguientes opciones.
a) Negativo tanto por debajo como por encima de \(T_{1/2}\).
b) Positivo tanto por debajo como por encima de \(T_{1/2}\).
c) Positivo por debajo de \(T_{1/2}\), pero negativo por encima de \(T_{1/2}\).
d) Negativo por debajo de \(T_{1/2}\), pero positivo por encima de \(T_{1/2}\)..
8.5 ¿Cómo varía la variación de energía libre de Gibbs estándar del proceso cuando la temperatura (i) aumenta por encima de \(T_{1/2}\) y (ii) disminuye por debajo de \(T_{1/2}\)? Seleccione su respuesta entre las siguientes opciones.
a) Disminuye en ambos casos.
b) Aumenta en ambos casos.
c) Aumenta por encima de \(T_{1/2}\), pero disminuye por debajo de \(T_{1/2}\).
d) Disminuye por encima de \(T_{1/2}\), pero aumenta por debajo de \(T_{1/2}\).
La cinética del desplegamiento y del replegamiento de una proteína se ha convertido recientemente en un campo de estudio intenso. Podríamos reescribir la ecuación química del proceso de la siguiente manera:
donde \(k_f\) y \(k_b\) representan las constantes de velocidad de las reacciones directa e inversa, respectivamente, suponiendo que tanto el proceso directo como el inverso son etapas elementales que siguen una cinética de primer orden.
8.6 Para la ecuación química sencilla y las etapas cinéticas elementales utilizadas para describir el proceso de plegamiento-desplegamiento de la proteína expuesto anteriormente, ¿cuál es la relación entre la constante de equilibrio \(K\) y las constantes de velocidad \(k_f\) y \(k_b\)?
8.7 Deduzca una ley de velocidad para el proceso global, es decir, \(\mathrm dC_{\mathrm U}/\mathrm dt\), en función únicamente de las constantes de velocidad, \(C_{\mathrm U}\) y \((C_{\mathrm U})_{\mathrm{eq}}\).
Enunciado traducido del texto oficial en inglés.
Respuestas
- 8.1: \(\boxed{K=1}\), adimensional.
- 8.2: \(\boxed{\Delta G^\circ(T)=0\ \mathrm{J\,mol^{-1}}}\).
- 8.3: \(\boxed{f_{\mathrm U}=\dfrac{K}{1+K}}\).
- 8.4: (c) — positivo por debajo de \(T_{1/2}\), negativo por encima de \(T_{1/2}\).
- 8.5: (d) — con respecto a su valor a \(T_{1/2}\), \(\Delta G^\circ\) disminuye al calentar por encima del punto medio y aumenta al enfriar por debajo de él.
- 8.6: \(\boxed{K=\dfrac{k_f}{k_b}}\).
- 8.7: \(\boxed{\dfrac{\mathrm dC_{\mathrm U}}{\mathrm dt}=(k_f+k_b)\big[(C_{\mathrm U})_{\mathrm{eq}}-C_{\mathrm U}\big]}\).
Solución
En todo lo que sigue, el proceso directo es el desplegamiento, \(\ce{N -> U}\). Las etiquetas representan las conformaciones nativa y desplegada de la misma proteína. Su estructura molecular no está especificada, por lo que no se puede asignar un SMILES único; además, los SMILES convencionales no describen la conformación de plegamiento.
8.1
Para el equilibrio entre dos estados \(\ce{N <=> U}\), la constante de equilibrio en el modelo de concentraciones utilizado aquí es
\[ K(T)=\frac{(C_{\mathrm U})_{\mathrm{eq}}} {(C_{\mathrm N})_{\mathrm{eq}}}. \]
Las proporciones iguales implican concentraciones iguales, lo que da
\[ \boxed{K(T)=1}. \]
El cociente, y por tanto \(K\), es adimensional.
8.2
La energía de Gibbs estándar de reacción y la constante de equilibrio satisfacen
\[ \Delta G^\circ(T)=-RT\ln K(T). \]
Utilizando \(K=1\),
\[ \boxed{\Delta G^\circ(T)=-RT\ln 1 =0\ \mathrm{J\,mol^{-1}}}. \]
8.3
La conservación de la concentración total de proteína da
\[ C=(C_{\mathrm N})_{\mathrm{eq}}+(C_{\mathrm U})_{\mathrm{eq}}. \]
Puesto que
\[ (C_{\mathrm U})_{\mathrm{eq}} =K(C_{\mathrm N})_{\mathrm{eq}}, \]
la fracción desplegada es
\[ \begin{aligned} f_{\mathrm U} &=\frac{(C_{\mathrm U})_{\mathrm{eq}}} {(C_{\mathrm N})_{\mathrm{eq}}+(C_{\mathrm U})_{\mathrm{eq}}}\\ &=\frac{K(C_{\mathrm N})_{\mathrm{eq}}} {(1+K)(C_{\mathrm N})_{\mathrm{eq}}}\\ &=\boxed{\frac{K}{1+K}}. \end{aligned} \]
De forma equivalente,
\[ K=\frac{f_{\mathrm U}}{1-f_{\mathrm U}}. \]
8.4
Por debajo del punto medio de desnaturalización,
\[ f_{\mathrm U}<\frac12 \quad\Longrightarrow\quad K=\frac{f_{\mathrm U}}{1-f_{\mathrm U}}<1. \]
Por tanto, \(\ln K<0\), y puesto que \(R,T>0\),
\[ \Delta G^\circ(T)=-RT\ln K>0. \]
Por encima del punto medio,
\[ f_{\mathrm U}>\frac12 \quad\Longrightarrow\quad K>1 \quad\Longrightarrow\quad \Delta G^\circ(T)<0. \]
Por lo tanto, la respuesta es (c):
\[ \boxed{ \begin{cases} \Delta G^\circ(T)>0,&T<T_{1/2},\\ \Delta G^\circ(T)=0,&T=T_{1/2},\\ \Delta G^\circ(T)<0,&T>T_{1/2}. \end{cases}} \]
8.5
A \(T_{1/2}\), las poblaciones iguales dan \(K=1\) y \(\Delta G^\circ=0\).
(i) El calentamiento por encima de \(T_{1/2}\) aumenta la fracción desplegada, lo que da \(K>1\). En consecuencia, \(\Delta G^\circ=-RT\ln K\) se vuelve negativa: disminuye con respecto a su valor en el punto medio.
(ii) El enfriamiento por debajo de \(T_{1/2}\) disminuye la fracción desplegada, lo que da \(K<1\). En consecuencia, \(\Delta G^\circ\) se vuelve positiva: aumenta con respecto a su valor en el punto medio.
Por tanto, la opción prevista es
\[ \boxed{\text{(d)}}. \]
8.6
Las velocidades de las reacciones directa e inversa de primer orden son
\[ r_f=k_fC_{\mathrm N}, \qquad r_b=k_bC_{\mathrm U}. \]
En el equilibrio, estas velocidades son iguales:
\[ k_f(C_{\mathrm N})_{\mathrm{eq}} =k_b(C_{\mathrm U})_{\mathrm{eq}}. \]
Reordenando,
\[ \boxed{ K=\frac{(C_{\mathrm U})_{\mathrm{eq}}} {(C_{\mathrm N})_{\mathrm{eq}}} =\frac{k_f}{k_b}}. \]
Ambas constantes de velocidad de primer orden tienen unidades del SI \(\mathrm{s^{-1}}\), por lo que su cociente es adimensional.
8.7
A temperatura constante, la velocidad neta de formación de proteína desplegada es
\[ \frac{\mathrm dC_{\mathrm U}}{\mathrm dt} =k_fC_{\mathrm N}-k_bC_{\mathrm U}. \]
La concentración total de proteína se conserva:
\[ C_{\mathrm N}+C_{\mathrm U}=C. \]
Sustituyendo \(C_{\mathrm N}=C-C_{\mathrm U}\),
\[ \frac{\mathrm dC_{\mathrm U}}{\mathrm dt} =k_fC-(k_f+k_b)C_{\mathrm U}. \]
En el equilibrio, la derivada se anula, por lo que
\[ k_fC=(k_f+k_b)(C_{\mathrm U})_{\mathrm{eq}}. \]
Al eliminar \(C\) se obtiene la ley de velocidad solicitada:
\[ \boxed{ \frac{\mathrm dC_{\mathrm U}}{\mathrm dt} =(k_f+k_b)\left[(C_{\mathrm U})_{\mathrm{eq}}-C_{\mathrm U}\right]}. \]
Esta predice correctamente un aumento de \(C_{\mathrm U}\) cuando está por debajo de su valor de equilibrio y una disminución cuando está por encima de él. Con las concentraciones expresadas en \(\mathrm{mol\,m^{-3}}\), la velocidad tiene unidades de \(\mathrm{mol\,m^{-3}\,s^{-1}}\).
La solución se comprobó con la solución oficial.
IChO 2005 · 理论题 8
蛋白质折叠
大多数蛋白质在受热或化学作用而变性时,通常只以天然态(N)和去折叠态(U)两种形式存在,不存在浓度可观且与天然态和去折叠态处于平衡的其他稳定中间态。对于这些蛋白质,折叠–去折叠平衡可用以下简单的化学方程式描述:
其中,N 和 U 分别表示蛋白质的折叠态(天然态)和去折叠态(变性态)。\(K(T)\) 为该过程在绝对温度 \(T\) 下的平衡常数。
8.1 当平衡时天然态和变性态的比例相等,该过程的平衡常数是多少?
8.2 当平衡时天然态和变性态的比例相等,该过程的标准自由能变化 \((\Delta G^\circ(T))\) 是多少?用 SI 单位表示答案。
8.3 若 \((C_{\mathrm N})_{\mathrm{eq}}\) 和 \((C_{\mathrm U})_{\mathrm{eq}}\) 分别表示溶液中 \(N\) 和 \(U\) 的平衡浓度,\(C\) 为蛋白质的总浓度,则在平衡条件下,去折叠蛋白质占蛋白质总量的分数为 \(f_{\mathrm U}=(C_{\mathrm U})_{\mathrm{eq}}/C\)。推导用平衡常数 \(K\) 表示 \(f_{\mathrm U}\) 的表达式。在答题纸上写出完整的推导过程。
通过升高溶液温度使蛋白质变性时,去折叠蛋白质的分数随温度升高而增大,如下图所示。
变性曲线的中点对应于 \(f_{\mathrm U}=\tfrac12\) 和 \(T=T_{1/2}\)。后者通常称为变性温度。温度高于 \(T_{1/2}\) 时,\(f_{\mathrm U}\) 增大至 \(\tfrac12\) 以上;而温度低于 \(T_{1/2}\) 时,\(f_{\mathrm U}\) 减小至 \(\tfrac12\) 以下。
8.4 在温度低于和高于 \(T_{1/2}\) 时,\(\Delta G^\circ(T)\) 的正负号分别是什么?从以下选项中选择答案。
a) 在低于和高于 \(T_{1/2}\) 时均为负。
b) 在低于和高于 \(T_{1/2}\) 时均为正。
c) 在低于 \(T_{1/2}\) 时为正,但在高于 \(T_{1/2}\) 时为负。
d) 在低于 \(T_{1/2}\) 时为负,但在高于 \(T_{1/2}\) 时为正。
8.5 当温度 (i) 升高至 \(T_{1/2}\) 以上和 (ii) 降低至 \(T_{1/2}\) 以下时,该过程的标准吉布斯自由能变化如何改变?从以下选项中选择答案。
a) 两种情况下均减小。
b) 两种情况下均增大。
c) 在升高至 \(T_{1/2}\) 以上时增大,但在降低至 \(T_{1/2}\) 以下时减小。
d) 在升高至 \(T_{1/2}\) 以上时减小,但在降低至 \(T_{1/2}\) 以下时增大。
蛋白质去折叠与再折叠的动力学近年来已成为一个研究热点。我们可以将该过程的化学方程式改写如下:
其中,\(k_f\) 和 \(k_b\) 分别表示正向和逆向反应的速率常数,假定正向和逆向过程都是遵循一级反应动力学的基元步骤。
8.6 对于上述用于描述蛋白质折叠–去折叠过程的简单化学方程式和基元动力学步骤,平衡常数 \(K\) 与速率常数 \(k_f\) 和 \(k_b\) 之间有什么关系?
8.7 推导总过程的速率方程,即仅用速率常数、\(C_{\mathrm U}\) 和 \((C_{\mathrm U})_{\mathrm{eq}}\) 表示 \(\mathrm dC_{\mathrm U}/\mathrm dt\)。
题目译自官方英文原文。
答案
- 8.1: \(\boxed{K=1}\),无量纲。
- 8.2: \(\boxed{\Delta G^\circ(T)=0\ \mathrm{J\,mol^{-1}}}\)。
- 8.3: \(\boxed{f_{\mathrm U}=\dfrac{K}{1+K}}\)。
- 8.4: (c) — 低于 \(T_{1/2}\) 时为正,高于 \(T_{1/2}\) 时为负。
- 8.5: (d) — 相对于在 \(T_{1/2}\) 时的值,\(\Delta G^\circ\) 在加热至中点温度以上时减小,在冷却至中点温度以下时增大。
- 8.6: \(\boxed{K=\dfrac{k_f}{k_b}}\)。
- 8.7: \(\boxed{\dfrac{\mathrm dC_{\mathrm U}}{\mathrm dt}=(k_f+k_b)\big[(C_{\mathrm U})_{\mathrm{eq}}-C_{\mathrm U}\big]}\)。
解答
下文始终以去折叠过程 \(\ce{N -> U}\) 为正向过程。这些标记表示同一种蛋白质的天然构象和去折叠构象。题目未指定其分子结构,因此无法为其指定唯一的 SMILES;普通 SMILES 也不能描述折叠构象。
8.1
对于两态平衡 \(\ce{N <=> U}\),在此处采用的浓度模型中,平衡常数为
\[ K(T)=\frac{(C_{\mathrm U})_{\mathrm{eq}}} {(C_{\mathrm N})_{\mathrm{eq}}}. \]
比例相等意味着浓度相等,因此
\[ \boxed{K(T)=1}. \]
该比值无量纲,因此 \(K\) 也无量纲。
8.2
标准反应吉布斯能与平衡常数满足
\[ \Delta G^\circ(T)=-RT\ln K(T). \]
代入 \(K=1\),得
\[ \boxed{\Delta G^\circ(T)=-RT\ln 1 =0\ \mathrm{J\,mol^{-1}}}. \]
8.3
由蛋白质总浓度守恒,得
\[ C=(C_{\mathrm N})_{\mathrm{eq}}+(C_{\mathrm U})_{\mathrm{eq}}. \]
由于
\[ (C_{\mathrm U})_{\mathrm{eq}} =K(C_{\mathrm N})_{\mathrm{eq}}, \]
去折叠蛋白质的分数为
\[ \begin{aligned} f_{\mathrm U} &=\frac{(C_{\mathrm U})_{\mathrm{eq}}} {(C_{\mathrm N})_{\mathrm{eq}}+(C_{\mathrm U})_{\mathrm{eq}}}\\ &=\frac{K(C_{\mathrm N})_{\mathrm{eq}}} {(1+K)(C_{\mathrm N})_{\mathrm{eq}}}\\ &=\boxed{\frac{K}{1+K}}. \end{aligned} \]
等价地,
\[ K=\frac{f_{\mathrm U}}{1-f_{\mathrm U}}. \]
8.4
在低于变性中点的温度下,
\[ f_{\mathrm U}<\frac12 \quad\Longrightarrow\quad K=\frac{f_{\mathrm U}}{1-f_{\mathrm U}}<1. \]
因此 \(\ln K<0\),且由于 \(R,T>0\),
\[ \Delta G^\circ(T)=-RT\ln K>0. \]
在高于中点的温度下,
\[ f_{\mathrm U}>\frac12 \quad\Longrightarrow\quad K>1 \quad\Longrightarrow\quad \Delta G^\circ(T)<0. \]
因此答案为 (c):
\[ \boxed{ \begin{cases} \Delta G^\circ(T)>0,&T<T_{1/2},\\ \Delta G^\circ(T)=0,&T=T_{1/2},\\ \Delta G^\circ(T)<0,&T>T_{1/2}. \end{cases}} \]
8.5
在 \(T_{1/2}\) 时,两种状态的分子数相等,因此 \(K=1\) 且 \(\Delta G^\circ=0\)。
(i) 加热至 \(T_{1/2}\) 以上使去折叠蛋白质的分数增大,得到 \(K>1\)。因此,\(\Delta G^\circ=-RT\ln K\) 变为负值:它相对于中点处的值减小。
(ii) 冷却至 \(T_{1/2}\) 以下使去折叠蛋白质的分数减小,得到 \(K<1\)。因此,\(\Delta G^\circ\) 变为正值:它相对于中点处的值增大。
因此,题目所要求的选项为
\[ \boxed{\text{(d)}}. \]
8.6
一级正向反应和逆向反应的速率为
\[ r_f=k_fC_{\mathrm N}, \qquad r_b=k_bC_{\mathrm U}. \]
平衡时,这两个速率相等:
\[ k_f(C_{\mathrm N})_{\mathrm{eq}} =k_b(C_{\mathrm U})_{\mathrm{eq}}. \]
整理得
\[ \boxed{ K=\frac{(C_{\mathrm U})_{\mathrm{eq}}} {(C_{\mathrm N})_{\mathrm{eq}}} =\frac{k_f}{k_b}}. \]
两个一级反应速率常数的 SI 单位均为 \(\mathrm{s^{-1}}\),因此它们的比值无量纲。
8.7
在恒定温度下,去折叠蛋白质的净生成速率为
\[ \frac{\mathrm dC_{\mathrm U}}{\mathrm dt} =k_fC_{\mathrm N}-k_bC_{\mathrm U}. \]
蛋白质总浓度守恒:
\[ C_{\mathrm N}+C_{\mathrm U}=C. \]
代入 \(C_{\mathrm N}=C-C_{\mathrm U}\),得
\[ \frac{\mathrm dC_{\mathrm U}}{\mathrm dt} =k_fC-(k_f+k_b)C_{\mathrm U}. \]
平衡时,导数为零,因此
\[ k_fC=(k_f+k_b)(C_{\mathrm U})_{\mathrm{eq}}. \]
消去 \(C\),得到所求的速率方程:
\[ \boxed{ \frac{\mathrm dC_{\mathrm U}}{\mathrm dt} =(k_f+k_b)\left[(C_{\mathrm U})_{\mathrm{eq}}-C_{\mathrm U}\right]}. \]
该方程正确地预测:当 \(C_{\mathrm U}\) 低于平衡浓度时,它会增大;当其高于平衡浓度时,它会减小。当浓度以 \(\mathrm{mol\,m^{-3}}\) 表示时,速率的单位为 \(\mathrm{mol\,m^{-3}\,s^{-1}}\)。
解答已与官方解答核对。
IChO 2005 · Теоретическая задача 8
Сворачивание белка
Большинство белков при термической или химической денатурации обычно существует лишь в двух формах — нативной (N) и развёрнутой (U), причём другие устойчивые промежуточные формы, находящиеся в равновесии с нативной и развёрнутой формами, не присутствуют в заметных концентрациях. Для таких белков равновесие между сворачиванием и разворачиванием можно описать следующим простым химическим уравнением:
где N и U обозначают соответственно свёрнутое состояние (нативное состояние) и развёрнутое состояние (денатурированное состояние) белка. \(K(T)\) — константа равновесия этого процесса при абсолютной температуре \(T\).
8.1 Чему равна константа равновесия этого процесса, если в состоянии равновесия нативная и денатурированная формы присутствуют в равных долях?
8.2 Чему равно стандартное изменение свободной энергии этого процесса \((\Delta G^\circ(T))\), если в состоянии равновесия нативная и денатурированная формы присутствуют в равных долях? Выразите ответ в единицах СИ.
8.3 Если \((C_{\mathrm N})_{\mathrm{eq}}\) и \((C_{\mathrm U})_{\mathrm{eq}}\) обозначают равновесные концентрации \(N\) и \(U\) в растворе соответственно, а \(C\) — общую концентрацию белка, то доля развёрнутого белка от его общего количества в состоянии равновесия задаётся выражением \(f_{\mathrm U}=(C_{\mathrm U})_{\mathrm{eq}}/C\). Выведите выражение для \(f_{\mathrm U}\) через константу равновесия \(K\). Приведите все выкладки на листе ответов.
При денатурации белка путём повышения температуры раствора доля развёрнутого белка увеличивается с температурой, как показано на следующем рисунке.
Середина кривой денатурации определяется условиями \(f_{\mathrm U}=\tfrac12\) и \(T=T_{1/2}\). Последнюю величину часто называют температурой денатурации. При температурах выше \(T_{1/2}\) значение \(f_{\mathrm U}\) становится больше \(\tfrac12\), а при температурах ниже \(T_{1/2}\) значение \(f_{\mathrm U}\) становится меньше \(\tfrac12\).
8.4 Каков знак \(\Delta G^\circ(T)\) при температурах ниже и выше \(T_{1/2}\)? Выберите ответ из следующих вариантов.
a) Отрицательный как ниже, так и выше \(T_{1/2}\).
b) Положительный как ниже, так и выше \(T_{1/2}\).
c) Положительный ниже \(T_{1/2}\), но отрицательный выше \(T_{1/2}\).
d) Отрицательный ниже \(T_{1/2}\), но положительный выше \(T_{1/2}\)..
8.5 Как меняется стандартное изменение свободной энергии Гиббса этого процесса, когда температура (i) повышается выше \(T_{1/2}\) и (ii) понижается ниже \(T_{1/2}\)? Выберите ответ из следующих вариантов.
a) Уменьшается в обоих случаях.
b) Увеличивается в обоих случаях.
c) Увеличивается выше \(T_{1/2}\), но уменьшается ниже \(T_{1/2}\).
d) Уменьшается выше \(T_{1/2}\), но увеличивается ниже \(T_{1/2}\).
В последнее время кинетика разворачивания и повторного сворачивания белка стала предметом интенсивных исследований. Химическое уравнение этого процесса можно переписать следующим образом:
где \(k_f\) и \(k_b\) обозначают константы скорости прямой и обратной реакций соответственно; предполагается, что как прямой, так и обратный процессы являются элементарными стадиями, подчиняющимися кинетике первого порядка.
8.6 Какова связь между константой равновесия \(K\) и константами скорости \(k_f\) и \(k_b\) для простого химического уравнения и элементарных кинетических стадий, используемых для описания приведённого выше процесса сворачивания и разворачивания белка?
8.7 Выведите кинетическое уравнение суммарного процесса, то есть выразите \(\mathrm dC_{\mathrm U}/\mathrm dt\) только через константы скорости, \(C_{\mathrm U}\) и \((C_{\mathrm U})_{\mathrm{eq}}\).
Условие переведено с официального английского текста.
Ответы
- 8.1: \(\boxed{K=1}\), безразмерная величина.
- 8.2: \(\boxed{\Delta G^\circ(T)=0\ \mathrm{J\,mol^{-1}}}\).
- 8.3: \(\boxed{f_{\mathrm U}=\dfrac{K}{1+K}}\).
- 8.4: (c) — положительный ниже \(T_{1/2}\), отрицательный выше \(T_{1/2}\).
- 8.5: (d) — относительно своего значения при \(T_{1/2}\) величина \(\Delta G^\circ\) уменьшается при нагревании выше температуры, соответствующей середине кривой, и увеличивается при охлаждении ниже неё.
- 8.6: \(\boxed{K=\dfrac{k_f}{k_b}}\).
- 8.7: \(\boxed{\dfrac{\mathrm dC_{\mathrm U}}{\mathrm dt}=(k_f+k_b)\big[(C_{\mathrm U})_{\mathrm{eq}}-C_{\mathrm U}\big]}\).
Решение
Во всём решении прямым процессом считается разворачивание, \(\ce{N -> U}\). Обозначения относятся к нативной и развёрнутой конформациям одного и того же белка. Его молекулярная структура не указана, поэтому ему нельзя однозначно сопоставить запись SMILES; кроме того, обычная запись SMILES не описывает конформацию свёрнутого белка.
8.1
Для равновесия между двумя состояниями \(\ce{N <=> U}\) константа равновесия в используемой здесь концентрационной модели равна
\[ K(T)=\frac{(C_{\mathrm U})_{\mathrm{eq}}} {(C_{\mathrm N})_{\mathrm{eq}}}. \]
Равные доли означают равные концентрации, откуда
\[ \boxed{K(T)=1}. \]
Это отношение, а следовательно, и \(K\), безразмерно.
8.2
Стандартная энергия Гиббса реакции и константа равновесия связаны соотношением
\[ \Delta G^\circ(T)=-RT\ln K(T). \]
Подставляя \(K=1\), получаем
\[ \boxed{\Delta G^\circ(T)=-RT\ln 1 =0\ \mathrm{J\,mol^{-1}}}. \]
8.3
Из сохранения общей концентрации белка следует
\[ C=(C_{\mathrm N})_{\mathrm{eq}}+(C_{\mathrm U})_{\mathrm{eq}}. \]
Поскольку
\[ (C_{\mathrm U})_{\mathrm{eq}} =K(C_{\mathrm N})_{\mathrm{eq}}, \]
доля развёрнутого белка равна
\[ \begin{aligned} f_{\mathrm U} &=\frac{(C_{\mathrm U})_{\mathrm{eq}}} {(C_{\mathrm N})_{\mathrm{eq}}+(C_{\mathrm U})_{\mathrm{eq}}}\\ &=\frac{K(C_{\mathrm N})_{\mathrm{eq}}} {(1+K)(C_{\mathrm N})_{\mathrm{eq}}}\\ &=\boxed{\frac{K}{1+K}}. \end{aligned} \]
Эквивалентная запись:
\[ K=\frac{f_{\mathrm U}}{1-f_{\mathrm U}}. \]
8.4
Ниже температуры, соответствующей середине кривой денатурации,
\[ f_{\mathrm U}<\frac12 \quad\Longrightarrow\quad K=\frac{f_{\mathrm U}}{1-f_{\mathrm U}}<1. \]
Следовательно, \(\ln K<0\), и, поскольку \(R,T>0\),
\[ \Delta G^\circ(T)=-RT\ln K>0. \]
Выше температуры, соответствующей середине кривой,
\[ f_{\mathrm U}>\frac12 \quad\Longrightarrow\quad K>1 \quad\Longrightarrow\quad \Delta G^\circ(T)<0. \]
Таким образом, ответ — (c):
\[ \boxed{ \begin{cases} \Delta G^\circ(T)>0,&T<T_{1/2},\\ \Delta G^\circ(T)=0,&T=T_{1/2},\\ \Delta G^\circ(T)<0,&T>T_{1/2}. \end{cases}} \]
8.5
При \(T_{1/2}\) равные доли обеих форм дают \(K=1\) и \(\Delta G^\circ=0\).
(i) Нагревание выше \(T_{1/2}\) увеличивает долю развёрнутого белка, поэтому \(K>1\). Следовательно, \(\Delta G^\circ=-RT\ln K\) становится отрицательной: она уменьшается относительно своего значения в середине кривой.
(ii) Охлаждение ниже \(T_{1/2}\) уменьшает долю развёрнутого белка, поэтому \(K<1\). Следовательно, \(\Delta G^\circ\) становится положительной: она увеличивается относительно своего значения в середине кривой.
Таким образом, подразумеваемый вариант ответа:
\[ \boxed{\text{(d)}}. \]
8.6
Скорости прямой и обратной реакций первого порядка равны
\[ r_f=k_fC_{\mathrm N}, \qquad r_b=k_bC_{\mathrm U}. \]
При равновесии эти скорости равны:
\[ k_f(C_{\mathrm N})_{\mathrm{eq}} =k_b(C_{\mathrm U})_{\mathrm{eq}}. \]
После преобразования получаем
\[ \boxed{ K=\frac{(C_{\mathrm U})_{\mathrm{eq}}} {(C_{\mathrm N})_{\mathrm{eq}}} =\frac{k_f}{k_b}}. \]
Обе константы скорости первого порядка имеют единицы СИ \(\mathrm{s^{-1}}\), поэтому их отношение безразмерно.
8.7
При постоянной температуре результирующая скорость образования развёрнутого белка равна
\[ \frac{\mathrm dC_{\mathrm U}}{\mathrm dt} =k_fC_{\mathrm N}-k_bC_{\mathrm U}. \]
Общая концентрация белка сохраняется:
\[ C_{\mathrm N}+C_{\mathrm U}=C. \]
Подставляя \(C_{\mathrm N}=C-C_{\mathrm U}\), получаем
\[ \frac{\mathrm dC_{\mathrm U}}{\mathrm dt} =k_fC-(k_f+k_b)C_{\mathrm U}. \]
При равновесии производная равна нулю, поэтому
\[ k_fC=(k_f+k_b)(C_{\mathrm U})_{\mathrm{eq}}. \]
Исключение \(C\) даёт искомое кинетическое уравнение:
\[ \boxed{ \frac{\mathrm dC_{\mathrm U}}{\mathrm dt} =(k_f+k_b)\left[(C_{\mathrm U})_{\mathrm{eq}}-C_{\mathrm U}\right]}. \]
Оно правильно предсказывает увеличение \(C_{\mathrm U}\), когда эта концентрация ниже равновесной, и её уменьшение, когда она выше равновесной. Если концентрации выражены в \(\mathrm{mol\,m^{-3}}\), скорость имеет единицы \(\mathrm{mol\,m^{-3}\,s^{-1}}\).
Решение проверено по официальному решению.
IChO 2005 · مسألة نظرية 8
طي البروتين
توجد معظم البروتينات عادةً في شكلين فقط، هما الشكل الطبيعي (N) والشكل غير المطوي (U) عند تمسخها حراريًا أو كيميائيًا، دون وجود تراكيز يُعتد بها من حالات وسيطة مستقرة أخرى في اتزان مع الشكلين الطبيعي وغير المطوي. ويمكن وصف اتزان الطي والانبساط لهذه البروتينات بالمعادلة الكيميائية البسيطة الآتية:
حيث يشير N وU إلى الحالة المطوية (الحالة الطبيعية) والحالة غير المطوية (الحالة المتمسخة) للبروتين، على الترتيب. ويمثل \(K(T)\) ثابت اتزان العملية عند درجة الحرارة المطلقة \(T\).
8.1 ما ثابت اتزان العملية عندما توجد الحالتان الطبيعية والمتمسخة بنسب متساوية عند الاتزان؟
8.2 ما التغير في الطاقة الحرة القياسية للعملية \((\Delta G^\circ(T))\) عندما توجد الحالتان الطبيعية والمتمسخة بنسب متساوية عند الاتزان؟ عبّر عن إجابتك بوحدات النظام الدولي.
8.3 إذا كان \((C_{\mathrm N})_{\mathrm{eq}}\) و\((C_{\mathrm U})_{\mathrm{eq}}\) يمثلان تركيزي \(N\) و\(U\) في المحلول عند الاتزان، على الترتيب، وكان \(C\) هو التركيز الكلي للبروتين، فإن كسر البروتين الكلي الموجود في الحالة غير المطوية عند الاتزان يُعطى بالعلاقة \(f_{\mathrm U}=(C_{\mathrm U})_{\mathrm{eq}}/C\). استنتج تعبيرًا عن \(f_{\mathrm U}\) بدلالة ثابت الاتزان \(K\). بيّن جميع خطوات الحل في ورقة الإجابة.
عندما يتمسخ بروتين برفع درجة حرارة المحلول، يزداد كسر البروتين غير المطوي مع درجة الحرارة، كما هو موضح في الشكل الآتي.
تُحدَّد نقطة منتصف منحنى التمسخ بالعلاقتين \(f_{\mathrm U}=\tfrac12\) و\(T=T_{1/2}\). وغالبًا ما تُسمّى درجة الحرارة الأخيرة درجة حرارة التمسخ. وعند درجات حرارة أعلى من \(T_{1/2}\)، يزداد \(f_{\mathrm U}\) فوق \(\tfrac12\)، أما عند درجات حرارة أدنى من \(T_{1/2}\)، فينخفض \(f_{\mathrm U}\) إلى أقل من \(\tfrac12\).
8.4 ما إشارة \(\Delta G^\circ(T)\) عند درجات حرارة أدنى من \(T_{1/2}\) وأعلى منها؟ اختر إجابتك من الخيارات الآتية.
a) سالبة عند درجات حرارة أدنى من \(T_{1/2}\) وأعلى منها.
b) موجبة عند درجات حرارة أدنى من \(T_{1/2}\) وأعلى منها.
c) موجبة عند درجات حرارة أدنى من \(T_{1/2}\)، ولكنها سالبة عند درجات حرارة أعلى منها.
d) سالبة عند درجات حرارة أدنى من \(T_{1/2}\)، ولكنها موجبة عند درجات حرارة أعلى منها..
8.5 كيف يتغير التغير في طاقة غيبس الحرة القياسية للعملية عندما تكون درجة الحرارة (i) آخذة في الارتفاع فوق \(T_{1/2}\) و(ii) آخذة في الانخفاض دون \(T_{1/2}\)؟ اختر إجابتك من الخيارات الآتية.
a) ينخفض في كلتا الحالتين.
b) يرتفع في كلتا الحالتين.
c) يرتفع فوق \(T_{1/2}\)، ولكنه ينخفض دون \(T_{1/2}\).
d) ينخفض فوق \(T_{1/2}\)، ولكنه يرتفع دون \(T_{1/2}\).
أصبحت حركية انبساط البروتين وإعادة طيه مؤخرًا مجالًا للدراسة المكثفة. ويمكننا إعادة كتابة المعادلة الكيميائية للعملية على النحو الآتي:
حيث يمثل \(k_f\) و\(k_b\) ثابتي سرعة التفاعل الأمامي والعكسي، على الترتيب، بافتراض أن العمليتين الأمامية والعكسية خطوتان أوليتان تتبعان حركية من الرتبة الأولى.
8.6 بالنسبة إلى المعادلة الكيميائية البسيطة والخطوات الحركية الأولية المستخدمة لوصف عملية طي البروتين وانبساطه المبينة أعلاه، ما العلاقة بين ثابت الاتزان \(K\) وثابتي السرعة \(k_f\) و\(k_b\)؟
8.7 اشتق قانون سرعة للعملية الكلية، أي \(\mathrm dC_{\mathrm U}/\mathrm dt\) بدلالة ثوابت السرعة و\(C_{\mathrm U}\) و\((C_{\mathrm U})_{\mathrm{eq}}\) فقط.
نص المسألة مترجم عن النص الإنجليزي الرسمي.
الإجابات
- 8.1: \(\boxed{K=1}\)، بلا أبعاد.
- 8.2: \(\boxed{\Delta G^\circ(T)=0\ \mathrm{J\,mol^{-1}}}\).
- 8.3: \(\boxed{f_{\mathrm U}=\dfrac{K}{1+K}}\).
- 8.4: (c) — موجبة دون \(T_{1/2}\)، وسالبة فوق \(T_{1/2}\).
- 8.5: (d) — بالنسبة إلى قيمته عند \(T_{1/2}\)، ينخفض \(\Delta G^\circ\) بالتسخين فوق نقطة المنتصف، ويرتفع بالتبريد دونها.
- 8.6: \(\boxed{K=\dfrac{k_f}{k_b}}\).
- 8.7: \(\boxed{\dfrac{\mathrm dC_{\mathrm U}}{\mathrm dt}=(k_f+k_b)\big[(C_{\mathrm U})_{\mathrm{eq}}-C_{\mathrm U}\big]}\).
الحل
في جميع ما يأتي، تكون العملية الأمامية هي الانبساط، \(\ce{N -> U}\). ويشير الرمزان إلى التشكلين الطبيعي وغير المطوي للبروتين نفسه. ولم تُحدَّد بنيته الجزيئية، لذلك لا يمكن إسناد تمثيل SMILES فريد إليه؛ كما أن تمثيل SMILES المعتاد لا يصف تشكل الطي.
8.1
لاتزان الحالتين \(\ce{N <=> U}\)، يكون ثابت الاتزان في نموذج التراكيز المستخدم هنا هو
\[ K(T)=\frac{(C_{\mathrm U})_{\mathrm{eq}}} {(C_{\mathrm N})_{\mathrm{eq}}}. \]
تعني النسب المتساوية تساوي التراكيز، مما يعطي
\[ \boxed{K(T)=1}. \]
هذه النسبة، ومن ثم \(K\)، بلا أبعاد.
8.2
ترتبط طاقة غيبس القياسية للتفاعل وثابت الاتزان بالعلاقة
\[ \Delta G^\circ(T)=-RT\ln K(T). \]
باستخدام \(K=1\)،
\[ \boxed{\Delta G^\circ(T)=-RT\ln 1 =0\ \mathrm{J\,mol^{-1}}}. \]
8.3
يعطي انحفاظ التركيز الكلي للبروتين
\[ C=(C_{\mathrm N})_{\mathrm{eq}}+(C_{\mathrm U})_{\mathrm{eq}}. \]
بما أن
\[ (C_{\mathrm U})_{\mathrm{eq}} =K(C_{\mathrm N})_{\mathrm{eq}}, \]
فإن الكسر غير المطوي هو
\[ \begin{aligned} f_{\mathrm U} &=\frac{(C_{\mathrm U})_{\mathrm{eq}}} {(C_{\mathrm N})_{\mathrm{eq}}+(C_{\mathrm U})_{\mathrm{eq}}}\\ &=\frac{K(C_{\mathrm N})_{\mathrm{eq}}} {(1+K)(C_{\mathrm N})_{\mathrm{eq}}}\\ &=\boxed{\frac{K}{1+K}}. \end{aligned} \]
وبصورة مكافئة،
\[ K=\frac{f_{\mathrm U}}{1-f_{\mathrm U}}. \]
8.4
عند درجات حرارة دون نقطة منتصف التمسخ،
\[ f_{\mathrm U}<\frac12 \quad\Longrightarrow\quad K=\frac{f_{\mathrm U}}{1-f_{\mathrm U}}<1. \]
إذن \(\ln K<0\)، وبما أن \(R,T>0\)،
\[ \Delta G^\circ(T)=-RT\ln K>0. \]
وعند درجات حرارة فوق نقطة المنتصف،
\[ f_{\mathrm U}>\frac12 \quad\Longrightarrow\quad K>1 \quad\Longrightarrow\quad \Delta G^\circ(T)<0. \]
لذلك تكون الإجابة (c):
\[ \boxed{ \begin{cases} \Delta G^\circ(T)>0,&T<T_{1/2},\\ \Delta G^\circ(T)=0,&T=T_{1/2},\\ \Delta G^\circ(T)<0,&T>T_{1/2}. \end{cases}} \]
8.5
عند \(T_{1/2}\)، يعطي تساوي أعداد الجزيئات في الحالتين \(K=1\) و\(\Delta G^\circ=0\).
(i) يزيد التسخين فوق \(T_{1/2}\) الكسر غير المطوي، مما يعطي \(K>1\). وبالتالي، يصبح \(\Delta G^\circ=-RT\ln K\) سالبًا: أي إنه ينخفض عن قيمته عند نقطة المنتصف.
(ii) يقلل التبريد دون \(T_{1/2}\) الكسر غير المطوي، مما يعطي \(K<1\). وبالتالي، يصبح \(\Delta G^\circ\) موجبًا: أي إنه يرتفع عن قيمته عند نقطة المنتصف.
إذن الخيار المقصود هو
\[ \boxed{\text{(d)}}. \]
8.6
سرعتا التفاعلين الأمامي والعكسي من الرتبة الأولى هما
\[ r_f=k_fC_{\mathrm N}, \qquad r_b=k_bC_{\mathrm U}. \]
عند الاتزان تتساوى هاتان السرعتان:
\[ k_f(C_{\mathrm N})_{\mathrm{eq}} =k_b(C_{\mathrm U})_{\mathrm{eq}}. \]
بإعادة الترتيب،
\[ \boxed{ K=\frac{(C_{\mathrm U})_{\mathrm{eq}}} {(C_{\mathrm N})_{\mathrm{eq}}} =\frac{k_f}{k_b}}. \]
لكلا ثابتي السرعة من الرتبة الأولى الوحدة \(\mathrm{s^{-1}}\) في النظام الدولي، لذا فإن نسبتهما بلا أبعاد.
8.7
عند درجة حرارة ثابتة، تكون السرعة الصافية لتكوّن البروتين غير المطوي هي
\[ \frac{\mathrm dC_{\mathrm U}}{\mathrm dt} =k_fC_{\mathrm N}-k_bC_{\mathrm U}. \]
يبقى التركيز الكلي للبروتين محفوظًا:
\[ C_{\mathrm N}+C_{\mathrm U}=C. \]
بالتعويض عن \(C_{\mathrm N}=C-C_{\mathrm U}\)،
\[ \frac{\mathrm dC_{\mathrm U}}{\mathrm dt} =k_fC-(k_f+k_b)C_{\mathrm U}. \]
عند الاتزان تنعدم المشتقة، ومن ثم
\[ k_fC=(k_f+k_b)(C_{\mathrm U})_{\mathrm{eq}}. \]
يعطي حذف \(C\) قانون السرعة المطلوب:
\[ \boxed{ \frac{\mathrm dC_{\mathrm U}}{\mathrm dt} =(k_f+k_b)\left[(C_{\mathrm U})_{\mathrm{eq}}-C_{\mathrm U}\right]}. \]
يتنبأ هذا القانون على نحو صحيح بزيادة \(C_{\mathrm U}\) عندما يكون أدنى من قيمته عند الاتزان، وبانخفاضه عندما يكون أعلى منها. وعندما تكون التراكيز بوحدة \(\mathrm{mol\,m^{-3}}\)، تكون وحدة السرعة \(\mathrm{mol\,m^{-3}\,s^{-1}}\).
تمت مراجعة الحل بمقارنته بالحل الرسمي.