IChO 1999 · Theory problem 6
Sequence of peptide A
Peptide A has a molecular weight of 1007. Complete acid hydrolysis gives the following amino acids in equimolar amounts: Asp, Cystine, Glu, Gly, Ile, Leu, Pro, and Tyr (see Table 1). Oxidation of A with \(\ce{HCO2OH}\) gives only B which carries two residues of cysteic acid (Cya which is a cysteine derivative with its thiol group oxidized to sulfonic acid).
6.1 How many sulphonic acid groups are formed from oxidation of a disulfide bond ?
Partial hydrolysis of B gives a number of di and tri-peptides (B1-B6). The sequence of each hydrolysis product is determined in the following ways.
The N-terminal amino acid is identified by treating the peptide with 2,4-dinitrofluorobenzene (DNFB) to give DNP-peptide. After complete acid hydrolysis of the DNP-peptide, a DNP-amino acid is obtained which can be identified readily by comparison with standard DNP-amino acids.
6.2 B1, on treatment with DNFB followed by acid hydrolysis gives a product, DNP-Asp. This suggests that B1 has aspartic acid at the N-terminus. Write down the complete structure of DNP-Asp at its isoelectric point (no stereochemistry required).
Next, the C-terminal amino acid is identified by heating the peptide at \(100\,^\circ\mathrm{C}\) with hydrazine, which cleave all the peptide bonds and convert all except C-terminal amino acids into amino acid hydrazides, leaving the C-terminal carboxyl group intact.
In this way N- and C-terminal amino acids are identified and the complete sequences of B1-B6 are as shown :
| B1 | Asp-Cya | B4 | Ile-Glu |
| B2 | Cya-Tyr | B5 | Cya-Pro-Leu |
| B3 | Leu-Gly | B6 | Tyr-Ile-Glu |
Hydrolysis of B with an enzyme from Bacillus subtilis gives B7-B9 with the following compositions:
| B7 | \(\ce{Gly-NH2}\) (Glycinamide) |
| B8 | Cya, Glu, Ile, Tyr |
| B9 | Asp, Cya, Leu, Pro |
6.3 Write down the sequence of B8, if DNP-Cya is obtained on treatment of B8 with DNFB followed by complete acid hydrolysis.
6.4 If the N- and C-terminal amino acids of B9 are identified as Asp and Leu respectively, write down the sequence of B9.
6.5 Write down the complete structure of A using abbreviation in Table 1, indicating the position of the disulfide bond.
However, the calculated molecular weight of A based on the above sequence is 2 mass units higher than the experimental value. On careful observation of the mixture from complete acid hydrolysis of A, 3 molar equivalents of ammonia are also produced in addition to the amino acids detected initially.
6.6 Suggest the revised structure of A and circle the site(s) of the structure to indicate all the possible source of ammonia.
6.7 Using the information in Table 2, calculate the isoelectric point of A.
Table 1: Formulae and symbols of common amino acids at isoelectric point
| Name | Formula | Three-letter symbol |
|---|---|---|
| Alanine | \(\ce{CH3CH(NH3+)CO2-}\) | Ala |
| Arginine | \(\ce{H2NC(=NH)NH(CH2)3CH(NH3+)CO2-}\) | Arg |
| Asparagine | \(\ce{H2NCOCH2CH(NH3+)CO2-}\) | Asn |
| Aspartic Acid | \(\ce{HO2CCH2CH(NH3+)CO2-}\) | Asp |
| Cysteine | \(\ce{HSCH2CH(NH3+)CO2-}\) | Cys |
| Cystine | \(\ce{[SCH2CH(NH3+)CO2-]2}\) | – |
| Glutamic Acid | \(\ce{HO2CCH2CH2CH(NH3+)CO2-}\) | Glu |
| Glutamine | \(\ce{H2NCOCH2CH2CH(NH3+)CO2-}\) | Gln |
| Glycine | \(\ce{^{+}H3NCH2CO2-}\) | Gly |
| Histidine | (figure below) | His |
| Isoleucine | \(\ce{CH3CH2CH(CH3)CH(NH3+)CO2-}\) | Ile |
| Leucine | \(\ce{(CH3)2CHCH2CH(NH3+)CO2-}\) | Leu |
| Lysine | \(\ce{H2N(CH2)4CH(NH3+)CO2-}\) | Lys |
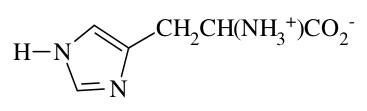
Table 1 (continued)
| Name | Formula | Three-letter symbol |
|---|---|---|
| Methionine | \(\ce{CH3SCH2CH2CH(NH3+)CO2-}\) | Met |
| Phenylalanine | \(\ce{PhCH2CH(NH3+)CO2-}\) | Phe |
| Proline | (first figure below) | Pro |
| Serine | \(\ce{HOCH2CH(NH3+)CO2-}\) | Ser |
| Threonine | \(\ce{CH3CH(OH)CH(NH3+)CO2-}\) | Thr |
| Tryptophan | (second figure below) | Trp |
| Tyrosine | (third figure below) | Tyr |
| Valine | \(\ce{(CH3)2CHCH(NH3+)CO2-}\) | Val |
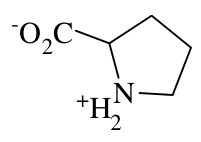
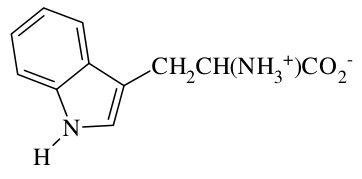
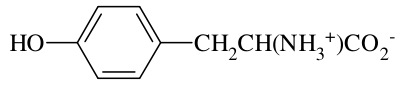
Table 2: \(\mathrm{p}K_\mathrm{a}\) of some important groups in amino acids
| Groups | Equilibrium | \(\mathrm{p}K_\mathrm{a}\) |
|---|---|---|
| Terminal carboxyl | (first figure below) | 3.1 |
| Asp /or Glu side-chain carboxyl | (second figure below) | 4.4 |
| His side-chain | (third figure below) | 6.5 |
| Terminal amino | (fourth figure below) | 8.0 |
| Cys side-chain | (fifth figure below) | 8.5 |
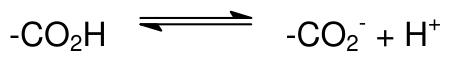
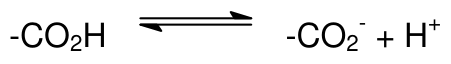
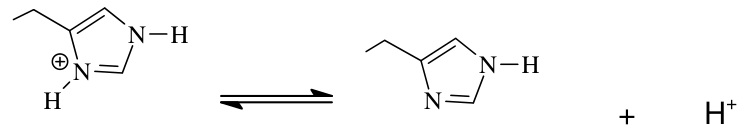
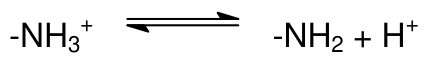
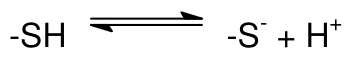
Table 2 (continued)
| Groups | Equilibrium | \(\mathrm{p}K_\mathrm{a}\) |
|---|---|---|
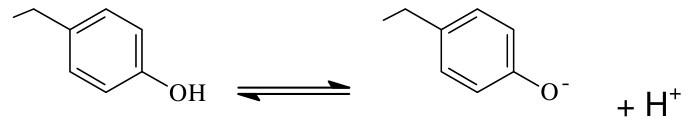
| Tyr side-chain | (first figure below) | 10.0 |
| Lys side-chain amino | (second figure below) | 10.0 |
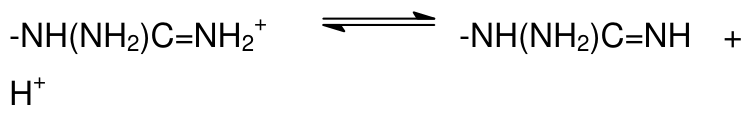
| Arg side-chain | (third figure below) | 12.0 |
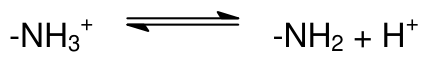
Official English text of the problem.
Answers
Peptide SMILES below use conventional natural L-residue stereochemistry and neutral functional-group representations.
-
6.1: Two sulfonic acid groups, \(\ce{-SO3H}\), per disulfide bond.
-
6.2: N-(2,4-dinitrophenyl)aspartic acid, shown as the neutral, nonzwitterionic form: \[ \ce{HOOC-CH2-CH[NH-C6H3(NO2)2]-COOH}, \] with the nitro groups at positions 2 and 4 relative to the nitrogen attachment.
SMILES: O=C(O)CC(Nc1ccc([N+](=O)[O-])cc1[N+](=O)[O-])C(=O)O
- 6.3: Peptide B8: \(\boxed{\ce{Cya-Tyr-Ile-Glu}}\), written from N- to C-terminus.
SMILES: N[C@@H](CS(=O)(=O)O)C(=O)N[C@@H](Cc1ccc(O)cc1)C(=O)N[C@@H]([C@@H](C)CC)C(=O)N[C@@H](CCC(=O)O)C(=O)O
- 6.4: Peptide B9: \(\boxed{\ce{Asp-Cya-Pro-Leu}}\).
SMILES: N[C@@H](CC(=O)O)C(=O)N[C@@H](CS(=O)(=O)O)C(=O)N1CCC[C@H]1C(=O)N[C@@H](CC(C)C)C(=O)O
- 6.5: Provisional peptide A: \[ \boxed{\ce{H-Cys-Tyr-Ile-Glu-Asp-Cys-Pro-Leu-Gly-NH2}} \] with a disulfide between Cys¹ and Cys⁶, a free N-terminal amino group, and a C-terminal carboxamide.
SMILES: N[C@@H](CS1)C(=O)N[C@@H](Cc2ccc(O)cc2)C(=O)N[C@@H]([C@@H](C)CC)C(=O)N[C@@H](CCC(=O)O)C(=O)N[C@@H](CC(=O)O)C(=O)N[C@@H](CS1)C(=O)N2CCC[C@H]2C(=O)N[C@@H](CC(C)C)C(=O)NCC(N)=O
- 6.6: Revised peptide A: \[ \boxed{\ce{H-Cys-Tyr-Ile-Gln-Asn-Cys-Pro-Leu-Gly-NH2}} \] retaining the Cys¹–Cys⁶ disulfide. Circle the three \(\ce{-C(=O)NH2}\) groups: the Gln⁴ side-chain amide, Asn⁵ side-chain amide, and Gly⁹ terminal amide.
SMILES: N[C@@H](CS1)C(=O)N[C@@H](Cc2ccc(O)cc2)C(=O)N[C@@H]([C@@H](C)CC)C(=O)N[C@@H](CCC(N)=O)C(=O)N[C@@H](CC(N)=O)C(=O)N[C@@H](CS1)C(=O)N2CCC[C@H]2C(=O)N[C@@H](CC(C)C)C(=O)NCC(N)=O
- 6.7: \(\boxed{\mathrm{pI}=9.0}\).
Solution
6.1
Oxidation converts each sulfur atom of a disulfide into a sulfonic acid group. Therefore one disulfide produces two such groups.
A balanced equation using the specified oxidant is
\[ \ce{R-S-S-R' + 5 HCO2OH + H2O -> R-SO3H + R'-SO3H + 5 HCO2H}. \]
Here performic acid is O=COO, formic acid is O=CO, and water is O.
Each cysteine-derived sulfur in the peptide consequently becomes a cysteic acid residue. Free L-cysteic acid, Cya, has SMILES N[C@@H](CS(=O)(=O)O)C(=O)O.
One molecule of cystine contains two amino-acid units. L-cystine has SMILES N[C@@H](CSSC[C@H](N)C(=O)O)C(=O)O. Thus the stated equimolar hydrolysis products correspond to nine residues: two cysteine residues and one of each of the other seven amino acids.
6.2
DNFB labels the free N-terminal amino group by nucleophilic aromatic substitution. For an N-terminal group represented by \(\ce{H2N-P}\), the formal balanced substitution is
\[ \ce{Ar-F + H2N-P -> Ar-NH-P + HF}, \]
where \(\ce{Ar}\) is the 2,4-dinitrophenyl group. DNFB is 1-fluoro-2,4-dinitrobenzene, Fc1ccc([N+](=O)[O-])cc1[N+](=O)[O-]; hydrogen fluoride is F. In the labeling medium, base takes up the acid produced.
Subsequent peptide-bond hydrolysis leaves the aryl–nitrogen bond intact. Obtaining DNP-Asp therefore identifies Asp as the N-terminal residue of B1.
The product is N-(2,4-dinitrophenyl)aspartic acid, whose SMILES is given in the answers. To draw it completely:
- Draw a benzene ring bearing the amino-acid nitrogen at position 1.
- Attach a nitro group at each of positions 2 and 4.
- Connect the nitrogen, bearing one hydrogen, to the aspartic-acid α-carbon.
- Attach \(\ce{-COOH}\), \(\ce{-CH2COOH}\), and hydrogen to that α-carbon.
The two nitro groups strongly reduce the basicity of the aryl-substituted nitrogen. The displayed net-neutral form therefore has an uncharged \(\ce{-NH-}\) group and two protonated carboxyl groups. No stereochemistry is assigned in this structure, as requested.
6.3
The composition of B8 is Cya, Tyr, Ile, and Glu. Its DNP derivative identifies Cya as its N-terminal residue.
The overlapping fragments are
\[ \begin{aligned} \mathrm{B2}&:\quad \ce{Cya-Tyr},\\ \mathrm{B6}&:\quad \ce{Tyr-Ile-Glu}. \end{aligned} \]
Their common Tyr residue joins them uniquely:
\[ \boxed{\mathrm{B8}=\ce{Cya-Tyr-Ile-Glu}}. \]
B4, \(\ce{Ile-Glu}\), independently confirms the final two residues.
6.4
B9 contains Asp, Cya, Pro, and Leu, with Asp at its N-terminus and Leu at its C-terminus.
B1 supplies \(\ce{Asp-Cya}\), while B5 supplies \(\ce{Cya-Pro-Leu}\). Joining at their common Cya gives
\[ \boxed{\mathrm{B9}=\ce{Asp-Cya-Pro-Leu}}. \]
This sequence satisfies both terminal identifications.
The hydrazinolysis used for C-terminal identification is an acyl substitution. Its general balanced form is
\[ \ce{R-C(=O)-NR'R'' + H2N-NH2 -> R-C(=O)-NH-NH2 + HNR'R''}. \]
Hydrazine has SMILES NN. Under the identification procedure described in the problem, the C-terminal amino acid retains its carboxyl group and is distinguished from the amino-acid hydrazides.
6.5
The three enzymatic fragments account for all nine residues:
\[ \begin{aligned} \mathrm{B8}&:\quad \ce{Cya-Tyr-Ile-Glu},\\ \mathrm{B9}&:\quad \ce{Asp-Cya-Pro-Leu},\\ \mathrm{B7}&:\quad \ce{Gly-NH2}. \end{aligned} \]
B7 is glycinamide, NCC(N)=O, so it establishes an amidated C-terminus.
The fragment B3, \(\ce{Leu-Gly}\), joins the end of B9 to B7. Consequently B9–B7 forms the C-terminal five-residue segment. B8 supplies the remaining N-terminal four residues, giving the provisional oxidized sequence
\[ \ce{Cya-Tyr-Ile-Glu-Asp-Cya-Pro-Leu-Gly-NH2}. \]
Reversing the structural consequence of oxidation replaces the Cya residues at positions 1 and 6 with disulfide-linked cysteine residues. Therefore
\[ \boxed{\ce{H-Cys-Tyr-Ile-Glu-Asp-Cys-Pro-Leu-Gly-NH2}}. \]
To indicate the disulfide precisely, connect the sulfur atoms of the two cysteine side chains, giving a side-chain linkage
\[ \ce{-CH2-S-S-CH2-} \]
between residues 1 and 6. The N-terminal amino group remains free. The SMILES in answer 6.5 explicitly encodes this intramolecular bond.
6.6
Acid hydrolysis converts a primary carboxamide into a carboxylic acid and ammonia. The formal balanced equation is
\[ \ce{R-C(=O)-NH2 + H2O -> R-C(=O)-OH + NH3}. \]
The primary-amide fragment is *C(N)=O, the carboxylic-acid fragment is *C(=O)O, and ammonia is N; the asterisk denotes the remainder of the structure. In the acidic hydrolysate, the released ammonia is protonated to ammonium, [NH4+].
The known terminal glycinamide accounts for one equivalent of ammonia. The remaining two equivalents require two additional primary amides.
Asp and Glu in an acid hydrolysate can arise from hydrolysis of the corresponding side-chain amides:
\[ \begin{aligned} \text{Asn side chain:}\quad& \ce{-CH2-C(=O)-NH2 -> -CH2-C(=O)-OH},\\ \text{Gln side chain:}\quad& \ce{-CH2-CH2-C(=O)-NH2 -> -CH2-CH2-C(=O)-OH}. \end{aligned} \]
These transformations follow the balanced hydrolysis equation above. Thus the original residues were Gln⁴ and Asn⁵.
The mass difference supports exactly these two replacements. Replacing \(\ce{-COOH}\) by \(\ce{-CONH2}\) replaces \(\ce{OH}\) by \(\ce{NH2}\), decreasing the molar mass by approximately
\[ (14+2)-(16+1)=-1\ \mathrm{g\,mol^{-1}}. \]
Two replacements decrease the molar mass by approximately \(2\ \mathrm{g\,mol^{-1}}\), matching the stated difference:
\[ M_r(\text{revised A})\simeq1009-2=1007. \]
Hence the revised structure is
\[ \boxed{\ce{H-Cys-Tyr-Ile-Gln-Asn-Cys-Pro-Leu-Gly-NH2}}, \]
with the same Cys¹–Cys⁶ disulfide.
The three sites to circle are:
- Gln⁴: the side-chain \(\ce{-CH2CH2C(=O)NH2}\).
- Asn⁵: the side-chain \(\ce{-CH2C(=O)NH2}\).
- Gly⁹: the terminal \(\ce{-C(=O)NH2}\).
Each yields one equivalent of ammonia. The backbone peptide nitrogens remain attached to their respective amino-acid products during hydrolysis.
6.7
In the revised structure, the relevant ionizable groups from Table 2 are:
| Group in A | \(\mathrm{p}K_\mathrm{a}\) | Charge change on deprotonation |
|---|---|---|
| Free N-terminal amino group | 8.0 | \(+1\rightarrow0\) |
| Tyr phenolic group | 10.0 | \(0\rightarrow-1\) |
The C-terminus is amidated, and the Gln and Asn side chains are amides. The two cysteine sulfur atoms form a disulfide, so there are no free thiol groups.
The electrically neutral form lies between loss of the N-terminal ammonium proton and loss of the Tyr phenolic proton. Therefore
\[ \boxed{\mathrm{pI}=\frac{8.0+10.0}{2}=9.0}. \]
More explicitly, the mean charge under the supplied ionization model is
\[ \bar z= \frac{1}{1+10^{\mathrm{pH}-8.0}} - \frac{1}{1+10^{10.0-\mathrm{pH}}}. \]
At \(\mathrm{pH}=9.0\), the positive and negative contributions both have magnitude \(1/11\), so \(\bar z=0\).
The solution was checked against the official solution.
IChO 1999 · Theorieaufgabe 6
Sequenz von Peptid A
Peptid A hat eine relative Molekülmasse von 1007. Bei vollständiger saurer Hydrolyse entstehen die folgenden Aminosäuren in äquimolaren Mengen: Asp, Cystin, Glu, Gly, Ile, Leu, Pro und Tyr (siehe Tabelle 1). Die Oxidation von A mit \(\ce{HCO2OH}\) ergibt ausschließlich B, das zwei Cysteinsäurereste enthält (Cya, ein Cysteinderivat, dessen Thiolgruppe zur Sulfonsäuregruppe oxidiert ist).
6.1 Wie viele Sulfonsäuregruppen entstehen bei der Oxidation einer Disulfidbindung?
Die partielle Hydrolyse von B ergibt eine Reihe von Di- und Tripeptiden (B1-B6). Die Sequenz jedes Hydrolyseprodukts wird auf die folgenden Arten bestimmt.
Die N-terminale Aminosäure wird identifiziert, indem das Peptid mit 2,4-Dinitrofluorbenzol (DNFB) zum DNP-Peptid umgesetzt wird. Nach vollständiger saurer Hydrolyse des DNP-Peptids erhält man eine DNP-Aminosäure, die sich durch Vergleich mit DNP-Aminosäurestandards leicht identifizieren lässt.
6.2 B1 liefert bei der Umsetzung mit DNFB und anschließender saurer Hydrolyse das Produkt DNP-Asp. Dies deutet darauf hin, dass B1 Asparaginsäure am N-Terminus besitzt. Geben Sie die vollständige Struktur von DNP-Asp an seinem isoelektrischen Punkt an (keine Angabe der Stereochemie erforderlich).
Als Nächstes wird die C-terminale Aminosäure identifiziert, indem das Peptid mit Hydrazin auf \(100\,^\circ\mathrm{C}\) erhitzt wird. Dabei werden alle Peptidbindungen gespalten und alle Aminosäuren mit Ausnahme der C-terminalen Aminosäure in Aminosäurehydrazide umgewandelt; die C-terminale Carboxylgruppe bleibt intakt.
Auf diese Weise werden die N- und C-terminalen Aminosäuren identifiziert; die vollständigen Sequenzen von B1-B6 sind nachstehend angegeben:
| B1 | Asp-Cya | B4 | Ile-Glu |
| B2 | Cya-Tyr | B5 | Cya-Pro-Leu |
| B3 | Leu-Gly | B6 | Tyr-Ile-Glu |
Die Hydrolyse von B mit einem Enzym aus Bacillus subtilis ergibt B7-B9 mit den folgenden Zusammensetzungen:
| B7 | \(\ce{Gly-NH2}\) (Glycinamid) |
| B8 | Cya, Glu, Ile, Tyr |
| B9 | Asp, Cya, Leu, Pro |
6.3 Geben Sie die Sequenz von B8 an, wenn bei der Umsetzung von B8 mit DNFB und anschließender vollständiger saurer Hydrolyse DNP-Cya erhalten wird.
6.4 Geben Sie die Sequenz von B9 an, wenn dessen N- und C-terminale Aminosäuren als Asp bzw. Leu identifiziert werden.
6.5 Geben Sie die vollständige Struktur von A unter Verwendung der Abkürzungen in Tabelle 1 an und kennzeichnen Sie die Position der Disulfidbindung.
Die auf Grundlage der obigen Sequenz berechnete relative Molekülmasse von A ist jedoch um 2 Masseneinheiten höher als der experimentelle Wert. Bei genauer Untersuchung des Gemischs aus der vollständigen sauren Hydrolyse von A zeigt sich, dass zusätzlich zu den ursprünglich nachgewiesenen Aminosäuren auch 3 molare Äquivalente Ammoniak entstehen.
6.6 Schlagen Sie die korrigierte Struktur von A vor und kreisen Sie die Stellen in der Struktur ein, um alle möglichen Quellen des Ammoniaks zu kennzeichnen.
6.7 Berechnen Sie anhand der Angaben in Tabelle 2 den isoelektrischen Punkt von A.
Tabelle 1: Formeln und Symbole gängiger Aminosäuren am isoelektrischen Punkt
| Name | Formel | Dreibuchstabensymbol |
|---|---|---|
| Alanin | \(\ce{CH3CH(NH3+)CO2-}\) | Ala |
| Arginin | \(\ce{H2NC(=NH)NH(CH2)3CH(NH3+)CO2-}\) | Arg |
| Asparagin | \(\ce{H2NCOCH2CH(NH3+)CO2-}\) | Asn |
| Asparaginsäure | \(\ce{HO2CCH2CH(NH3+)CO2-}\) | Asp |
| Cystein | \(\ce{HSCH2CH(NH3+)CO2-}\) | Cys |
| Cystin | \(\ce{[SCH2CH(NH3+)CO2-]2}\) | – |
| Glutaminsäure | \(\ce{HO2CCH2CH2CH(NH3+)CO2-}\) | Glu |
| Glutamin | \(\ce{H2NCOCH2CH2CH(NH3+)CO2-}\) | Gln |
| Glycin | \(\ce{^{+}H3NCH2CO2-}\) | Gly |
| Histidin | (Abbildung unten) | His |
| Isoleucin | \(\ce{CH3CH2CH(CH3)CH(NH3+)CO2-}\) | Ile |
| Leucin | \(\ce{(CH3)2CHCH2CH(NH3+)CO2-}\) | Leu |
| Lysin | \(\ce{H2N(CH2)4CH(NH3+)CO2-}\) | Lys |
Tabelle 1 (Fortsetzung)
| Name | Formel | Dreibuchstabensymbol |
|---|---|---|
| Methionin | \(\ce{CH3SCH2CH2CH(NH3+)CO2-}\) | Met |
| Phenylalanin | \(\ce{PhCH2CH(NH3+)CO2-}\) | Phe |
| Prolin | (erste Abbildung unten) | Pro |
| Serin | \(\ce{HOCH2CH(NH3+)CO2-}\) | Ser |
| Threonin | \(\ce{CH3CH(OH)CH(NH3+)CO2-}\) | Thr |
| Tryptophan | (zweite Abbildung unten) | Trp |
| Tyrosin | (dritte Abbildung unten) | Tyr |
| Valin | \(\ce{(CH3)2CHCH(NH3+)CO2-}\) | Val |
Tabelle 2: \(\mathrm{p}K_\mathrm{a}\)-Werte einiger wichtiger Gruppen in Aminosäuren
| Gruppen | Gleichgewicht | \(\mathrm{p}K_\mathrm{a}\) |
|---|---|---|
| Terminale Carboxylgruppe | (erste Abbildung unten) | 3.1 |
| Carboxylgruppe der Asp- oder Glu-Seitenkette | (zweite Abbildung unten) | 4.4 |
| His-Seitenkette | (dritte Abbildung unten) | 6.5 |
| Terminale Aminogruppe | (vierte Abbildung unten) | 8.0 |
| Cys-Seitenkette | (fünfte Abbildung unten) | 8.5 |
Tabelle 2 (Fortsetzung)
| Gruppen | Gleichgewicht | \(\mathrm{p}K_\mathrm{a}\) |
|---|---|---|
| Tyr-Seitenkette | (erste Abbildung unten) | 10.0 |
| Aminogruppe der Lys-Seitenkette | (zweite Abbildung unten) | 10.0 |
| Arg-Seitenkette | (dritte Abbildung unten) | 12.0 |
Aufgabentext aus dem offiziellen englischen Text übersetzt.
Antworten
Die nachstehenden Peptid-SMILES verwenden die konventionelle Stereochemie natürlicher L-Aminosäurereste und neutrale Darstellungen der funktionellen Gruppen.
-
6.1: Zwei Sulfonsäuregruppen, \(\ce{-SO3H}\), pro Disulfidbindung.
-
6.2: N-(2,4-Dinitrophenyl)asparaginsäure, dargestellt in der neutralen, nicht zwitterionischen Form: \[ \ce{HOOC-CH2-CH[NH-C6H3(NO2)2]-COOH}, \] mit den Nitrogruppen an den Positionen 2 und 4 relativ zur Bindungsstelle des Stickstoffs.
SMILES: O=C(O)CC(Nc1ccc([N+](=O)[O-])cc1[N+](=O)[O-])C(=O)O
- 6.3: Peptid B8: \(\boxed{\ce{Cya-Tyr-Ile-Glu}}\), vom N- zum C-Terminus geschrieben.
SMILES: N[C@@H](CS(=O)(=O)O)C(=O)N[C@@H](Cc1ccc(O)cc1)C(=O)N[C@@H]([C@@H](C)CC)C(=O)N[C@@H](CCC(=O)O)C(=O)O
- 6.4: Peptid B9: \(\boxed{\ce{Asp-Cya-Pro-Leu}}\).
SMILES: N[C@@H](CC(=O)O)C(=O)N[C@@H](CS(=O)(=O)O)C(=O)N1CCC[C@H]1C(=O)N[C@@H](CC(C)C)C(=O)O
- 6.5: Vorläufiges Peptid A: \[ \boxed{\ce{H-Cys-Tyr-Ile-Glu-Asp-Cys-Pro-Leu-Gly-NH2}} \] mit einer Disulfidbindung zwischen Cys¹ und Cys⁶, einer freien N-terminalen Aminogruppe und einer C-terminalen Carboxamidgruppe.
SMILES: N[C@@H](CS1)C(=O)N[C@@H](Cc2ccc(O)cc2)C(=O)N[C@@H]([C@@H](C)CC)C(=O)N[C@@H](CCC(=O)O)C(=O)N[C@@H](CC(=O)O)C(=O)N[C@@H](CS1)C(=O)N2CCC[C@H]2C(=O)N[C@@H](CC(C)C)C(=O)NCC(N)=O
- 6.6: Korrigiertes Peptid A: \[ \boxed{\ce{H-Cys-Tyr-Ile-Gln-Asn-Cys-Pro-Leu-Gly-NH2}} \] unter Beibehaltung der Cys¹–Cys⁶-Disulfidbindung. Kreisen Sie die drei \(\ce{-C(=O)NH2}\)-Gruppen ein: die Amidgruppe der Gln⁴-Seitenkette, die Amidgruppe der Asn⁵-Seitenkette und die terminale Amidgruppe von Gly⁹.
SMILES: N[C@@H](CS1)C(=O)N[C@@H](Cc2ccc(O)cc2)C(=O)N[C@@H]([C@@H](C)CC)C(=O)N[C@@H](CCC(N)=O)C(=O)N[C@@H](CC(N)=O)C(=O)N[C@@H](CS1)C(=O)N2CCC[C@H]2C(=O)N[C@@H](CC(C)C)C(=O)NCC(N)=O
- 6.7: \(\boxed{\mathrm{pI}=9.0}\).
Lösung
6.1
Bei der Oxidation wird jedes Schwefelatom einer Disulfidbindung in eine Sulfonsäuregruppe überführt. Daher entstehen aus einer Disulfidbindung zwei solche Gruppen.
Eine ausgeglichene Reaktionsgleichung mit dem angegebenen Oxidationsmittel lautet
\[ \ce{R-S-S-R' + 5 HCO2OH + H2O -> R-SO3H + R'-SO3H + 5 HCO2H}. \]
Dabei ist Perameisensäure O=COO, Ameisensäure O=CO und Wasser O.
Jedes von Cystein stammende Schwefelatom im Peptid wird folglich Bestandteil eines Cysteinsäurerests. Freie L-Cysteinsäure, Cya, hat den SMILES N[C@@H](CS(=O)(=O)O)C(=O)O.
Ein Molekül Cystin enthält zwei Aminosäureeinheiten. L-Cystin hat den SMILES N[C@@H](CSSC[C@H](N)C(=O)O)C(=O)O. Die angegebenen äquimolaren Hydrolyseprodukte entsprechen somit neun Resten: zwei Cysteinresten und je einem Rest der anderen sieben Aminosäuren.
6.2
DNFB markiert die freie N-terminale Aminogruppe durch nucleophile aromatische Substitution. Für eine durch \(\ce{H2N-P}\) dargestellte N-terminale Gruppe lautet die formale ausgeglichene Substitutionsgleichung
\[ \ce{Ar-F + H2N-P -> Ar-NH-P + HF}, \]
wobei \(\ce{Ar}\) die 2,4-Dinitrophenylgruppe ist. DNFB ist 1-Fluor-2,4-dinitrobenzol, Fc1ccc([N+](=O)[O-])cc1[N+](=O)[O-]; Fluorwasserstoff ist F. Im Reaktionsmedium der Markierung nimmt eine Base die gebildete Säure auf.
Bei der anschließenden Hydrolyse der Peptidbindungen bleibt die Aryl–Stickstoff-Bindung intakt. Der Erhalt von DNP-Asp identifiziert daher Asp als N-terminalen Rest von B1.
Das Produkt ist N-(2,4-Dinitrophenyl)asparaginsäure, deren SMILES in den Antworten angegeben ist. So lässt sich die vollständige Struktur zeichnen:
- Zeichnen Sie einen Benzolring, der an Position 1 den Aminosäurestickstoff trägt.
- Fügen Sie an den Positionen 2 und 4 jeweils eine Nitrogruppe an.
- Verbinden Sie den Stickstoff, der ein Wasserstoffatom trägt, mit dem α-Kohlenstoffatom der Asparaginsäure.
- Fügen Sie \(\ce{-COOH}\), \(\ce{-CH2COOH}\) und ein Wasserstoffatom an dieses α-Kohlenstoffatom an.
Die beiden Nitrogruppen verringern die Basizität des arylsubstituierten Stickstoffs stark. Die dargestellte, insgesamt neutrale Form besitzt daher eine ungeladene \(\ce{-NH-}\)-Gruppe und zwei protonierte Carboxylgruppen. Wie gefordert wird in dieser Struktur keine Stereochemie festgelegt.
6.3
B8 besteht aus Cya, Tyr, Ile und Glu. Sein DNP-Derivat identifiziert Cya als seinen N-terminalen Rest.
Die überlappenden Fragmente sind
\[ \begin{aligned} \mathrm{B2}&:\quad \ce{Cya-Tyr},\\ \mathrm{B6}&:\quad \ce{Tyr-Ile-Glu}. \end{aligned} \]
Ihr gemeinsamer Tyr-Rest verknüpft sie eindeutig:
\[ \boxed{\mathrm{B8}=\ce{Cya-Tyr-Ile-Glu}}. \]
B4, \(\ce{Ile-Glu}\), bestätigt unabhängig davon die letzten beiden Reste.
6.4
B9 enthält Asp, Cya, Pro und Leu, mit Asp am N-Terminus und Leu am C-Terminus.
B1 liefert \(\ce{Asp-Cya}\), während B5 \(\ce{Cya-Pro-Leu}\) liefert. Die Verknüpfung über ihren gemeinsamen Cya-Rest ergibt
\[ \boxed{\mathrm{B9}=\ce{Asp-Cya-Pro-Leu}}. \]
Diese Sequenz stimmt mit beiden identifizierten terminalen Aminosäuren überein.
Die zur Identifizierung des C-Terminus verwendete Hydrazinolyse ist eine Acylsubstitution. Ihre allgemeine ausgeglichene Reaktionsgleichung lautet
\[ \ce{R-C(=O)-NR'R'' + H2N-NH2 -> R-C(=O)-NH-NH2 + HNR'R''}. \]
Hydrazin hat den SMILES NN. Bei dem in der Aufgabe beschriebenen Identifizierungsverfahren behält die C-terminale Aminosäure ihre Carboxylgruppe und lässt sich von den Aminosäurehydraziden unterscheiden.
6.5
Die drei enzymatisch erhaltenen Fragmente umfassen alle neun Reste:
\[ \begin{aligned} \mathrm{B8}&:\quad \ce{Cya-Tyr-Ile-Glu},\\ \mathrm{B9}&:\quad \ce{Asp-Cya-Pro-Leu},\\ \mathrm{B7}&:\quad \ce{Gly-NH2}. \end{aligned} \]
B7 ist Glycinamid, NCC(N)=O, und belegt somit einen amidierten C-Terminus.
Das Fragment B3, \(\ce{Leu-Gly}\), verknüpft das Ende von B9 mit B7. Folglich bildet B9–B7 das C-terminale Segment aus fünf Resten. B8 liefert die übrigen vier N-terminalen Reste, woraus sich die vorläufige oxidierte Sequenz ergibt:
\[ \ce{Cya-Tyr-Ile-Glu-Asp-Cya-Pro-Leu-Gly-NH2}. \]
Macht man die strukturelle Veränderung durch die Oxidation rückgängig, werden die Cya-Reste an den Positionen 1 und 6 durch über eine Disulfidbindung verknüpfte Cysteinreste ersetzt. Daher ergibt sich
\[ \boxed{\ce{H-Cys-Tyr-Ile-Glu-Asp-Cys-Pro-Leu-Gly-NH2}}. \]
Um die Disulfidbindung genau anzugeben, verbindet man die Schwefelatome der beiden Cysteinseitenketten, sodass eine Seitenkettenverknüpfung
\[ \ce{-CH2-S-S-CH2-} \]
zwischen den Resten 1 und 6 entsteht. Die N-terminale Aminogruppe bleibt frei. Der SMILES in Antwort 6.5 codiert diese intramolekulare Bindung ausdrücklich.
6.6
Die saure Hydrolyse wandelt ein primäres Carboxamid in eine Carbonsäure und Ammoniak um. Die formale ausgeglichene Reaktionsgleichung lautet
\[ \ce{R-C(=O)-NH2 + H2O -> R-C(=O)-OH + NH3}. \]
Das Fragment des primären Amids ist *C(N)=O, das Carbonsäurefragment ist *C(=O)O und Ammoniak ist N; das Sternchen bezeichnet den Rest der Struktur. Im sauren Hydrolysat wird der freigesetzte Ammoniak zu Ammonium, [NH4+], protoniert.
Das bekannte terminale Glycinamid erklärt ein Äquivalent Ammoniak. Die übrigen zwei Äquivalente erfordern zwei zusätzliche primäre Amidgruppen.
Asp und Glu in einem sauren Hydrolysat können durch Hydrolyse der entsprechenden Seitenkettenamide entstehen:
\[ \begin{aligned} \text{Asn-Seitenkette:}\quad& \ce{-CH2-C(=O)-NH2 -> -CH2-C(=O)-OH},\\ \text{Gln-Seitenkette:}\quad& \ce{-CH2-CH2-C(=O)-NH2 -> -CH2-CH2-C(=O)-OH}. \end{aligned} \]
Diese Umwandlungen folgen der obigen ausgeglichenen Hydrolysegleichung. Die ursprünglichen Reste waren somit Gln⁴ und Asn⁵.
Die Massendifferenz stützt genau diese beiden Ersetzungen. Beim Ersetzen von \(\ce{-COOH}\) durch \(\ce{-CONH2}\) wird \(\ce{OH}\) durch \(\ce{NH2}\) ersetzt, wodurch die molare Masse um ungefähr den folgenden Betrag abnimmt:
\[ (14+2)-(16+1)=-1\ \mathrm{g\,mol^{-1}}. \]
Zwei Ersetzungen verringern die molare Masse um ungefähr \(2\ \mathrm{g\,mol^{-1}}\), was der angegebenen Differenz entspricht:
\[ M_r(\text{korrigiertes A})\simeq1009-2=1007. \]
Die korrigierte Struktur lautet daher
\[ \boxed{\ce{H-Cys-Tyr-Ile-Gln-Asn-Cys-Pro-Leu-Gly-NH2}}, \]
mit derselben Cys¹–Cys⁶-Disulfidbindung.
Die drei einzukreisenden Stellen sind:
- Gln⁴: die Seitenkettengruppe \(\ce{-CH2CH2C(=O)NH2}\).
- Asn⁵: die Seitenkettengruppe \(\ce{-CH2C(=O)NH2}\).
- Gly⁹: die terminale Gruppe \(\ce{-C(=O)NH2}\).
Jede liefert ein Äquivalent Ammoniak. Die Stickstoffatome der Peptidhauptkette bleiben während der Hydrolyse an ihre jeweiligen Aminosäureprodukte gebunden.
6.7
In der korrigierten Struktur sind die relevanten ionisierbaren Gruppen aus Tabelle 2:
| Gruppe in A | \(\mathrm{p}K_\mathrm{a}\) | Ladungsänderung bei Deprotonierung |
|---|---|---|
| Freie N-terminale Aminogruppe | 8.0 | \(+1\rightarrow0\) |
| Phenolische Gruppe von Tyr | 10.0 | \(0\rightarrow-1\) |
Der C-Terminus ist amidiert, und die Seitenketten von Gln und Asn sind Amide. Die beiden Schwefelatome der Cysteinreste bilden eine Disulfidbindung, sodass keine freien Thiolgruppen vorliegen.
Die elektrisch neutrale Form liegt zwischen der Abgabe des Protons der N-terminalen Ammoniumgruppe und der Abgabe des phenolischen Protons von Tyr. Daher gilt
\[ \boxed{\mathrm{pI}=\frac{8.0+10.0}{2}=9.0}. \]
Genauer ausgedrückt beträgt die mittlere Ladung im Rahmen des vorgegebenen Ionisierungsmodells
\[ \bar z= \frac{1}{1+10^{\mathrm{pH}-8.0}} - \frac{1}{1+10^{10.0-\mathrm{pH}}}. \]
Bei \(\mathrm{pH}=9.0\) haben der positive und der negative Beitrag jeweils den Betrag \(1/11\), sodass \(\bar z=0\).
Die Lösung wurde mit der offiziellen Lösung abgeglichen.
IChO 1999 · Teori sorusu 6
A peptidinin dizisi
A peptidinin molekül ağırlığı 1007'dir. Tam asit hidrolizi sonucunda şu amino asitler eşmolar miktarlarda elde edilir: Asp, sistin, Glu, Gly, Ile, Leu, Pro ve Tyr (bkz. Tablo 1). A'nın \(\ce{HCO2OH}\) ile yükseltgenmesi, iki sisteik asit kalıntısı (Cya; tiyol grubu sülfonik aside yükseltgenmiş bir sistein türevi) içeren yalnızca B'yi verir.
6.1 Bir disülfit bağının yükseltgenmesi sonucunda kaç sülfonik asit grubu oluşur?
B'nin kısmi hidrolizi bir dizi dipeptit ve tripeptit (B1-B6) verir. Her bir hidroliz ürününün dizisi aşağıdaki yöntemlerle belirlenir.
N-ucundaki amino asit, peptidin 2,4-dinitroflorobenzen (DNFB) ile tepkimeye sokularak DNP-peptit elde edilmesiyle tanımlanır. DNP-peptidin tam asit hidrolizinden sonra, standart DNP-amino asitlerle karşılaştırılarak kolayca tanımlanabilen bir DNP-amino asit elde edilir.
6.2 B1, DNFB ile tepkimeye sokulup ardından asit hidrolizine uğratıldığında DNP-Asp ürünü elde edilir. Bu, B1'in N-ucunda aspartik asit bulunduğunu gösterir. DNP-Asp'nin izoelektrik noktasındaki tam yapısını yazınız (stereokimya gerekli değildir).
Ardından C-ucundaki amino asit, peptidin hidrazin ile \(100\,^\circ\mathrm{C}\)'de ısıtılmasıyla tanımlanır. Hidrazin, tüm peptit bağlarını koparır ve C-ucundaki amino asit dışındaki tüm amino asitleri amino asit hidrazitlerine dönüştürürken C-ucundaki karboksil grubunu olduğu gibi bırakır.
Bu şekilde N- ve C-uçlarındaki amino asitler tanımlanır ve B1-B6'nın tam dizileri aşağıdaki gibi bulunur:
| B1 | Asp-Cya | B4 | Ile-Glu |
| B2 | Cya-Tyr | B5 | Cya-Pro-Leu |
| B3 | Leu-Gly | B6 | Tyr-Ile-Glu |
B'nin Bacillus subtilis'ten elde edilen bir enzimle hidrolizi, aşağıdaki bileşimlere sahip B7-B9'u verir:
| B7 | \(\ce{Gly-NH2}\) (Glisinamid) |
| B8 | Cya, Glu, Ile, Tyr |
| B9 | Asp, Cya, Leu, Pro |
6.3 B8'in DNFB ile tepkimeye sokulup ardından tam asit hidrolizine uğratılması sonucunda DNP-Cya elde ediliyorsa B8'in dizisini yazınız.
6.4 B9'un N- ve C-uçlarındaki amino asitler sırasıyla Asp ve Leu olarak tanımlanmışsa B9'un dizisini yazınız.
6.5 Tablo 1'deki kısaltmaları kullanarak A'nın tam yapısını, disülfit bağının konumunu belirterek yazınız.
Ancak yukarıdaki diziye dayanılarak hesaplanan A'nın molekül ağırlığı, deneysel değerden 2 kütle birimi daha yüksektir. A'nın tam asit hidrolizinden elde edilen karışım dikkatle incelendiğinde, başlangıçta saptanan amino asitlere ek olarak 3 molar eşdeğer amonyak da oluştuğu görülür.
6.6 A için düzeltilmiş bir yapı öneriniz ve amonyağın tüm olası kaynaklarını belirtmek üzere yapıdaki ilgili bölgeyi veya bölgeleri daire içine alınız.
6.7 Tablo 2'deki bilgileri kullanarak A'nın izoelektrik noktasını hesaplayınız.
Tablo 1: Yaygın amino asitlerin izoelektrik noktadaki formülleri ve simgeleri
| Adı | Formülü | Üç harfli simgesi |
|---|---|---|
| Alanin | \(\ce{CH3CH(NH3+)CO2-}\) | Ala |
| Arjinin | \(\ce{H2NC(=NH)NH(CH2)3CH(NH3+)CO2-}\) | Arg |
| Asparajin | \(\ce{H2NCOCH2CH(NH3+)CO2-}\) | Asn |
| Aspartik asit | \(\ce{HO2CCH2CH(NH3+)CO2-}\) | Asp |
| Sistein | \(\ce{HSCH2CH(NH3+)CO2-}\) | Cys |
| Sistin | \(\ce{[SCH2CH(NH3+)CO2-]2}\) | – |
| Glutamik asit | \(\ce{HO2CCH2CH2CH(NH3+)CO2-}\) | Glu |
| Glutamin | \(\ce{H2NCOCH2CH2CH(NH3+)CO2-}\) | Gln |
| Glisin | \(\ce{^{+}H3NCH2CO2-}\) | Gly |
| Histidin | (aşağıdaki şekil) | His |
| İzolösin | \(\ce{CH3CH2CH(CH3)CH(NH3+)CO2-}\) | Ile |
| Lösin | \(\ce{(CH3)2CHCH2CH(NH3+)CO2-}\) | Leu |
| Lizin | \(\ce{H2N(CH2)4CH(NH3+)CO2-}\) | Lys |
Tablo 1 (devamı)
| Adı | Formülü | Üç harfli simgesi |
|---|---|---|
| Metiyonin | \(\ce{CH3SCH2CH2CH(NH3+)CO2-}\) | Met |
| Fenilalanin | \(\ce{PhCH2CH(NH3+)CO2-}\) | Phe |
| Prolin | (aşağıdaki ilk şekil) | Pro |
| Serin | \(\ce{HOCH2CH(NH3+)CO2-}\) | Ser |
| Treonin | \(\ce{CH3CH(OH)CH(NH3+)CO2-}\) | Thr |
| Triptofan | (aşağıdaki ikinci şekil) | Trp |
| Tirozin | (aşağıdaki üçüncü şekil) | Tyr |
| Valin | \(\ce{(CH3)2CHCH(NH3+)CO2-}\) | Val |
Tablo 2: Amino asitlerdeki bazı önemli grupların \(\mathrm{p}K_\mathrm{a}\) değerleri
| Gruplar | Denge | \(\mathrm{p}K_\mathrm{a}\) |
|---|---|---|
| Uç karboksil grubu | (aşağıdaki ilk şekil) | 3.1 |
| Asp veya Glu yan zincir karboksil grubu | (aşağıdaki ikinci şekil) | 4.4 |
| His yan zinciri | (aşağıdaki üçüncü şekil) | 6.5 |
| Uç amino grubu | (aşağıdaki dördüncü şekil) | 8.0 |
| Cys yan zinciri | (aşağıdaki beşinci şekil) | 8.5 |
Tablo 2 (devamı)
| Gruplar | Denge | \(\mathrm{p}K_\mathrm{a}\) |
|---|---|---|
| Tyr yan zinciri | (aşağıdaki ilk şekil) | 10.0 |
| Lys yan zincir amino grubu | (aşağıdaki ikinci şekil) | 10.0 |
| Arg yan zinciri | (aşağıdaki üçüncü şekil) | 12.0 |
Soru metni resmi İngilizce metinden çevrilmiştir.
Cevaplar
Aşağıdaki peptit SMILES gösterimlerinde, doğal L-kalıntılarının alışılmış stereokimyası ve fonksiyonel grupların nötr gösterimleri kullanılmıştır.
-
6.1: Disülfit bağı başına iki sülfonik asit grubu, \(\ce{-SO3H}\).
-
6.2: Nötr, zwitteriyonik olmayan biçimde gösterilen N-(2,4-dinitrofenil)aspartik asit: \[ \ce{HOOC-CH2-CH[NH-C6H3(NO2)2]-COOH}, \] nitro grupları, azotun bağlandığı konuma göre 2 ve 4 konumlarındadır.
SMILES: O=C(O)CC(Nc1ccc([N+](=O)[O-])cc1[N+](=O)[O-])C(=O)O
- 6.3: B8 peptidi: N-ucundan C-ucuna doğru yazılmış olarak \(\boxed{\ce{Cya-Tyr-Ile-Glu}}\).
SMILES: N[C@@H](CS(=O)(=O)O)C(=O)N[C@@H](Cc1ccc(O)cc1)C(=O)N[C@@H]([C@@H](C)CC)C(=O)N[C@@H](CCC(=O)O)C(=O)O
- 6.4: B9 peptidi: \(\boxed{\ce{Asp-Cya-Pro-Leu}}\).
SMILES: N[C@@H](CC(=O)O)C(=O)N[C@@H](CS(=O)(=O)O)C(=O)N1CCC[C@H]1C(=O)N[C@@H](CC(C)C)C(=O)O
- 6.5: A peptidinin geçici yapısı: \[ \boxed{\ce{H-Cys-Tyr-Ile-Glu-Asp-Cys-Pro-Leu-Gly-NH2}} \] Cys¹ ve Cys⁶ arasında bir disülfit bağı, N-ucunda serbest bir amino grubu ve C-ucunda bir karboksamit grubu bulunur.
SMILES: N[C@@H](CS1)C(=O)N[C@@H](Cc2ccc(O)cc2)C(=O)N[C@@H]([C@@H](C)CC)C(=O)N[C@@H](CCC(=O)O)C(=O)N[C@@H](CC(=O)O)C(=O)N[C@@H](CS1)C(=O)N2CCC[C@H]2C(=O)N[C@@H](CC(C)C)C(=O)NCC(N)=O
- 6.6: A peptidinin düzeltilmiş yapısı: \[ \boxed{\ce{H-Cys-Tyr-Ile-Gln-Asn-Cys-Pro-Leu-Gly-NH2}} \] Cys¹–Cys⁶ disülfit bağı korunur. Üç \(\ce{-C(=O)NH2}\) grubunu daire içine alınız: Gln⁴ yan zincir amit grubu, Asn⁵ yan zincir amit grubu ve Gly⁹ uç amit grubu.
SMILES: N[C@@H](CS1)C(=O)N[C@@H](Cc2ccc(O)cc2)C(=O)N[C@@H]([C@@H](C)CC)C(=O)N[C@@H](CCC(N)=O)C(=O)N[C@@H](CC(N)=O)C(=O)N[C@@H](CS1)C(=O)N2CCC[C@H]2C(=O)N[C@@H](CC(C)C)C(=O)NCC(N)=O
- 6.7: \(\boxed{\mathrm{pI}=9.0}\).
Çözüm
6.1
Yükseltgenme, bir disülfit bağındaki her kükürt atomunu bir sülfonik asit grubuna dönüştürür. Dolayısıyla bir disülfit bağı bu gruplardan iki tane oluşturur.
Belirtilen yükseltgenin kullanıldığı denkleştirilmiş tepkime şöyledir:
\[ \ce{R-S-S-R' + 5 HCO2OH + H2O -> R-SO3H + R'-SO3H + 5 HCO2H}. \]
Burada performik asit O=COO, formik asit O=CO ve su O ile gösterilir.
Böylece peptitteki sistein kökenli her kükürt, bir sisteik asit kalıntısının parçası hâline gelir. Serbest L-sisteik asidin, Cya, SMILES gösterimi N[C@@H](CS(=O)(=O)O)C(=O)O şeklindedir.
Bir sistin molekülü iki amino asit birimi içerir. L-sistinin SMILES gösterimi N[C@@H](CSSC[C@H](N)C(=O)O)C(=O)O şeklindedir. Dolayısıyla belirtilen eşmolar hidroliz ürünleri dokuz kalıntıya karşılık gelir: iki sistein kalıntısı ve diğer yedi amino asidin her birinden birer kalıntı.
6.2
DNFB, serbest N-ucu amino grubunu nükleofilik aromatik sübstitüsyon yoluyla işaretler. \(\ce{H2N-P}\) ile gösterilen bir N-ucu grubu için biçimsel olarak denkleştirilmiş sübstitüsyon tepkimesi şöyledir:
\[ \ce{Ar-F + H2N-P -> Ar-NH-P + HF}, \]
burada \(\ce{Ar}\), 2,4-dinitrofenil grubudur. DNFB, 1-floro-2,4-dinitrobenzen, Fc1ccc([N+](=O)[O-])cc1[N+](=O)[O-]; hidrojen florür ise F ile gösterilir. İşaretleme ortamında baz, oluşan asidi nötrleştirir.
Ardından gerçekleşen peptit bağı hidrolizi, aril–azot bağını olduğu gibi bırakır. Bu nedenle DNP-Asp elde edilmesi, B1'in N-ucundaki kalıntının Asp olduğunu gösterir.
Ürün, SMILES gösterimi cevaplarda verilen N-(2,4-dinitrofenil)aspartik asittir. Tam yapısını çizmek için:
- 1 konumunda amino asit azotunu taşıyan bir benzen halkası çiziniz.
- 2 ve 4 konumlarının her birine bir nitro grubu bağlayınız.
- Bir hidrojen taşıyan azotu, aspartik asidin α-karbonuna bağlayınız.
- Bu α-karbonuna \(\ce{-COOH}\), \(\ce{-CH2COOH}\) ve hidrojen bağlayınız.
İki nitro grubu, aril grubuna bağlı azotun bazlığını büyük ölçüde azaltır. Bu nedenle gösterilen net yükü sıfır olan biçimde, yüksüz bir \(\ce{-NH-}\) grubu ve protonlanmış iki karboksil grubu bulunur. İstendiği üzere bu yapıda stereokimya belirtilmemiştir.
6.3
B8'in bileşimi Cya, Tyr, Ile ve Glu'dur. DNP türevi, N-ucundaki kalıntının Cya olduğunu gösterir.
Örtüşen parçalar şunlardır:
\[ \begin{aligned} \mathrm{B2}&:\quad \ce{Cya-Tyr},\\ \mathrm{B6}&:\quad \ce{Tyr-Ile-Glu}. \end{aligned} \]
Ortak Tyr kalıntıları, bu parçaları tek bir biçimde birleştirir:
\[ \boxed{\mathrm{B8}=\ce{Cya-Tyr-Ile-Glu}}. \]
B4, \(\ce{Ile-Glu}\), son iki kalıntıyı bağımsız olarak doğrular.
6.4
B9, Asp, Cya, Pro ve Leu içerir; N-ucunda Asp, C-ucunda ise Leu bulunur.
B1, \(\ce{Asp-Cya}\) parçasını; B5 ise \(\ce{Cya-Pro-Leu}\) parçasını verir. Ortak Cya kalıntısında birleştirildiklerinde şu dizi elde edilir:
\[ \boxed{\mathrm{B9}=\ce{Asp-Cya-Pro-Leu}}. \]
Bu dizi, her iki uç için yapılan tanımlamayla da uyumludur.
C-ucunun tanımlanmasında kullanılan hidrazinoliz, bir açil sübstitüsyonudur. Genel denkleştirilmiş biçimi şöyledir:
\[ \ce{R-C(=O)-NR'R'' + H2N-NH2 -> R-C(=O)-NH-NH2 + HNR'R''}. \]
Hidrazinin SMILES gösterimi NN şeklindedir. Soruda açıklanan tanımlama işleminde, C-ucundaki amino asit karboksil grubunu korur ve amino asit hidrazitlerinden ayırt edilir.
6.5
Enzimatik hidrolizle oluşan üç parça, dokuz kalıntının tamamını içerir:
\[ \begin{aligned} \mathrm{B8}&:\quad \ce{Cya-Tyr-Ile-Glu},\\ \mathrm{B9}&:\quad \ce{Asp-Cya-Pro-Leu},\\ \mathrm{B7}&:\quad \ce{Gly-NH2}. \end{aligned} \]
B7, glisinamid, NCC(N)=O, olduğundan C-ucunun amitleşmiş olduğunu gösterir.
B3 parçası, \(\ce{Leu-Gly}\), B9'un sonunu B7'ye bağlar. Dolayısıyla B9–B7, C-ucundaki beş kalıntılı bölümü oluşturur. B8, N-ucunda kalan dört kalıntıyı sağlar ve yükseltgenmiş yapının geçici dizisi şöyle elde edilir:
\[ \ce{Cya-Tyr-Ile-Glu-Asp-Cya-Pro-Leu-Gly-NH2}. \]
Yükseltgenmenin yol açtığı yapısal değişim tersine çevrildiğinde, 1 ve 6 konumlarındaki Cya kalıntılarının yerini disülfit bağıyla bağlanmış sistein kalıntıları alır. Dolayısıyla
\[ \boxed{\ce{H-Cys-Tyr-Ile-Glu-Asp-Cys-Pro-Leu-Gly-NH2}}. \]
Disülfit bağını açıkça göstermek için iki sistein yan zincirinin kükürt atomlarını birbirine bağlayınız; böylece
\[ \ce{-CH2-S-S-CH2-} \]
yan zincir bağlantısı 1 ve 6 numaralı kalıntılar arasında oluşur. N-ucundaki amino grubu serbest kalır. 6.5'in cevabındaki SMILES gösterimi, bu molekül içi bağı açıkça kodlar.
6.6
Asit hidrolizi, bir birincil karboksamidi karboksilik aside ve amonyağa dönüştürür. Biçimsel olarak denkleştirilmiş tepkime şöyledir:
\[ \ce{R-C(=O)-NH2 + H2O -> R-C(=O)-OH + NH3}. \]
Birincil amit parçası *C(N)=O, karboksilik asit parçası *C(=O)O ve amonyak N ile gösterilir; yıldız işareti yapının geri kalanını belirtir. Asidik hidroliz karışımında açığa çıkan amonyak protonlanarak amonyuma, [NH4+], dönüşür.
Uçta bulunduğu bilinen glisinamid, bir eşdeğer amonyağın kaynağıdır. Geriye kalan iki eşdeğer için iki ek birincil amit grubu gerekir.
Asit hidrolizi karışımındaki Asp ve Glu, karşılık gelen yan zincir amitlerinin hidrolizinden kaynaklanabilir:
\[ \begin{aligned} \text{Asn yan zinciri:}\quad& \ce{-CH2-C(=O)-NH2 -> -CH2-C(=O)-OH},\\ \text{Gln yan zinciri:}\quad& \ce{-CH2-CH2-C(=O)-NH2 -> -CH2-CH2-C(=O)-OH}. \end{aligned} \]
Bu dönüşümler, yukarıdaki denkleştirilmiş hidroliz tepkimesine göre gerçekleşir. Dolayısıyla başlangıçtaki kalıntılar Gln⁴ ve Asn⁵ idi.
Kütle farkı, tam olarak bu iki değişikliği destekler. \(\ce{-COOH}\) yerine \(\ce{-CONH2}\) gelmesi, \(\ce{OH}\) yerine \(\ce{NH2}\) gelmesi demektir ve molar kütlede yaklaşık olarak şu değişime yol açar:
\[ (14+2)-(16+1)=-1\ \mathrm{g\,mol^{-1}}. \]
İki değişiklik, molar kütleyi yaklaşık \(2\ \mathrm{g\,mol^{-1}}\) azaltır; bu da belirtilen farkla uyumludur:
\[ M_r(\text{düzeltilmiş A})\simeq1009-2=1007. \]
Böylece düzeltilmiş yapı şöyledir:
\[ \boxed{\ce{H-Cys-Tyr-Ile-Gln-Asn-Cys-Pro-Leu-Gly-NH2}}, \]
Cys¹–Cys⁶ disülfit bağı aynen korunur.
Daire içine alınacak üç bölge şunlardır:
- Gln⁴: yan zincirdeki \(\ce{-CH2CH2C(=O)NH2}\).
- Asn⁵: yan zincirdeki \(\ce{-CH2C(=O)NH2}\).
- Gly⁹: uçtaki \(\ce{-C(=O)NH2}\).
Her biri bir eşdeğer amonyak verir. Ana zincirdeki peptit azotları, hidroliz sırasında ait oldukları amino asit ürünlerine bağlı kalır.
6.7
Düzeltilmiş yapıda, Tablo 2'de yer alan ilgili iyonlaşabilir gruplar şunlardır:
| A'daki grup | \(\mathrm{p}K_\mathrm{a}\) | Proton kaybındaki yük değişimi |
|---|---|---|
| Serbest N-ucu amino grubu | 8.0 | \(+1\rightarrow0\) |
| Tyr fenolik grubu | 10.0 | \(0\rightarrow-1\) |
C-ucu amitleşmiştir; Gln ve Asn yan zincirleri de amit gruplarıdır. İki sistein kükürt atomu bir disülfit bağı oluşturduğundan serbest tiyol grubu bulunmaz.
Elektriksel olarak nötr biçim, N-ucundaki amonyum protonunun kaybı ile Tyr'nin fenolik protonunun kaybı arasında bulunur. Dolayısıyla
\[ \boxed{\mathrm{pI}=\frac{8.0+10.0}{2}=9.0}. \]
Daha açık bir ifadeyle, verilen iyonlaşma modeline göre ortalama yük şöyledir:
\[ \bar z= \frac{1}{1+10^{\mathrm{pH}-8.0}} - \frac{1}{1+10^{10.0-\mathrm{pH}}}. \]
\(\mathrm{pH}=9.0\) olduğunda, pozitif ve negatif katkıların her ikisinin de büyüklüğü \(1/11\) olduğundan \(\bar z=0\) olur.
Çözüm, resmi çözümle karşılaştırılarak kontrol edildi.
IChO 1999 · Problema teórico 6
Secuencia del péptido A
El péptido A tiene un peso molecular de 1007. Su hidrólisis ácida completa da los siguientes aminoácidos en cantidades equimolares: Asp, cistina, Glu, Gly, Ile, Leu, Pro y Tyr (véase la Tabla 1). La oxidación de A con \(\ce{HCO2OH}\) da únicamente B, que contiene dos residuos de ácido cisteico (Cya, que es un derivado de la cisteína cuyo grupo tiol se ha oxidado a ácido sulfónico).
6.1 ¿Cuántos grupos de ácido sulfónico se forman por oxidación de un enlace disulfuro?
La hidrólisis parcial de B da una serie de dipéptidos y tripéptidos (B1-B6). La secuencia de cada producto de hidrólisis se determina de las siguientes maneras.
El aminoácido N-terminal se identifica tratando el péptido con 2,4-dinitrofluorobenceno (DNFB) para obtener el DNP-péptido. Tras la hidrólisis ácida completa del DNP-péptido, se obtiene un DNP-aminoácido que puede identificarse fácilmente por comparación con DNP-aminoácidos de referencia.
6.2 B1, al tratarse con DNFB y someterse después a hidrólisis ácida, da un producto, DNP-Asp. Esto sugiere que B1 tiene ácido aspártico en el extremo N-terminal. Escriba la estructura completa del DNP-Asp en su punto isoeléctrico (no se requiere indicar la estereoquímica).
A continuación, el aminoácido C-terminal se identifica calentando el péptido a \(100\,^\circ\mathrm{C}\) con hidrazina, que rompe todos los enlaces peptídicos y convierte todos los aminoácidos, excepto el C-terminal, en hidrazidas de aminoácidos, dejando intacto el grupo carboxilo C-terminal.
De esta manera se identifican los aminoácidos N- y C-terminales, y las secuencias completas de B1-B6 son las siguientes:
| B1 | Asp-Cya | B4 | Ile-Glu |
| B2 | Cya-Tyr | B5 | Cya-Pro-Leu |
| B3 | Leu-Gly | B6 | Tyr-Ile-Glu |
La hidrólisis de B con una enzima de Bacillus subtilis da B7-B9 con las siguientes composiciones:
| B7 | \(\ce{Gly-NH2}\) (glicinamida) |
| B8 | Cya, Glu, Ile, Tyr |
| B9 | Asp, Cya, Leu, Pro |
6.3 Escriba la secuencia de B8 si se obtiene DNP-Cya al tratar B8 con DNFB y someterlo después a hidrólisis ácida completa.
6.4 Si los aminoácidos N- y C-terminales de B9 se identifican como Asp y Leu, respectivamente, escriba la secuencia de B9.
6.5 Escriba la estructura completa de A utilizando las abreviaturas de la Tabla 1 e indicando la posición del enlace disulfuro.
Sin embargo, el peso molecular de A calculado a partir de la secuencia anterior es 2 unidades de masa superior al valor experimental. Al examinar cuidadosamente la mezcla obtenida por hidrólisis ácida completa de A, se observa que también se producen 3 equivalentes molares de amoníaco, además de los aminoácidos detectados inicialmente.
6.6 Proponga la estructura revisada de A y rodee con un círculo los sitios de la estructura que indiquen todas las posibles fuentes de amoníaco.
6.7 Utilizando la información de la Tabla 2, calcule el punto isoeléctrico de A.
Tabla 1: Fórmulas y símbolos de aminoácidos comunes en el punto isoeléctrico
| Nombre | Fórmula | Símbolo de tres letras |
|---|---|---|
| Alanina | \(\ce{CH3CH(NH3+)CO2-}\) | Ala |
| Arginina | \(\ce{H2NC(=NH)NH(CH2)3CH(NH3+)CO2-}\) | Arg |
| Asparagina | \(\ce{H2NCOCH2CH(NH3+)CO2-}\) | Asn |
| Ácido aspártico | \(\ce{HO2CCH2CH(NH3+)CO2-}\) | Asp |
| Cisteína | \(\ce{HSCH2CH(NH3+)CO2-}\) | Cys |
| Cistina | \(\ce{[SCH2CH(NH3+)CO2-]2}\) | – |
| Ácido glutámico | \(\ce{HO2CCH2CH2CH(NH3+)CO2-}\) | Glu |
| Glutamina | \(\ce{H2NCOCH2CH2CH(NH3+)CO2-}\) | Gln |
| Glicina | \(\ce{^{+}H3NCH2CO2-}\) | Gly |
| Histidina | (figura de abajo) | His |
| Isoleucina | \(\ce{CH3CH2CH(CH3)CH(NH3+)CO2-}\) | Ile |
| Leucina | \(\ce{(CH3)2CHCH2CH(NH3+)CO2-}\) | Leu |
| Lisina | \(\ce{H2N(CH2)4CH(NH3+)CO2-}\) | Lys |
Tabla 1 (continuación)
| Nombre | Fórmula | Símbolo de tres letras |
|---|---|---|
| Metionina | \(\ce{CH3SCH2CH2CH(NH3+)CO2-}\) | Met |
| Fenilalanina | \(\ce{PhCH2CH(NH3+)CO2-}\) | Phe |
| Prolina | (primera figura de abajo) | Pro |
| Serina | \(\ce{HOCH2CH(NH3+)CO2-}\) | Ser |
| Treonina | \(\ce{CH3CH(OH)CH(NH3+)CO2-}\) | Thr |
| Triptófano | (segunda figura de abajo) | Trp |
| Tirosina | (tercera figura de abajo) | Tyr |
| Valina | \(\ce{(CH3)2CHCH(NH3+)CO2-}\) | Val |
Tabla 2: \(\mathrm{p}K_\mathrm{a}\) de algunos grupos importantes de los aminoácidos
| Grupos | Equilibrio | \(\mathrm{p}K_\mathrm{a}\) |
|---|---|---|
| Carboxilo terminal | (primera figura de abajo) | 3.1 |
| Carboxilo de la cadena lateral de Asp o Glu | (segunda figura de abajo) | 4.4 |
| Cadena lateral de His | (tercera figura de abajo) | 6.5 |
| Amino terminal | (cuarta figura de abajo) | 8.0 |
| Cadena lateral de Cys | (quinta figura de abajo) | 8.5 |
Tabla 2 (continuación)
| Grupos | Equilibrio | \(\mathrm{p}K_\mathrm{a}\) |
|---|---|---|
| Cadena lateral de Tyr | (primera figura de abajo) | 10.0 |
| Amino de la cadena lateral de Lys | (segunda figura de abajo) | 10.0 |
| Cadena lateral de Arg | (tercera figura de abajo) | 12.0 |
Enunciado traducido del texto oficial en inglés.
Respuestas
Los SMILES de los péptidos que se muestran a continuación utilizan la estereoquímica convencional de los residuos L naturales y representaciones neutras de los grupos funcionales.
-
6.1: Dos grupos de ácido sulfónico, \(\ce{-SO3H}\), por enlace disulfuro.
-
6.2: Ácido N-(2,4-dinitrofenil)aspártico, representado en su forma neutra, no zwitteriónica: \[ \ce{HOOC-CH2-CH[NH-C6H3(NO2)2]-COOH}, \] con los grupos nitro en las posiciones 2 y 4 respecto al punto de unión del nitrógeno.
SMILES: O=C(O)CC(Nc1ccc([N+](=O)[O-])cc1[N+](=O)[O-])C(=O)O
- 6.3: Péptido B8: \(\boxed{\ce{Cya-Tyr-Ile-Glu}}\), escrito desde el extremo N-terminal hasta el C-terminal.
SMILES: N[C@@H](CS(=O)(=O)O)C(=O)N[C@@H](Cc1ccc(O)cc1)C(=O)N[C@@H]([C@@H](C)CC)C(=O)N[C@@H](CCC(=O)O)C(=O)O
- 6.4: Péptido B9: \(\boxed{\ce{Asp-Cya-Pro-Leu}}\).
SMILES: N[C@@H](CC(=O)O)C(=O)N[C@@H](CS(=O)(=O)O)C(=O)N1CCC[C@H]1C(=O)N[C@@H](CC(C)C)C(=O)O
- 6.5: Péptido A provisional: \[ \boxed{\ce{H-Cys-Tyr-Ile-Glu-Asp-Cys-Pro-Leu-Gly-NH2}} \] con un enlace disulfuro entre Cys¹ y Cys⁶, un grupo amino N-terminal libre y una carboxamida C-terminal.
SMILES: N[C@@H](CS1)C(=O)N[C@@H](Cc2ccc(O)cc2)C(=O)N[C@@H]([C@@H](C)CC)C(=O)N[C@@H](CCC(=O)O)C(=O)N[C@@H](CC(=O)O)C(=O)N[C@@H](CS1)C(=O)N2CCC[C@H]2C(=O)N[C@@H](CC(C)C)C(=O)NCC(N)=O
- 6.6: Péptido A revisado: \[ \boxed{\ce{H-Cys-Tyr-Ile-Gln-Asn-Cys-Pro-Leu-Gly-NH2}} \] conservando el enlace disulfuro Cys¹–Cys⁶. Rodee con un círculo los tres grupos \(\ce{-C(=O)NH2}\): la amida de la cadena lateral de Gln⁴, la amida de la cadena lateral de Asn⁵ y la amida terminal de Gly⁹.
SMILES: N[C@@H](CS1)C(=O)N[C@@H](Cc2ccc(O)cc2)C(=O)N[C@@H]([C@@H](C)CC)C(=O)N[C@@H](CCC(N)=O)C(=O)N[C@@H](CC(N)=O)C(=O)N[C@@H](CS1)C(=O)N2CCC[C@H]2C(=O)N[C@@H](CC(C)C)C(=O)NCC(N)=O
- 6.7: \(\boxed{\mathrm{pI}=9.0}\).
Solución
6.1
La oxidación convierte cada átomo de azufre de un enlace disulfuro en un grupo de ácido sulfónico. Por tanto, un enlace disulfuro produce dos de estos grupos.
Una ecuación ajustada que utiliza el oxidante especificado es
\[ \ce{R-S-S-R' + 5 HCO2OH + H2O -> R-SO3H + R'-SO3H + 5 HCO2H}. \]
Aquí, el ácido perfórmico es O=COO, el ácido fórmico es O=CO y el agua es O.
Por consiguiente, cada átomo de azufre del péptido procedente de la cisteína pasa a formar parte de un residuo de ácido cisteico. El ácido L-cisteico libre, Cya, tiene el SMILES N[C@@H](CS(=O)(=O)O)C(=O)O.
Una molécula de cistina contiene dos unidades de aminoácido. La L-cistina tiene el SMILES N[C@@H](CSSC[C@H](N)C(=O)O)C(=O)O. Así, los productos de hidrólisis equimolares indicados corresponden a nueve residuos: dos residuos de cisteína y uno de cada uno de los otros siete aminoácidos.
6.2
El DNFB marca el grupo amino N-terminal libre mediante sustitución nucleófila aromática. Para un grupo N-terminal representado por \(\ce{H2N-P}\), la reacción formal de sustitución ajustada es
\[ \ce{Ar-F + H2N-P -> Ar-NH-P + HF}, \]
donde \(\ce{Ar}\) es el grupo 2,4-dinitrofenilo. El DNFB es 1-fluoro-2,4-dinitrobenceno, Fc1ccc([N+](=O)[O-])cc1[N+](=O)[O-]; el fluoruro de hidrógeno es F. En el medio de marcaje, la base neutraliza el ácido producido.
La posterior hidrólisis de los enlaces peptídicos deja intacto el enlace arilo–nitrógeno. Por tanto, la obtención de DNP-Asp identifica Asp como el residuo N-terminal de B1.
El producto es el ácido N-(2,4-dinitrofenil)aspártico, cuyo SMILES se indica en las respuestas. Para dibujarlo por completo:
- Dibuje un anillo bencénico unido al nitrógeno del aminoácido en la posición 1.
- Una un grupo nitro a cada una de las posiciones 2 y 4.
- Conecte el nitrógeno, que lleva un hidrógeno, al carbono α del ácido aspártico.
- Una \(\ce{-COOH}\), \(\ce{-CH2COOH}\) y un hidrógeno a ese carbono α.
Los dos grupos nitro reducen considerablemente la basicidad del nitrógeno sustituido por el grupo arilo. Por ello, la forma representada, de carga neta nula, tiene un grupo \(\ce{-NH-}\) sin carga y dos grupos carboxilo protonados. No se asigna estereoquímica a esta estructura, tal como se solicita.
6.3
La composición de B8 es Cya, Tyr, Ile y Glu. Su derivado DNP identifica Cya como su residuo N-terminal.
Los fragmentos que se solapan son
\[ \begin{aligned} \mathrm{B2}&:\quad \ce{Cya-Tyr},\\ \mathrm{B6}&:\quad \ce{Tyr-Ile-Glu}. \end{aligned} \]
El residuo Tyr que tienen en común permite unirlos de forma unívoca:
\[ \boxed{\mathrm{B8}=\ce{Cya-Tyr-Ile-Glu}}. \]
B4, \(\ce{Ile-Glu}\), confirma de manera independiente los dos últimos residuos.
6.4
B9 contiene Asp, Cya, Pro y Leu, con Asp en su extremo N-terminal y Leu en su extremo C-terminal.
B1 aporta \(\ce{Asp-Cya}\), mientras que B5 aporta \(\ce{Cya-Pro-Leu}\). Al unirlos por el residuo Cya que tienen en común se obtiene
\[ \boxed{\mathrm{B9}=\ce{Asp-Cya-Pro-Leu}}. \]
Esta secuencia es compatible con ambas identificaciones de los extremos.
La hidrazinólisis utilizada para la identificación del extremo C-terminal es una sustitución acílica. Su forma general ajustada es
\[ \ce{R-C(=O)-NR'R'' + H2N-NH2 -> R-C(=O)-NH-NH2 + HNR'R''}. \]
La hidrazina tiene el SMILES NN. En el procedimiento de identificación descrito en el problema, el aminoácido C-terminal conserva su grupo carboxilo y se distingue de las hidrazidas de aminoácidos.
6.5
Los tres fragmentos enzimáticos contienen los nueve residuos:
\[ \begin{aligned} \mathrm{B8}&:\quad \ce{Cya-Tyr-Ile-Glu},\\ \mathrm{B9}&:\quad \ce{Asp-Cya-Pro-Leu},\\ \mathrm{B7}&:\quad \ce{Gly-NH2}. \end{aligned} \]
B7 es glicinamida, NCC(N)=O, por lo que establece que el extremo C-terminal está amidado.
El fragmento B3, \(\ce{Leu-Gly}\), une el final de B9 con B7. En consecuencia, B9–B7 forma el segmento C-terminal de cinco residuos. B8 aporta los cuatro residuos N-terminales restantes, lo que da la secuencia oxidada provisional
\[ \ce{Cya-Tyr-Ile-Glu-Asp-Cya-Pro-Leu-Gly-NH2}. \]
Al revertir la consecuencia estructural de la oxidación, los residuos Cya de las posiciones 1 y 6 se sustituyen por residuos de cisteína unidos mediante un enlace disulfuro. Por tanto,
\[ \boxed{\ce{H-Cys-Tyr-Ile-Glu-Asp-Cys-Pro-Leu-Gly-NH2}}. \]
Para indicar con precisión el enlace disulfuro, conecte los átomos de azufre de las dos cadenas laterales de cisteína, dando lugar a una unión entre cadenas laterales
\[ \ce{-CH2-S-S-CH2-} \]
entre los residuos 1 y 6. El grupo amino N-terminal permanece libre. El SMILES de la respuesta 6.5 codifica explícitamente este enlace intramolecular.
6.6
La hidrólisis ácida convierte una carboxamida primaria en un ácido carboxílico y amoníaco. La ecuación formal ajustada es
\[ \ce{R-C(=O)-NH2 + H2O -> R-C(=O)-OH + NH3}. \]
El fragmento de amida primaria es *C(N)=O, el fragmento de ácido carboxílico es *C(=O)O y el amoníaco es N; el asterisco representa el resto de la estructura. En el hidrolizado ácido, el amoníaco liberado se protona para formar amonio, [NH4+].
La glicinamida terminal ya identificada explica un equivalente de amoníaco. Los dos equivalentes restantes requieren dos amidas primarias adicionales.
Asp y Glu en un hidrolizado ácido pueden proceder de la hidrólisis de las amidas de las cadenas laterales correspondientes:
\[ \begin{aligned} \text{Cadena lateral de Asn:}\quad& \ce{-CH2-C(=O)-NH2 -> -CH2-C(=O)-OH},\\ \text{Cadena lateral de Gln:}\quad& \ce{-CH2-CH2-C(=O)-NH2 -> -CH2-CH2-C(=O)-OH}. \end{aligned} \]
Estas transformaciones siguen la ecuación de hidrólisis ajustada anterior. Por tanto, los residuos originales eran Gln⁴ y Asn⁵.
La diferencia de masa respalda exactamente estas dos sustituciones. Al sustituir \(\ce{-COOH}\) por \(\ce{-CONH2}\), se sustituye \(\ce{OH}\) por \(\ce{NH2}\), lo que reduce la masa molar en aproximadamente
\[ (14+2)-(16+1)=-1\ \mathrm{g\,mol^{-1}}. \]
Dos sustituciones reducen la masa molar en aproximadamente \(2\ \mathrm{g\,mol^{-1}}\), en concordancia con la diferencia indicada:
\[ M_r(\text{A revisado})\simeq1009-2=1007. \]
Por consiguiente, la estructura revisada es
\[ \boxed{\ce{H-Cys-Tyr-Ile-Gln-Asn-Cys-Pro-Leu-Gly-NH2}}, \]
con el mismo enlace disulfuro Cys¹–Cys⁶.
Los tres sitios que deben rodearse con un círculo son:
- Gln⁴: el grupo \(\ce{-CH2CH2C(=O)NH2}\) de la cadena lateral.
- Asn⁵: el grupo \(\ce{-CH2C(=O)NH2}\) de la cadena lateral.
- Gly⁹: el grupo terminal \(\ce{-C(=O)NH2}\).
Cada uno produce un equivalente de amoníaco. Los nitrógenos peptídicos de la cadena principal permanecen unidos a sus respectivos aminoácidos producto durante la hidrólisis.
6.7
En la estructura revisada, los grupos ionizables pertinentes de la Tabla 2 son:
| Grupo en A | \(\mathrm{p}K_\mathrm{a}\) | Cambio de carga al desprotonarse |
|---|---|---|
| Grupo amino N-terminal libre | 8.0 | \(+1\rightarrow0\) |
| Grupo fenólico de Tyr | 10.0 | \(0\rightarrow-1\) |
El extremo C-terminal está amidado, y las cadenas laterales de Gln y Asn son amidas. Los dos átomos de azufre de las cisteínas forman un enlace disulfuro, por lo que no hay grupos tiol libres.
La forma eléctricamente neutra se encuentra entre la pérdida del protón del grupo amonio N-terminal y la pérdida del protón fenólico de Tyr. Por tanto,
\[ \boxed{\mathrm{pI}=\frac{8.0+10.0}{2}=9.0}. \]
De forma más explícita, la carga media según el modelo de ionización proporcionado es
\[ \bar z= \frac{1}{1+10^{\mathrm{pH}-8.0}} - \frac{1}{1+10^{10.0-\mathrm{pH}}}. \]
A \(\mathrm{pH}=9.0\), las contribuciones positiva y negativa tienen ambas una magnitud de \(1/11\), por lo que \(\bar z=0\).
La solución se comprobó con la solución oficial.
IChO 1999 · 理论题 6
肽 A 的序列
肽 A 的分子量为 1007。完全酸水解得到下列等摩尔量的氨基酸:Asp、胱氨酸、Glu、Gly、Ile、Leu、Pro 和 Tyr(见表 1)。用 \(\ce{HCO2OH}\) 氧化 A,仅得到 B,其中含有两个半胱氨酸磺酸残基(Cya,是半胱氨酸的巯基被氧化成磺酸基后形成的衍生物)。
6.1 一个二硫键氧化后形成多少个磺酸基?
B 部分水解得到若干二肽和三肽(B1-B6)。各水解产物的序列按以下方法确定。
用 2,4-二硝基氟苯(DNFB)处理肽,得到 DNP-肽,以鉴定 N 端氨基酸。DNP-肽完全酸水解后,得到一种 DNP-氨基酸,将其与标准 DNP-氨基酸比较即可容易地鉴定。
6.2 B1 经 DNFB 处理后再酸水解,得到产物 DNP-Asp。这表明 B1 的 N 端为天冬氨酸。写出 DNP-Asp 在其等电点时的完整结构(不要求表示立体化学)。
接着,将肽与肼在 \(100\,^\circ\mathrm{C}\) 下加热,以鉴定 C 端氨基酸。肼使所有肽键断裂,将除 C 端氨基酸以外的所有氨基酸转化为氨基酸酰肼,而 C 端羧基保持完整。
用这种方法鉴定 N 端和 C 端氨基酸,得到 B1-B6 的完整序列如下:
| B1 | Asp-Cya | B4 | Ile-Glu |
| B2 | Cya-Tyr | B5 | Cya-Pro-Leu |
| B3 | Leu-Gly | B6 | Tyr-Ile-Glu |
用来自枯草芽孢杆菌(Bacillus subtilis)的酶水解 B,得到 B7-B9,其组成如下:
| B7 | \(\ce{Gly-NH2}\)(甘氨酰胺) |
| B8 | Cya, Glu, Ile, Tyr |
| B9 | Asp, Cya, Leu, Pro |
6.3 若 B8 经 DNFB 处理后再完全酸水解,得到 DNP-Cya,写出 B8 的序列。
6.4 若鉴定出 B9 的 N 端和 C 端氨基酸分别为 Asp 和 Leu,写出 B9 的序列。
6.5 用表 1 中的缩写写出 A 的完整结构,并标明二硫键的位置。
然而,根据上述序列计算出的 A 的分子量比实验值高 2 个质量单位。仔细观察 A 完全酸水解所得的混合物,发现除最初检测到的氨基酸外,还生成了 3 摩尔当量的氨。
6.6 提出 A 的修正结构,并在结构中圈出相应部位,以标明氨的所有可能来源。
6.7 利用表 2 中的信息,计算 A 的等电点。
表 1:常见氨基酸在等电点时的化学式及符号
| 名称 | 化学式 | 三字母符号 |
|---|---|---|
| 丙氨酸 | \(\ce{CH3CH(NH3+)CO2-}\) | Ala |
| 精氨酸 | \(\ce{H2NC(=NH)NH(CH2)3CH(NH3+)CO2-}\) | Arg |
| 天冬酰胺 | \(\ce{H2NCOCH2CH(NH3+)CO2-}\) | Asn |
| 天冬氨酸 | \(\ce{HO2CCH2CH(NH3+)CO2-}\) | Asp |
| 半胱氨酸 | \(\ce{HSCH2CH(NH3+)CO2-}\) | Cys |
| 胱氨酸 | \(\ce{[SCH2CH(NH3+)CO2-]2}\) | – |
| 谷氨酸 | \(\ce{HO2CCH2CH2CH(NH3+)CO2-}\) | Glu |
| 谷氨酰胺 | \(\ce{H2NCOCH2CH2CH(NH3+)CO2-}\) | Gln |
| 甘氨酸 | \(\ce{^{+}H3NCH2CO2-}\) | Gly |
| 组氨酸 | (下图) | His |
| 异亮氨酸 | \(\ce{CH3CH2CH(CH3)CH(NH3+)CO2-}\) | Ile |
| 亮氨酸 | \(\ce{(CH3)2CHCH2CH(NH3+)CO2-}\) | Leu |
| 赖氨酸 | \(\ce{H2N(CH2)4CH(NH3+)CO2-}\) | Lys |
表 1(续)
| 名称 | 化学式 | 三字母符号 |
|---|---|---|
| 甲硫氨酸 | \(\ce{CH3SCH2CH2CH(NH3+)CO2-}\) | Met |
| 苯丙氨酸 | \(\ce{PhCH2CH(NH3+)CO2-}\) | Phe |
| 脯氨酸 | (下方第一幅图) | Pro |
| 丝氨酸 | \(\ce{HOCH2CH(NH3+)CO2-}\) | Ser |
| 苏氨酸 | \(\ce{CH3CH(OH)CH(NH3+)CO2-}\) | Thr |
| 色氨酸 | (下方第二幅图) | Trp |
| 酪氨酸 | (下方第三幅图) | Tyr |
| 缬氨酸 | \(\ce{(CH3)2CHCH(NH3+)CO2-}\) | Val |
表 2:氨基酸中一些重要基团的 \(\mathrm{p}K_\mathrm{a}\)
| 基团 | 平衡 | \(\mathrm{p}K_\mathrm{a}\) |
|---|---|---|
| 末端羧基 | (下方第一幅图) | 3.1 |
| Asp 或 Glu 的侧链羧基 | (下方第二幅图) | 4.4 |
| His 侧链 | (下方第三幅图) | 6.5 |
| 末端氨基 | (下方第四幅图) | 8.0 |
| Cys 侧链 | (下方第五幅图) | 8.5 |
表 2(续)
| 基团 | 平衡 | \(\mathrm{p}K_\mathrm{a}\) |
|---|---|---|
| Tyr 侧链 | (下方第一幅图) | 10.0 |
| Lys 侧链氨基 | (下方第二幅图) | 10.0 |
| Arg 侧链 | (下方第三幅图) | 12.0 |
题目译自官方英文原文。
答案
以下肽的 SMILES 采用常规天然 L 型残基的立体化学构型及中性官能团表示法。
-
6.1:每个二硫键生成两个磺酸基 \(\ce{-SO3H}\)。
-
6.2: N-(2,4-二硝基苯基)天冬氨酸,以中性、非两性离子形式表示: \[ \ce{HOOC-CH2-CH[NH-C6H3(NO2)2]-COOH}, \] 两个硝基位于相对于氮原子连接位置的 2 位和 4 位。
SMILES:O=C(O)CC(Nc1ccc([N+](=O)[O-])cc1[N+](=O)[O-])C(=O)O
- 6.3: 肽 B8:\(\boxed{\ce{Cya-Tyr-Ile-Glu}}\),按从 N 端到 C 端的方向书写。
SMILES:N[C@@H](CS(=O)(=O)O)C(=O)N[C@@H](Cc1ccc(O)cc1)C(=O)N[C@@H]([C@@H](C)CC)C(=O)N[C@@H](CCC(=O)O)C(=O)O
- 6.4: 肽 B9:\(\boxed{\ce{Asp-Cya-Pro-Leu}}\)。
SMILES:N[C@@H](CC(=O)O)C(=O)N[C@@H](CS(=O)(=O)O)C(=O)N1CCC[C@H]1C(=O)N[C@@H](CC(C)C)C(=O)O
- 6.5: 暂定的肽 A: \[ \boxed{\ce{H-Cys-Tyr-Ile-Glu-Asp-Cys-Pro-Leu-Gly-NH2}} \] Cys¹ 和 Cys⁶ 之间有一个二硫键,N 端氨基游离,C 端为羧酰胺。
SMILES:N[C@@H](CS1)C(=O)N[C@@H](Cc2ccc(O)cc2)C(=O)N[C@@H]([C@@H](C)CC)C(=O)N[C@@H](CCC(=O)O)C(=O)N[C@@H](CC(=O)O)C(=O)N[C@@H](CS1)C(=O)N2CCC[C@H]2C(=O)N[C@@H](CC(C)C)C(=O)NCC(N)=O
- 6.6: 修正后的肽 A: \[ \boxed{\ce{H-Cys-Tyr-Ile-Gln-Asn-Cys-Pro-Leu-Gly-NH2}} \] 保留 Cys¹–Cys⁶ 二硫键。圈出三个 \(\ce{-C(=O)NH2}\) 基团:Gln⁴ 的侧链酰胺基、Asn⁵ 的侧链酰胺基以及 Gly⁹ 的末端酰胺基。
SMILES:N[C@@H](CS1)C(=O)N[C@@H](Cc2ccc(O)cc2)C(=O)N[C@@H]([C@@H](C)CC)C(=O)N[C@@H](CCC(N)=O)C(=O)N[C@@H](CC(N)=O)C(=O)N[C@@H](CS1)C(=O)N2CCC[C@H]2C(=O)N[C@@H](CC(C)C)C(=O)NCC(N)=O
- 6.7:\(\boxed{\mathrm{pI}=9.0}\)。
解答
6.1
氧化使二硫键中的每个硫原子转化为一个磺酸基。因此,一个二硫键生成两个这样的基团。
使用题目指定氧化剂的配平方程式为
\[ \ce{R-S-S-R' + 5 HCO2OH + H2O -> R-SO3H + R'-SO3H + 5 HCO2H}. \]
这里,过氧甲酸为 O=COO,甲酸为 O=CO,水为 O。
因此,肽中每个来自半胱氨酸的硫原子都转化为半胱氨酸磺酸残基。游离 L-半胱氨酸磺酸 Cya 的 SMILES 为 N[C@@H](CS(=O)(=O)O)C(=O)O。
一个胱氨酸分子含有两个氨基酸单元。L-胱氨酸的 SMILES 为 N[C@@H](CSSC[C@H](N)C(=O)O)C(=O)O。因此,题目所述的等摩尔量水解产物对应于九个残基:两个半胱氨酸残基,以及其余七种氨基酸各一个残基。
6.2
DNFB 通过亲核芳香取代反应标记游离的 N 端氨基。对于以 \(\ce{H2N-P}\) 表示的 N 端基团,形式上的配平取代反应式为
\[ \ce{Ar-F + H2N-P -> Ar-NH-P + HF}, \]
其中 \(\ce{Ar}\) 为 2,4-二硝基苯基。DNFB 是 1-氟-2,4-二硝基苯,Fc1ccc([N+](=O)[O-])cc1[N+](=O)[O-];氟化氢为 F。在标记反应介质中,碱中和所生成的酸。
随后的肽键水解不破坏芳基与氮之间的键。因此,得到 DNP-Asp 即可确定 Asp 是 B1 的 N 端残基。
产物为 N-(2,4-二硝基苯基)天冬氨酸,其 SMILES 已在答案中给出。要绘出其完整结构:
- 画一个苯环,在 1 位连接氨基酸的氮原子。
- 在 2 位和 4 位各连接一个硝基。
- 将带有一个氢原子的氮原子连接到天冬氨酸的 α-碳原子上。
- 在该 α-碳原子上连接 \(\ce{-COOH}\)、\(\ce{-CH2COOH}\) 和氢原子。
两个硝基显著降低了芳基取代的氮原子的碱性。因此,所示净电荷为零的形式含有一个不带电的 \(\ce{-NH-}\) 基团和两个质子化的羧基。按照题目要求,该结构未指定立体化学构型。
6.3
B8 的组成为 Cya、Tyr、Ile 和 Glu。其 DNP 衍生物表明 Cya 是其 N 端残基。
相互重叠的片段为
\[ \begin{aligned} \mathrm{B2}&:\quad \ce{Cya-Tyr},\\ \mathrm{B6}&:\quad \ce{Tyr-Ile-Glu}. \end{aligned} \]
通过共有的 Tyr 残基,可将它们唯一地拼接为:
\[ \boxed{\mathrm{B8}=\ce{Cya-Tyr-Ile-Glu}}. \]
B4,即 \(\ce{Ile-Glu}\),独立证实了最后两个残基的排列。
6.4
B9 含有 Asp、Cya、Pro 和 Leu,其中 N 端为 Asp,C 端为 Leu。
B1 提供 \(\ce{Asp-Cya}\),B5 提供 \(\ce{Cya-Pro-Leu}\)。在共有的 Cya 处拼接,得到
\[ \boxed{\mathrm{B9}=\ce{Asp-Cya-Pro-Leu}}. \]
该序列同时符合两个末端的鉴定结果。
用于鉴定 C 端的肼解反应是一种酰基取代反应。其一般配平形式为
\[ \ce{R-C(=O)-NR'R'' + H2N-NH2 -> R-C(=O)-NH-NH2 + HNR'R''}. \]
肼的 SMILES 为 NN。在题目所述的鉴定步骤中,C 端氨基酸保留其羧基,因而可与氨基酸酰肼区分。
6.5
三个酶解片段包含了全部九个残基:
\[ \begin{aligned} \mathrm{B8}&:\quad \ce{Cya-Tyr-Ile-Glu},\\ \mathrm{B9}&:\quad \ce{Asp-Cya-Pro-Leu},\\ \mathrm{B7}&:\quad \ce{Gly-NH2}. \end{aligned} \]
B7 是甘氨酰胺,NCC(N)=O,因此可确定 C 端已酰胺化。
片段 B3,即 \(\ce{Leu-Gly}\),将 B9 的末端与 B7 连接起来。因此,B9–B7 构成 C 端的五残基片段。B8 提供其余四个 N 端残基,得到暂定的氧化后序列
\[ \ce{Cya-Tyr-Ile-Glu-Asp-Cya-Pro-Leu-Gly-NH2}. \]
将氧化造成的结构变化逆向还原,即将第 1 位和第 6 位的 Cya 残基换回通过二硫键相连的半胱氨酸残基。因此
\[ \boxed{\ce{H-Cys-Tyr-Ile-Glu-Asp-Cys-Pro-Leu-Gly-NH2}}. \]
为准确表示二硫键,将两个半胱氨酸侧链的硫原子相连,形成侧链连接
\[ \ce{-CH2-S-S-CH2-} \]
,连接第 1 和 6 位残基。N 端氨基仍保持游离。答案 6.5 中的 SMILES 明确编码了这一分子内键。
6.6
酸水解将一级羧酰胺转化为羧酸和氨。形式上的配平方程式为
\[ \ce{R-C(=O)-NH2 + H2O -> R-C(=O)-OH + NH3}. \]
一级酰胺片段为 *C(N)=O,羧酸片段为 *C(=O)O,氨为 N;星号表示结构的其余部分。在酸性水解液中,释放的氨被质子化为铵离子,[NH4+]。
已知的末端甘氨酰胺可解释一当量氨的生成。其余两当量要求存在另外两个一级酰胺基。
酸水解液中的 Asp 和 Glu 可以由相应侧链酰胺的水解产生:
\[ \begin{aligned} \text{Asn 侧链:}\quad& \ce{-CH2-C(=O)-NH2 -> -CH2-C(=O)-OH},\\ \text{Gln 侧链:}\quad& \ce{-CH2-CH2-C(=O)-NH2 -> -CH2-CH2-C(=O)-OH}. \end{aligned} \]
这些转化遵循上述配平的水解方程式。因此,原来的残基为 Gln⁴ 和 Asn⁵。
质量差恰好支持这两处替换。以 \(\ce{-CONH2}\) 替换 \(\ce{-COOH}\),相当于以 \(\ce{NH2}\) 替换 \(\ce{OH}\),摩尔质量约减少
\[ (14+2)-(16+1)=-1\ \mathrm{g\,mol^{-1}}. \]
两处替换使摩尔质量约减少 \(2\ \mathrm{g\,mol^{-1}}\),与题目给出的差值一致:
\[ M_r(\text{修正后的 A})\simeq1009-2=1007. \]
因此,修正后的结构为
\[ \boxed{\ce{H-Cys-Tyr-Ile-Gln-Asn-Cys-Pro-Leu-Gly-NH2}}, \]
并具有相同的 Cys¹–Cys⁶ 二硫键。
应圈出的三个部位为:
- Gln⁴:侧链上的 \(\ce{-CH2CH2C(=O)NH2}\)。
- Asn⁵:侧链上的 \(\ce{-CH2C(=O)NH2}\)。
- Gly⁹:末端的 \(\ce{-C(=O)NH2}\)。
每处均产生一当量的氨。水解过程中,主链肽键中的氮原子仍与各自对应的氨基酸产物相连。
6.7
在修正后的结构中,表 2 所列的相关可电离基团为:
| A 中的基团 | \(\mathrm{p}K_\mathrm{a}\) | 去质子化时的电荷变化 |
|---|---|---|
| 游离 N 端氨基 | 8.0 | \(+1\rightarrow0\) |
| Tyr 酚羟基 | 10.0 | \(0\rightarrow-1\) |
C 端已酰胺化,Gln 和 Asn 的侧链均为酰胺。两个半胱氨酸的硫原子形成二硫键,因此不存在游离巯基。
电中性形式处于 N 端铵基失去质子与 Tyr 酚羟基失去质子之间。因此
\[ \boxed{\mathrm{pI}=\frac{8.0+10.0}{2}=9.0}. \]
更明确地说,在给定的电离模型下,平均电荷为
\[ \bar z= \frac{1}{1+10^{\mathrm{pH}-8.0}} - \frac{1}{1+10^{10.0-\mathrm{pH}}}. \]
在 \(\mathrm{pH}=9.0\) 时,正、负电荷贡献的绝对值均为 \(1/11\),所以 \(\bar z=0\)。
解答已与官方解答核对。
IChO 1999 · Теоретическая задача 6
Последовательность пептида A
Пептид A имеет молекулярную массу 1007. При полном кислотном гидролизе образуются следующие аминокислоты в эквимолярных количествах: Asp, цистин, Glu, Gly, Ile, Leu, Pro и Tyr (см. таблицу 1). При окислении A с помощью \(\ce{HCO2OH}\) образуется только B, содержащий два остатка цистеиновой кислоты (Cya, производное цистеина, в котором тиольная группа окислена до сульфогруппы).
6.1 Сколько сульфогрупп образуется при окислении одной дисульфидной связи?
При частичном гидролизе B образуется ряд ди- и трипептидов (B1-B6). Последовательность каждого продукта гидролиза определяют следующими способами.
N-концевую аминокислоту идентифицируют, обрабатывая пептид 2,4-динитрофторбензолом (DNFB) с образованием DNP-пептида. После полного кислотного гидролиза DNP-пептида получают DNP-аминокислоту, которую можно легко идентифицировать сравнением со стандартными DNP-аминокислотами.
6.2 При обработке B1 реагентом DNFB с последующим кислотным гидролизом образуется продукт DNP-Asp. Это указывает на то, что на N-конце B1 находится аспарагиновая кислота. Напишите полную структурную формулу DNP-Asp в изоэлектрической точке (указывать стереохимию не требуется).
Затем C-концевую аминокислоту идентифицируют, нагревая пептид при \(100\,^\circ\mathrm{C}\) с гидразином, который расщепляет все пептидные связи и превращает все аминокислоты, кроме C-концевой, в гидразиды аминокислот, оставляя C-концевую карбоксильную группу неизменной.
Таким образом идентифицируют N- и C-концевые аминокислоты; полные последовательности B1-B6 приведены ниже:
| B1 | Asp-Cya | B4 | Ile-Glu |
| B2 | Cya-Tyr | B5 | Cya-Pro-Leu |
| B3 | Leu-Gly | B6 | Tyr-Ile-Glu |
При гидролизе B ферментом из Bacillus subtilis образуются B7-B9 следующего состава:
| B7 | \(\ce{Gly-NH2}\) (глицинамид) |
| B8 | Cya, Glu, Ile, Tyr |
| B9 | Asp, Cya, Leu, Pro |
6.3 Напишите последовательность B8, если при обработке B8 реагентом DNFB с последующим полным кислотным гидролизом образуется DNP-Cya.
6.4 Если N- и C-концевые аминокислоты B9 идентифицированы как Asp и Leu соответственно, напишите последовательность B9.
6.5 Напишите полную структурную формулу A, используя сокращения из таблицы 1 и указав положение дисульфидной связи.
Однако молекулярная масса A, рассчитанная на основании приведённой выше последовательности, на 2 единицы массы превышает экспериментальное значение. При тщательном исследовании смеси, полученной при полном кислотном гидролизе A, установлено, что помимо первоначально обнаруженных аминокислот образуются также 3 молярных эквивалента аммиака.
6.6 Предложите уточнённую структуру A и обведите на ней кружками все участки, которые могут служить источниками аммиака.
6.7 Используя данные таблицы 2, рассчитайте изоэлектрическую точку A.
Таблица 1: Формулы и обозначения распространённых аминокислот в изоэлектрической точке
| Название | Формула | Трёхбуквенное обозначение |
|---|---|---|
| Аланин | \(\ce{CH3CH(NH3+)CO2-}\) | Ala |
| Аргинин | \(\ce{H2NC(=NH)NH(CH2)3CH(NH3+)CO2-}\) | Arg |
| Аспарагин | \(\ce{H2NCOCH2CH(NH3+)CO2-}\) | Asn |
| Аспарагиновая кислота | \(\ce{HO2CCH2CH(NH3+)CO2-}\) | Asp |
| Цистеин | \(\ce{HSCH2CH(NH3+)CO2-}\) | Cys |
| Цистин | \(\ce{[SCH2CH(NH3+)CO2-]2}\) | – |
| Глутаминовая кислота | \(\ce{HO2CCH2CH2CH(NH3+)CO2-}\) | Glu |
| Глутамин | \(\ce{H2NCOCH2CH2CH(NH3+)CO2-}\) | Gln |
| Глицин | \(\ce{^{+}H3NCH2CO2-}\) | Gly |
| Гистидин | (рисунок ниже) | His |
| Изолейцин | \(\ce{CH3CH2CH(CH3)CH(NH3+)CO2-}\) | Ile |
| Лейцин | \(\ce{(CH3)2CHCH2CH(NH3+)CO2-}\) | Leu |
| Лизин | \(\ce{H2N(CH2)4CH(NH3+)CO2-}\) | Lys |
Таблица 1 (продолжение)
| Название | Формула | Трёхбуквенное обозначение |
|---|---|---|
| Метионин | \(\ce{CH3SCH2CH2CH(NH3+)CO2-}\) | Met |
| Фенилаланин | \(\ce{PhCH2CH(NH3+)CO2-}\) | Phe |
| Пролин | (первый рисунок ниже) | Pro |
| Серин | \(\ce{HOCH2CH(NH3+)CO2-}\) | Ser |
| Треонин | \(\ce{CH3CH(OH)CH(NH3+)CO2-}\) | Thr |
| Триптофан | (второй рисунок ниже) | Trp |
| Тирозин | (третий рисунок ниже) | Tyr |
| Валин | \(\ce{(CH3)2CHCH(NH3+)CO2-}\) | Val |
Таблица 2: \(\mathrm{p}K_\mathrm{a}\) некоторых важных групп в аминокислотах
| Группы | Равновесие | \(\mathrm{p}K_\mathrm{a}\) |
|---|---|---|
| Концевая карбоксильная группа | (первый рисунок ниже) | 3.1 |
| Карбоксильная группа боковой цепи Asp или Glu | (второй рисунок ниже) | 4.4 |
| Боковая цепь His | (третий рисунок ниже) | 6.5 |
| Концевая аминогруппа | (четвёртый рисунок ниже) | 8.0 |
| Боковая цепь Cys | (пятый рисунок ниже) | 8.5 |
Таблица 2 (продолжение)
| Группы | Равновесие | \(\mathrm{p}K_\mathrm{a}\) |
|---|---|---|
| Боковая цепь Tyr | (первый рисунок ниже) | 10.0 |
| Аминогруппа боковой цепи Lys | (второй рисунок ниже) | 10.0 |
| Боковая цепь Arg | (третий рисунок ниже) | 12.0 |
Условие переведено с официального английского текста.
Ответы
В приведённых ниже SMILES пептидов использована обычная стереохимия природных L-аминокислотных остатков, а функциональные группы представлены в нейтральной форме.
-
6.1: Две сульфогруппы, \(\ce{-SO3H}\), на одну дисульфидную связь.
-
6.2: N-(2,4-динитрофенил)аспарагиновая кислота, представленная в нейтральной, нецвиттер-ионной форме: \[ \ce{HOOC-CH2-CH[NH-C6H3(NO2)2]-COOH}, \] с нитрогруппами в положениях 2 и 4 относительно места присоединения атома азота.
SMILES: O=C(O)CC(Nc1ccc([N+](=O)[O-])cc1[N+](=O)[O-])C(=O)O
- 6.3: Пептид B8: \(\boxed{\ce{Cya-Tyr-Ile-Glu}}\), записанный от N-конца к C-концу.
SMILES: N[C@@H](CS(=O)(=O)O)C(=O)N[C@@H](Cc1ccc(O)cc1)C(=O)N[C@@H]([C@@H](C)CC)C(=O)N[C@@H](CCC(=O)O)C(=O)O
- 6.4: Пептид B9: \(\boxed{\ce{Asp-Cya-Pro-Leu}}\).
SMILES: N[C@@H](CC(=O)O)C(=O)N[C@@H](CS(=O)(=O)O)C(=O)N1CCC[C@H]1C(=O)N[C@@H](CC(C)C)C(=O)O
- 6.5: Предварительная структура пептида A: \[ \boxed{\ce{H-Cys-Tyr-Ile-Glu-Asp-Cys-Pro-Leu-Gly-NH2}} \] с дисульфидной связью между Cys¹ и Cys⁶, свободной N-концевой аминогруппой и C-концевой карбоксамидной группой.
SMILES: N[C@@H](CS1)C(=O)N[C@@H](Cc2ccc(O)cc2)C(=O)N[C@@H]([C@@H](C)CC)C(=O)N[C@@H](CCC(=O)O)C(=O)N[C@@H](CC(=O)O)C(=O)N[C@@H](CS1)C(=O)N2CCC[C@H]2C(=O)N[C@@H](CC(C)C)C(=O)NCC(N)=O
- 6.6: Уточнённая структура пептида A: \[ \boxed{\ce{H-Cys-Tyr-Ile-Gln-Asn-Cys-Pro-Leu-Gly-NH2}} \] с сохранением дисульфидной связи Cys¹–Cys⁶. Обведите кружками три группы \(\ce{-C(=O)NH2}\): амидную группу боковой цепи Gln⁴, амидную группу боковой цепи Asn⁵ и концевую амидную группу Gly⁹.
SMILES: N[C@@H](CS1)C(=O)N[C@@H](Cc2ccc(O)cc2)C(=O)N[C@@H]([C@@H](C)CC)C(=O)N[C@@H](CCC(N)=O)C(=O)N[C@@H](CC(N)=O)C(=O)N[C@@H](CS1)C(=O)N2CCC[C@H]2C(=O)N[C@@H](CC(C)C)C(=O)NCC(N)=O
- 6.7: \(\boxed{\mathrm{pI}=9.0}\).
Решение
6.1
При окислении каждый атом серы дисульфидной связи превращается в сульфогруппу. Следовательно, одна дисульфидная связь даёт две такие группы.
Уравнение реакции с указанным окислителем с расставленными коэффициентами имеет вид
\[ \ce{R-S-S-R' + 5 HCO2OH + H2O -> R-SO3H + R'-SO3H + 5 HCO2H}. \]
Здесь надмуравьиная кислота имеет SMILES O=COO, муравьиная кислота — O=CO, а вода — O.
Таким образом, каждый остаток цистеина в пептиде вследствие окисления его атома серы превращается в остаток цистеиновой кислоты. Свободная L-цистеиновая кислота, Cya, имеет SMILES N[C@@H](CS(=O)(=O)O)C(=O)O.
Одна молекула цистина содержит два аминокислотных звена. L-цистин имеет SMILES N[C@@H](CSSC[C@H](N)C(=O)O)C(=O)O. Следовательно, указанные эквимолярные продукты гидролиза соответствуют девяти остаткам: двум остаткам цистеина и по одному остатку каждой из остальных семи аминокислот.
6.2
DNFB метит свободную N-концевую аминогруппу посредством нуклеофильного ароматического замещения. Для N-концевой группы, обозначенной как \(\ce{H2N-P}\), формальное уравнение замещения с расставленными коэффициентами имеет вид
\[ \ce{Ar-F + H2N-P -> Ar-NH-P + HF}, \]
где \(\ce{Ar}\) — 2,4-динитрофенильная группа. DNFB — это 1-фтор-2,4-динитробензол, Fc1ccc([N+](=O)[O-])cc1[N+](=O)[O-]; фтороводород имеет SMILES F. В реакционной среде при введении метки основание связывает образующуюся кислоту.
Последующий гидролиз пептидных связей не затрагивает связь арил–азот. Поэтому получение DNP-Asp позволяет идентифицировать Asp как N-концевой остаток B1.
Продукт представляет собой N-(2,4-динитрофенил)аспарагиновую кислоту, SMILES которой приведён в ответах. Чтобы изобразить её полную структуру:
- Нарисуйте бензольное кольцо с атомом азота аминокислоты, присоединённым в положении 1.
- Присоедините по одной нитрогруппе в положениях 2 и 4.
- Соедините атом азота, несущий один атом водорода, с α-атомом углерода аспарагиновой кислоты.
- Присоедините к этому α-атому углерода \(\ce{-COOH}\), \(\ce{-CH2COOH}\) и атом водорода.
Две нитрогруппы сильно снижают основность атома азота, связанного с арильным заместителем. Поэтому изображённая форма с нулевым суммарным зарядом содержит незаряженную группу \(\ce{-NH-}\) и две протонированные карбоксильные группы. В соответствии с условием стереохимия этой структуры не указана.
6.3
В состав B8 входят Cya, Tyr, Ile и Glu. Его DNP-производное позволяет идентифицировать Cya как его N-концевой остаток.
Перекрывающиеся фрагменты имеют вид
\[ \begin{aligned} \mathrm{B2}&:\quad \ce{Cya-Tyr},\\ \mathrm{B6}&:\quad \ce{Tyr-Ile-Glu}. \end{aligned} \]
Общий остаток Tyr позволяет однозначно соединить их:
\[ \boxed{\mathrm{B8}=\ce{Cya-Tyr-Ile-Glu}}. \]
B4, \(\ce{Ile-Glu}\), независимо подтверждает последовательность двух последних остатков.
6.4
B9 содержит Asp, Cya, Pro и Leu; на его N-конце находится Asp, а на C-конце — Leu.
B1 даёт фрагмент \(\ce{Asp-Cya}\), а B5 — фрагмент \(\ce{Cya-Pro-Leu}\). Соединяя их по общему остатку Cya, получаем
\[ \boxed{\mathrm{B9}=\ce{Asp-Cya-Pro-Leu}}. \]
Эта последовательность согласуется с результатами идентификации обеих концевых аминокислот.
Гидразинолиз, используемый для идентификации C-концевой аминокислоты, представляет собой реакцию замещения у ацильного центра. Её общее уравнение с расставленными коэффициентами имеет вид
\[ \ce{R-C(=O)-NR'R'' + H2N-NH2 -> R-C(=O)-NH-NH2 + HNR'R''}. \]
Гидразин имеет SMILES NN. В условиях процедуры идентификации, описанной в условии задачи, C-концевая аминокислота сохраняет свою карбоксильную группу и отличается от гидразидов аминокислот.
6.5
Три фрагмента ферментативного гидролиза включают все девять остатков:
\[ \begin{aligned} \mathrm{B8}&:\quad \ce{Cya-Tyr-Ile-Glu},\\ \mathrm{B9}&:\quad \ce{Asp-Cya-Pro-Leu},\\ \mathrm{B7}&:\quad \ce{Gly-NH2}. \end{aligned} \]
B7 — это глицинамид, NCC(N)=O, поэтому его наличие устанавливает, что C-конец амидирован.
Фрагмент B3, \(\ce{Leu-Gly}\), соединяет конец B9 с B7. Следовательно, B9–B7 образует C-концевой участок из пяти остатков. B8 даёт оставшиеся четыре N-концевых остатка, что приводит к предварительной последовательности окисленного пептида
\[ \ce{Cya-Tyr-Ile-Glu-Asp-Cya-Pro-Leu-Gly-NH2}. \]
Чтобы восстановить структуру до окисления, заменим остатки Cya в положениях 1 и 6 на остатки цистеина, соединённые дисульфидной связью. Таким образом,
\[ \boxed{\ce{H-Cys-Tyr-Ile-Glu-Asp-Cys-Pro-Leu-Gly-NH2}}. \]
Чтобы точно указать дисульфидную связь, соедините атомы серы двух боковых цепей цистеина, получив мостик между боковыми цепями
\[ \ce{-CH2-S-S-CH2-} \]
остатков 1 и 6. N-концевая аминогруппа остаётся свободной. SMILES в ответе 6.5 явно задаёт эту внутримолекулярную связь.
6.6
Кислотный гидролиз превращает первичный карбоксамид в карбоновую кислоту и аммиак. Формальное уравнение с расставленными коэффициентами имеет вид
\[ \ce{R-C(=O)-NH2 + H2O -> R-C(=O)-OH + NH3}. \]
Первичному амиду соответствует фрагмент *C(N)=O, карбоновой кислоте — фрагмент *C(=O)O, а аммиаку — N; звёздочка обозначает остальную часть структуры. В кислом гидролизате выделившийся аммиак протонируется до иона аммония, [NH4+].
Известная концевая глицинамидная группа даёт один эквивалент аммиака. Для образования оставшихся двух эквивалентов необходимы две дополнительные первичные амидные группы.
Asp и Glu в кислотном гидролизате могут образоваться при гидролизе соответствующих амидных групп боковых цепей:
\[ \begin{aligned} \text{Боковая цепь Asn:}\quad& \ce{-CH2-C(=O)-NH2 -> -CH2-C(=O)-OH},\\ \text{Боковая цепь Gln:}\quad& \ce{-CH2-CH2-C(=O)-NH2 -> -CH2-CH2-C(=O)-OH}. \end{aligned} \]
Эти превращения протекают согласно приведённому выше уравнению гидролиза с расставленными коэффициентами. Следовательно, исходными остатками были Gln⁴ и Asn⁵.
Разность масс подтверждает именно эти две замены. Замена \(\ce{-COOH}\) на \(\ce{-CONH2}\) означает замену \(\ce{OH}\) на \(\ce{NH2}\), при которой изменение молярной массы составляет приблизительно
\[ (14+2)-(16+1)=-1\ \mathrm{g\,mol^{-1}}. \]
Две замены уменьшают молярную массу приблизительно на \(2\ \mathrm{g\,mol^{-1}}\), что соответствует указанной разности:
\[ M_r(\text{уточнённого A})\simeq1009-2=1007. \]
Таким образом, уточнённая структура имеет вид
\[ \boxed{\ce{H-Cys-Tyr-Ile-Gln-Asn-Cys-Pro-Leu-Gly-NH2}}, \]
с той же дисульфидной связью Cys¹–Cys⁶.
Кружками следует обвести три участка:
- Gln⁴: группу \(\ce{-CH2CH2C(=O)NH2}\) боковой цепи.
- Asn⁵: группу \(\ce{-CH2C(=O)NH2}\) боковой цепи.
- Gly⁹: концевую группу \(\ce{-C(=O)NH2}\).
Каждый из них даёт один эквивалент аммиака. Атомы азота пептидного остова при гидролизе остаются связанными с соответствующими аминокислотными продуктами.
6.7
В уточнённой структуре имеются следующие ионизируемые группы из таблицы 2:
| Группа в A | \(\mathrm{p}K_\mathrm{a}\) | Изменение заряда при депротонировании |
|---|---|---|
| Свободная N-концевая аминогруппа | 8.0 | \(+1\rightarrow0\) |
| Фенольная группа Tyr | 10.0 | \(0\rightarrow-1\) |
C-конец амидирован, а боковые цепи Gln и Asn содержат амидные группы. Два атома серы цистеина образуют дисульфидную связь, поэтому свободные тиольные группы отсутствуют.
Электронейтральная форма существует между отщеплением протона N-концевой аммониевой группы и отщеплением протона фенольной группы Tyr. Следовательно,
\[ \boxed{\mathrm{pI}=\frac{8.0+10.0}{2}=9.0}. \]
Более явно средний заряд в рамках заданной модели ионизации выражается как
\[ \bar z= \frac{1}{1+10^{\mathrm{pH}-8.0}} - \frac{1}{1+10^{10.0-\mathrm{pH}}}. \]
При \(\mathrm{pH}=9.0\) положительный и отрицательный вклады равны по модулю \(1/11\), поэтому \(\bar z=0\).
Решение проверено по официальному решению.
IChO 1999 · مسألة نظرية 6
تسلسل الببتيد A
للببتيد A وزن جزيئي مقداره 1007. ويعطي التحلل المائي الحمضي الكامل الأحماض الأمينية الآتية بكميات متساوية مولياً: Asp، والسيستين، وGlu، وGly، وIle، وLeu، وPro، وTyr (انظر الجدول 1). وتعطي أكسدة A باستخدام \(\ce{HCO2OH}\) المركب B وحده، الذي يحمل وحدتين متبقيتين من حمض السيستئيك (Cya، وهو مشتق من السيستئين تأكسدت فيه مجموعة الثيول إلى حمض السلفونيك).
6.1 كم مجموعة من مجموعات حمض السلفونيك تتكون عند أكسدة رابطة ثنائي الكبريتيد؟
يعطي التحلل المائي الجزئي للمركب B عدداً من ثنائيات وثلاثيات الببتيد (B1-B6). ويُحدَّد تسلسل كل ناتج من نواتج التحلل المائي بالطرائق الآتية.
يُتعرَّف على الحمض الأميني عند الطرف N بمعالجة الببتيد بمركب 2,4-ثنائي نيترو فلوروبنزين (DNFB) للحصول على ببتيد موسوم بمجموعة DNP. وبعد التحلل المائي الحمضي الكامل للببتيد الموسوم بمجموعة DNP، يُحصَل على حمض أميني موسوم بمجموعة DNP يمكن التعرف عليه بسهولة بمقارنته بأحماض أمينية قياسية موسومة بمجموعة DNP.
6.2 عند معالجة B1 بمركب DNFB ثم إجراء التحلل المائي الحمضي، يتكون الناتج DNP-Asp. ويشير ذلك إلى أن B1 يحتوي على حمض الأسبارتيك عند الطرف N. اكتب البنية الكاملة للمركب DNP-Asp عند نقطة تعادله الكهربي (لا يلزم إظهار الكيمياء الفراغية).
بعد ذلك، يُتعرَّف على الحمض الأميني عند الطرف C بتسخين الببتيد عند \(100\,^\circ\mathrm{C}\) مع الهيدرازين، الذي يشطر جميع الروابط الببتيدية ويحوِّل جميع الأحماض الأمينية، باستثناء الحمض الأميني عند الطرف C، إلى هيدرازيدات الأحماض الأمينية، مع إبقاء مجموعة الكربوكسيل عند الطرف C سليمة.
بهذه الطريقة يُتعرَّف على الأحماض الأمينية عند الطرفين N وC، وتكون التسلسلات الكاملة للمركبات B1-B6 كما يأتي:
| B1 | Asp-Cya | B4 | Ile-Glu |
| B2 | Cya-Tyr | B5 | Cya-Pro-Leu |
| B3 | Leu-Gly | B6 | Tyr-Ile-Glu |
يعطي التحلل المائي للمركب B بإنزيم من Bacillus subtilis المركبات B7-B9 ذات التراكيب الآتية:
| B7 | \(\ce{Gly-NH2}\) (غليسيناميد) |
| B8 | Cya, Glu, Ile, Tyr |
| B9 | Asp, Cya, Leu, Pro |
6.3 اكتب تسلسل B8، إذا كان DNP-Cya ينتج عند معالجة B8 بمركب DNFB ثم إجراء التحلل المائي الحمضي الكامل.
6.4 إذا تبيَّن أن الحمضين الأمينيين عند الطرفين N وC في B9 هما Asp وLeu على الترتيب، فاكتب تسلسل B9.
6.5 اكتب البنية الكاملة للمركب A باستخدام الاختصارات الواردة في الجدول 1، مع تحديد موضع رابطة ثنائي الكبريتيد.
غير أن الوزن الجزيئي المحسوب للمركب A بناءً على التسلسل أعلاه يزيد بوحدتي كتلة على القيمة التجريبية. وعند الفحص الدقيق للمزيج الناتج عن التحلل المائي الحمضي الكامل للمركب A، يتبيَّن أن 3 مكافئات مولية من الأمونيا تنتج أيضاً، إضافة إلى الأحماض الأمينية التي كُشف عنها في البداية.
6.6 اقترح البنية المنقَّحة للمركب A، وضع دوائر حول المواضع في البنية التي تمثل جميع المصادر المحتملة للأمونيا.
6.7 باستخدام المعلومات الواردة في الجدول 2، احسب نقطة التعادل الكهربي للمركب A.
الجدول 1: صيغ الأحماض الأمينية الشائعة ورموزها عند نقطة التعادل الكهربي
| الاسم | الصيغة | الرمز المكوَّن من ثلاثة أحرف |
|---|---|---|
| ألانين | \(\ce{CH3CH(NH3+)CO2-}\) | Ala |
| أرجينين | \(\ce{H2NC(=NH)NH(CH2)3CH(NH3+)CO2-}\) | Arg |
| أسباراجين | \(\ce{H2NCOCH2CH(NH3+)CO2-}\) | Asn |
| حمض الأسبارتيك | \(\ce{HO2CCH2CH(NH3+)CO2-}\) | Asp |
| سيستئين | \(\ce{HSCH2CH(NH3+)CO2-}\) | Cys |
| سيستين | \(\ce{[SCH2CH(NH3+)CO2-]2}\) | – |
| حمض الغلوتاميك | \(\ce{HO2CCH2CH2CH(NH3+)CO2-}\) | Glu |
| غلوتامين | \(\ce{H2NCOCH2CH2CH(NH3+)CO2-}\) | Gln |
| غليسين | \(\ce{^{+}H3NCH2CO2-}\) | Gly |
| هيستيدين | (الشكل أدناه) | His |
| آيزوليوسين | \(\ce{CH3CH2CH(CH3)CH(NH3+)CO2-}\) | Ile |
| ليوسين | \(\ce{(CH3)2CHCH2CH(NH3+)CO2-}\) | Leu |
| ليسين | \(\ce{H2N(CH2)4CH(NH3+)CO2-}\) | Lys |
الجدول 1 (تابع)
| الاسم | الصيغة | الرمز المكوَّن من ثلاثة أحرف |
|---|---|---|
| ميثيونين | \(\ce{CH3SCH2CH2CH(NH3+)CO2-}\) | Met |
| فينيل ألانين | \(\ce{PhCH2CH(NH3+)CO2-}\) | Phe |
| برولين | (الشكل الأول أدناه) | Pro |
| سيرين | \(\ce{HOCH2CH(NH3+)CO2-}\) | Ser |
| ثريونين | \(\ce{CH3CH(OH)CH(NH3+)CO2-}\) | Thr |
| تريبتوفان | (الشكل الثاني أدناه) | Trp |
| تيروزين | (الشكل الثالث أدناه) | Tyr |
| فالين | \(\ce{(CH3)2CHCH(NH3+)CO2-}\) | Val |
الجدول 2: قيم \(\mathrm{p}K_\mathrm{a}\) لبعض المجموعات المهمة في الأحماض الأمينية
| المجموعات | الاتزان | \(\mathrm{p}K_\mathrm{a}\) |
|---|---|---|
| مجموعة الكربوكسيل الطرفية | (الشكل الأول أدناه) | 3.1 |
| مجموعة الكربوكسيل في السلسلة الجانبية لـ Asp أو Glu | (الشكل الثاني أدناه) | 4.4 |
| السلسلة الجانبية لـ His | (الشكل الثالث أدناه) | 6.5 |
| مجموعة الأمين الطرفية | (الشكل الرابع أدناه) | 8.0 |
| السلسلة الجانبية لـ Cys | (الشكل الخامس أدناه) | 8.5 |
الجدول 2 (تابع)
| المجموعات | الاتزان | \(\mathrm{p}K_\mathrm{a}\) |
|---|---|---|
| السلسلة الجانبية لـ Tyr | (الشكل الأول أدناه) | 10.0 |
| مجموعة الأمين في السلسلة الجانبية لـ Lys | (الشكل الثاني أدناه) | 10.0 |
| السلسلة الجانبية لـ Arg | (الشكل الثالث أدناه) | 12.0 |
نص المسألة مترجم عن النص الإنجليزي الرسمي.
الإجابات
تستخدم تمثيلات SMILES للببتيدات أدناه الكيمياء الفراغية المعتادة للوحدات المتبقية الطبيعية من النمط L، وتمثيلات متعادلة للمجموعات الوظيفية.
-
6.1: مجموعتان من مجموعات حمض السلفونيك، \(\ce{-SO3H}\)، لكل رابطة ثنائي كبريتيد.
-
6.2: حمض N-(2,4-ثنائي نيتروفينيل)الأسبارتيك، موضَّحاً في صورته المتعادلة غير ثنائية القطب: \[ \ce{HOOC-CH2-CH[NH-C6H3(NO2)2]-COOH}, \] مع وجود مجموعتي النيترو في الموضعين 2 و4 بالنسبة إلى موضع ارتباط النيتروجين.
SMILES: O=C(O)CC(Nc1ccc([N+](=O)[O-])cc1[N+](=O)[O-])C(=O)O
- 6.3: الببتيد B8: \(\boxed{\ce{Cya-Tyr-Ile-Glu}}\)، مكتوباً من الطرف N إلى الطرف C.
SMILES: N[C@@H](CS(=O)(=O)O)C(=O)N[C@@H](Cc1ccc(O)cc1)C(=O)N[C@@H]([C@@H](C)CC)C(=O)N[C@@H](CCC(=O)O)C(=O)O
- 6.4: الببتيد B9: \(\boxed{\ce{Asp-Cya-Pro-Leu}}\).
SMILES: N[C@@H](CC(=O)O)C(=O)N[C@@H](CS(=O)(=O)O)C(=O)N1CCC[C@H]1C(=O)N[C@@H](CC(C)C)C(=O)O
- 6.5: الببتيد A بصورته المبدئية: \[ \boxed{\ce{H-Cys-Tyr-Ile-Glu-Asp-Cys-Pro-Leu-Gly-NH2}} \] مع رابطة ثنائي كبريتيد بين Cys¹ وCys⁶، ومجموعة أمين حرة عند الطرف N، ومجموعة كربوكساميد عند الطرف C.
SMILES: N[C@@H](CS1)C(=O)N[C@@H](Cc2ccc(O)cc2)C(=O)N[C@@H]([C@@H](C)CC)C(=O)N[C@@H](CCC(=O)O)C(=O)N[C@@H](CC(=O)O)C(=O)N[C@@H](CS1)C(=O)N2CCC[C@H]2C(=O)N[C@@H](CC(C)C)C(=O)NCC(N)=O
- 6.6: الببتيد A بصورته المنقَّحة: \[ \boxed{\ce{H-Cys-Tyr-Ile-Gln-Asn-Cys-Pro-Leu-Gly-NH2}} \] مع الاحتفاظ برابطة ثنائي الكبريتيد Cys¹–Cys⁶. ضع دوائر حول مجموعات \(\ce{-C(=O)NH2}\) الثلاث: أميد السلسلة الجانبية لـ Gln⁴، وأميد السلسلة الجانبية لـ Asn⁵، والأميد الطرفي لـ Gly⁹.
SMILES: N[C@@H](CS1)C(=O)N[C@@H](Cc2ccc(O)cc2)C(=O)N[C@@H]([C@@H](C)CC)C(=O)N[C@@H](CCC(N)=O)C(=O)N[C@@H](CC(N)=O)C(=O)N[C@@H](CS1)C(=O)N2CCC[C@H]2C(=O)N[C@@H](CC(C)C)C(=O)NCC(N)=O
- 6.7: \(\boxed{\mathrm{pI}=9.0}\).
الحل
6.1
تحوِّل الأكسدة كل ذرة كبريت في رابطة ثنائي الكبريتيد إلى مجموعة حمض السلفونيك. لذلك تنتج عن رابطة ثنائي كبريتيد واحدة مجموعتان من هذه المجموعات.
المعادلة الموزونة باستخدام العامل المؤكسد المحدد هي
\[ \ce{R-S-S-R' + 5 HCO2OH + H2O -> R-SO3H + R'-SO3H + 5 HCO2H}. \]
هنا يُمثَّل حمض البيرفورميك بـ O=COO، وحمض الفورميك بـ O=CO، والماء بـ O.
وبناءً على ذلك، تصبح كل وحدة متبقية حاملة للكبريت ومشتقة من السيستئين في الببتيد وحدة متبقية من حمض السيستئيك. ولحمض L-السيستئيك الحر، Cya، تمثيل SMILES الآتي: N[C@@H](CS(=O)(=O)O)C(=O)O.
يحتوي جزيء واحد من السيستين على وحدتين من الأحماض الأمينية. ولـ L-سيستين تمثيل SMILES الآتي: N[C@@H](CSSC[C@H](N)C(=O)O)C(=O)O. ومن ثم، فإن نواتج التحلل المائي المذكورة، المتساوية مولياً، تقابل تسع وحدات متبقية: وحدتين متبقيتين من السيستئين ووحدة واحدة من كل حمض من الأحماض الأمينية السبعة الأخرى.
6.2
يسم DNFB مجموعة الأمين الحرة عند الطرف N بتفاعل إحلال عطري نوكليوفيلي. ولمجموعة طرفية N يُرمز إليها بـ \(\ce{H2N-P}\)، تكون معادلة الإحلال الشكلية الموزونة
\[ \ce{Ar-F + H2N-P -> Ar-NH-P + HF}, \]
حيث تمثل \(\ce{Ar}\) مجموعة 2,4-ثنائي نيتروفينيل. وDNFB هو 1-فلورو-2,4-ثنائي نيتروبنزين، Fc1ccc([N+](=O)[O-])cc1[N+](=O)[O-]؛ ويُمثَّل فلوريد الهيدروجين بـ F. وفي وسط الوسم، تتفاعل القاعدة مع الحمض المتكوِّن.
يُبقي التحلل المائي اللاحق للروابط الببتيدية رابطة الأريل–النيتروجين سليمة. ولذلك فإن الحصول على DNP-Asp يحدِّد Asp بوصفه الوحدة المتبقية عند الطرف N في B1.
الناتج هو حمض N-(2,4-ثنائي نيتروفينيل)الأسبارتيك، وقد أُعطي تمثيل SMILES له في الإجابات. ولرسمه كاملاً:
- ارسم حلقة بنزين تحمل ذرة نيتروجين الحمض الأميني في الموضع 1.
- اربط مجموعة نيترو بكل من الموضعين 2 و4.
- صِل ذرة النيتروجين، الحاملة لذرة هيدروجين واحدة، بذرة الكربون α في حمض الأسبارتيك.
- اربط \(\ce{-COOH}\) و\(\ce{-CH2COOH}\) وذرة هيدروجين بذرة الكربون α تلك.
تُضعِف مجموعتا النيترو بشدة قاعدية ذرة النيتروجين المستبدلة بمجموعة أريل. ولذلك تحتوي الصورة الموضحة، ذات الشحنة الكلية المتعادلة، على مجموعة \(\ce{-NH-}\) غير مشحونة ومجموعتي كربوكسيل مبرتنتين. ولم تُحدَّد الكيمياء الفراغية في هذه البنية، وفقاً للمطلوب.
6.3
يتكون B8 من Cya وTyr وIle وGlu. ويحدِّد مشتقه الموسوم بمجموعة DNP Cya بوصفه الوحدة المتبقية عند طرفه N.
القطع المتداخلة هي
\[ \begin{aligned} \mathrm{B2}&:\quad \ce{Cya-Tyr},\\ \mathrm{B6}&:\quad \ce{Tyr-Ile-Glu}. \end{aligned} \]
تربطهما الوحدة المتبقية المشتركة Tyr على نحو وحيد:
\[ \boxed{\mathrm{B8}=\ce{Cya-Tyr-Ile-Glu}}. \]
ويؤكد B4، \(\ce{Ile-Glu}\)، الوحدتين المتبقيتين الأخيرتين بصورة مستقلة.
6.4
يحتوي B9 على Asp وCya وPro وLeu، مع وجود Asp عند طرفه N وLeu عند طرفه C.
يوفر B1 التسلسل \(\ce{Asp-Cya}\)، بينما يوفر B5 التسلسل \(\ce{Cya-Pro-Leu}\). ويعطي الوصل عند الوحدة المشتركة Cya
\[ \boxed{\mathrm{B9}=\ce{Asp-Cya-Pro-Leu}}. \]
يتوافق هذا التسلسل مع تحديد كل من الطرفين.
التحلل بالهيدرازين المستخدم للتعرف على الطرف C هو إحلال أسيلي. وصيغته العامة الموزونة هي
\[ \ce{R-C(=O)-NR'R'' + H2N-NH2 -> R-C(=O)-NH-NH2 + HNR'R''}. \]
للهيدرازين تمثيل SMILES الآتي: NN. وفي إجراء التعرف الموصوف في المسألة، يحتفظ الحمض الأميني عند الطرف C بمجموعة الكربوكسيل، ويُميَّز عن هيدرازيدات الأحماض الأمينية.
6.5
تشمل القطع الإنزيمية الثلاث جميع الوحدات المتبقية التسع:
\[ \begin{aligned} \mathrm{B8}&:\quad \ce{Cya-Tyr-Ile-Glu},\\ \mathrm{B9}&:\quad \ce{Asp-Cya-Pro-Leu},\\ \mathrm{B7}&:\quad \ce{Gly-NH2}. \end{aligned} \]
B7 هو غليسيناميد، NCC(N)=O، لذا فهو يثبت أن الطرف C في صورة أميد.
تصل القطعة B3، \(\ce{Leu-Gly}\)، نهاية B9 بالقطعة B7. ومن ثم، يُشكِّل B9–B7 المقطع المكوَّن من خمس وحدات متبقية عند الطرف C. ويوفر B8 الوحدات المتبقية الأربع الأخرى عند الطرف N، مما يعطي التسلسل المبدئي المؤكسد
\[ \ce{Cya-Tyr-Ile-Glu-Asp-Cya-Pro-Leu-Gly-NH2}. \]
يؤدي عكس الأثر البنيوي للأكسدة إلى استبدال وحدتي Cya المتبقيتين في الموضعين 1 و6 بوحدتين متبقيتين من السيستئين مرتبطتين برابطة ثنائي الكبريتيد. ولذلك
\[ \boxed{\ce{H-Cys-Tyr-Ile-Glu-Asp-Cys-Pro-Leu-Gly-NH2}}. \]
لتحديد رابطة ثنائي الكبريتيد بدقة، صِل ذرتي الكبريت في سلسلتي السيستئين الجانبيتين، للحصول على وصلة بين السلسلتين الجانبيتين
\[ \ce{-CH2-S-S-CH2-} \]
بين الوحدتين المتبقيتين 1 و6. وتبقى مجموعة الأمين عند الطرف N حرة. ويُشفِّر تمثيل SMILES في الإجابة 6.5 هذه الرابطة داخل الجزيء صراحةً.
6.6
يحوِّل التحلل المائي الحمضي الكربوكساميد الأولي إلى حمض كربوكسيلي وأمونيا. والمعادلة الشكلية الموزونة هي
\[ \ce{R-C(=O)-NH2 + H2O -> R-C(=O)-OH + NH3}. \]
تُمثَّل قطعة الأميد الأولي بـ *C(N)=O، وقطعة الحمض الكربوكسيلي بـ *C(=O)O، والأمونيا بـ N؛ وتشير النجمة إلى بقية البنية. وفي مزيج التحلل المائي الحمضي، تُبرتن الأمونيا المنطلقة لتصبح أمونيوم، [NH4+].
تفسِّر مجموعة الغليسيناميد الطرفية المعروفة تكوُّن مكافئ واحد من الأمونيا. ويتطلب المكافئان المتبقيان وجود مجموعتي أميد أولي إضافيتين.
يمكن أن ينشأ Asp وGlu في مزيج التحلل المائي الحمضي من التحلل المائي لأميدي السلسلتين الجانبيتين المقابلين:
\[ \begin{aligned} \text{السلسلة الجانبية لـ Asn:}\quad& \ce{-CH2-C(=O)-NH2 -> -CH2-C(=O)-OH},\\ \text{السلسلة الجانبية لـ Gln:}\quad& \ce{-CH2-CH2-C(=O)-NH2 -> -CH2-CH2-C(=O)-OH}. \end{aligned} \]
تتبع هذه التحولات معادلة التحلل المائي الموزونة أعلاه. ومن ثم، كانت الوحدتان المتبقيتان الأصليتان هما Gln⁴ وAsn⁵.
يدعم فرق الكتلة هذين الاستبدالين تحديداً. فاستبدال \(\ce{-COOH}\) بـ \(\ce{-CONH2}\) يعني استبدال \(\ce{OH}\) بـ \(\ce{NH2}\)، مما يخفض الكتلة المولية بمقدار يقارب
\[ (14+2)-(16+1)=-1\ \mathrm{g\,mol^{-1}}. \]
يخفض استبدالان الكتلة المولية بمقدار يقارب \(2\ \mathrm{g\,mol^{-1}}\)، بما يتوافق مع الفرق المذكور:
\[ M_r(\text{A المنقَّح})\simeq1009-2=1007. \]
وعليه، تكون البنية المنقَّحة
\[ \boxed{\ce{H-Cys-Tyr-Ile-Gln-Asn-Cys-Pro-Leu-Gly-NH2}}, \]
مع رابطة ثنائي الكبريتيد Cys¹–Cys⁶ نفسها.
المواضع الثلاثة التي ينبغي وضع دوائر حولها هي:
- Gln⁴: مجموعة \(\ce{-CH2CH2C(=O)NH2}\) في السلسلة الجانبية.
- Asn⁵: مجموعة \(\ce{-CH2C(=O)NH2}\) في السلسلة الجانبية.
- Gly⁹: مجموعة \(\ce{-C(=O)NH2}\) الطرفية.
ينتج عن كل منها مكافئ واحد من الأمونيا. وتظل ذرات نيتروجين الروابط الببتيدية في السلسلة الرئيسية مرتبطة بنواتج الأحماض الأمينية الخاصة بها أثناء التحلل المائي.
6.7
في البنية المنقَّحة، تكون المجموعات ذات الصلة القابلة للتأين، الواردة في الجدول 2، كما يأتي:
| المجموعة في A | \(\mathrm{p}K_\mathrm{a}\) | تغيُّر الشحنة عند نزع البروتون |
|---|---|---|
| مجموعة الأمين الحرة عند الطرف N | 8.0 | \(+1\rightarrow0\) |
| المجموعة الفينولية لـ Tyr | 10.0 | \(0\rightarrow-1\) |
الطرف C في صورة أميد، والسلسلتان الجانبيتان لـ Gln وAsn أميديتان. وتُشكِّل ذرتا كبريت السيستئين رابطة ثنائي الكبريتيد، لذا لا توجد مجموعات ثيول حرة.
تقع الصورة المتعادلة كهربياً بين فقدان بروتون مجموعة الأمونيوم عند الطرف N وفقدان البروتون الفينولي لـ Tyr. ولذلك
\[ \boxed{\mathrm{pI}=\frac{8.0+10.0}{2}=9.0}. \]
وبصورة أكثر صراحةً، فإن متوسط الشحنة وفق نموذج التأين المعطى هو
\[ \bar z= \frac{1}{1+10^{\mathrm{pH}-8.0}} - \frac{1}{1+10^{10.0-\mathrm{pH}}}. \]
عند \(\mathrm{pH}=9.0\)، يكون مقدار كل من المساهمتين الموجبة والسالبة \(1/11\)، ومن ثم \(\bar z=0\).
تمت مراجعة الحل بمقارنته بالحل الرسمي.